Найдена часть мозга, отвечающая за сознание. Таламус — недооцененная структура, формирующая нашу реальность

Пост опубликован в блогах iXBT.com, его автор не имеет отношения к редакции iXBT.com

Рассмотрим фундаментальную разницу между двумя состояниями: глубоким сном без сновидений и процессом чтения этого текста. Разрыв кажется колоссальным. В первом случае вся система находится в условном «офлайн-режиме». Во втором — она не просто активна, но и сфокусирована на обработке конкретной, детальной информации.

Нейронаука разделяет этот феномен на два ключевых аспекта: общее состояние сознания (бодрствование, сон) и конкретное содержание сознания (мысли и образы, которые воспринимаются в данный момент).

Где находится механизм, который управляет и тем, и другим?
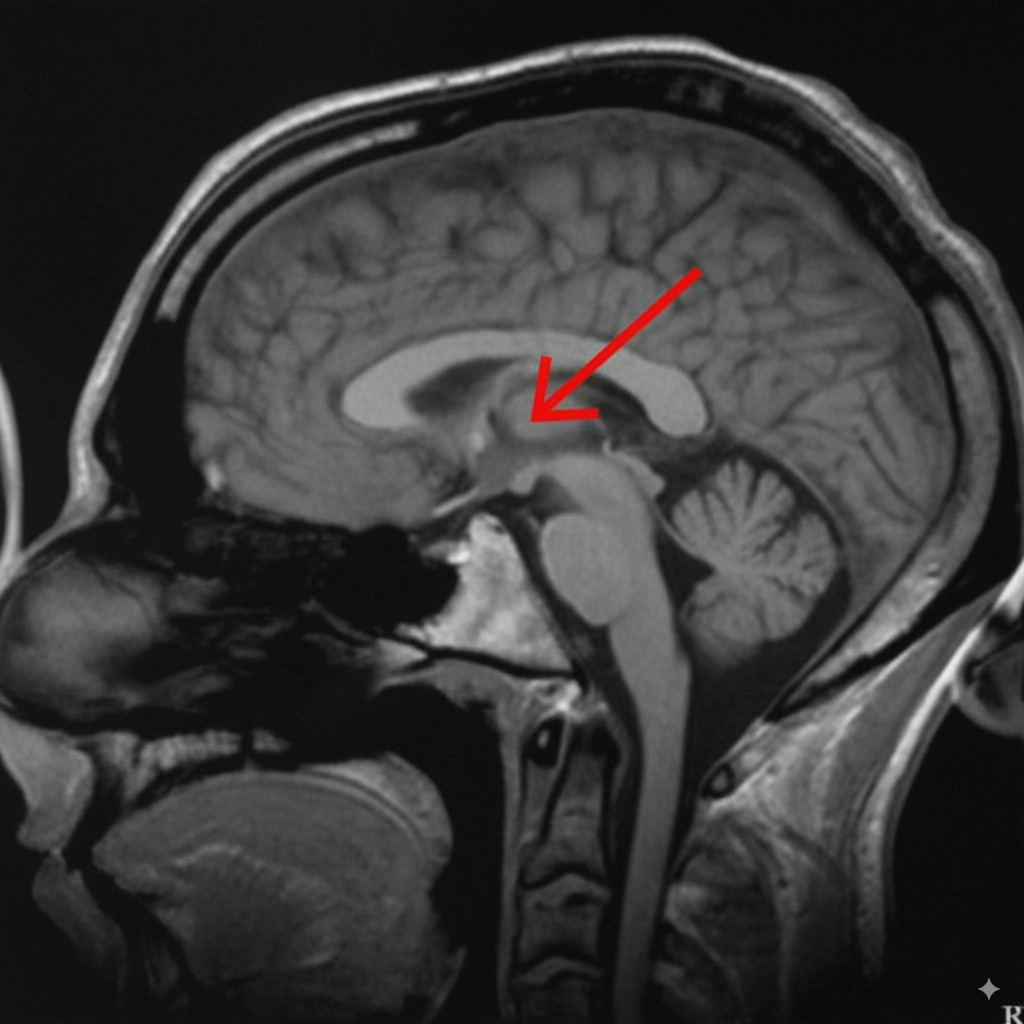
Таламус человека на МРТ-снимке, отмечен стрелкой
Автор: Brian_chrischan CC BY-SA 3.0 Источник: commons.wikimedia.org

Долгое время основное внимание было приковано к коре головного мозга — его знаменитому серому веществу. Но последние исследования указывают на другую, более глубокую и центрально расположенную структуру — таламус.

Новые данные показывают, что таламус — это не пассивный передатчик сенсорных сигналов. Это активная система управления, которая играет решающую роль и в поддержании общего состояния бодрствования, и в формировании конкретного содержания нашего восприятия. Разберем, как именно он это делает.
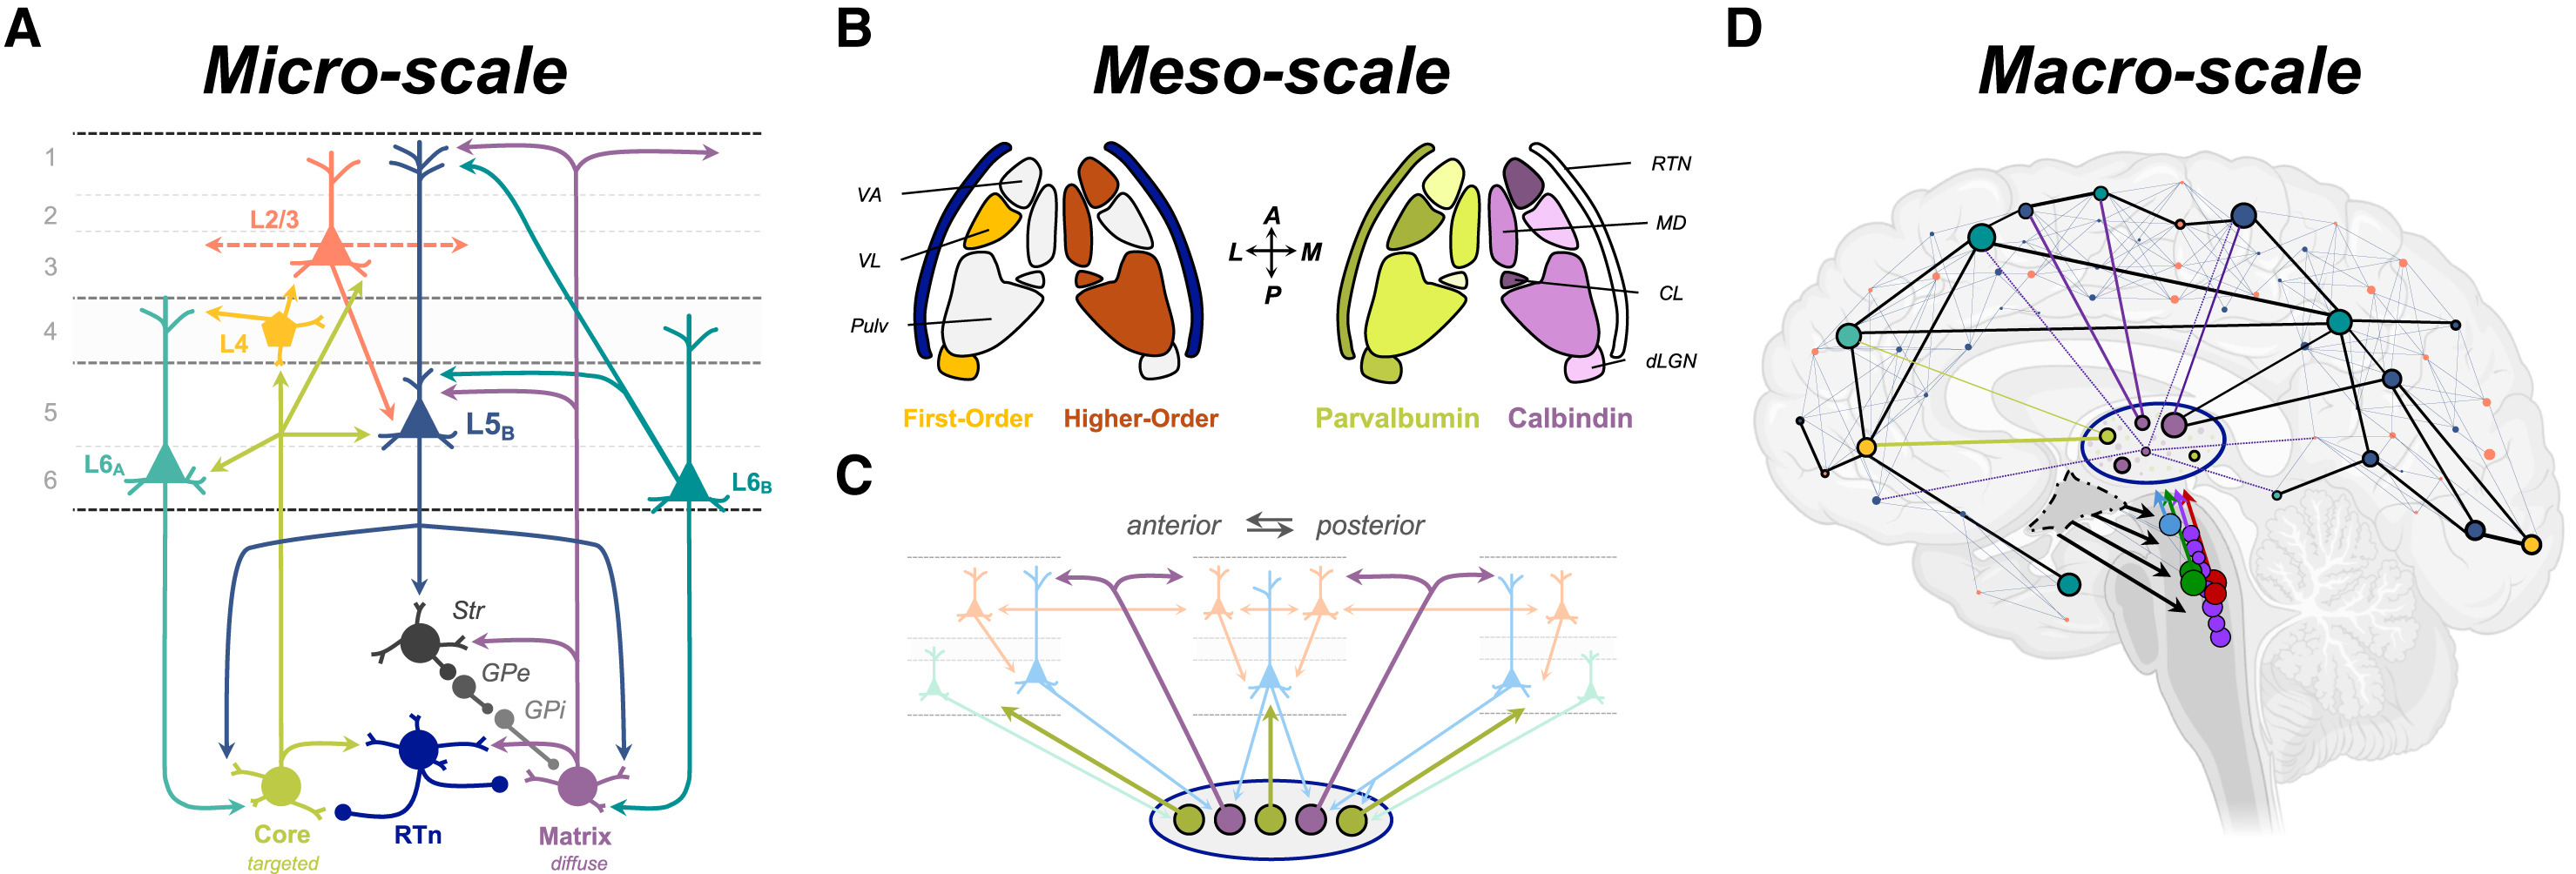
Микро-, мезо- и макроуровневая организация таламокортикальной системы (A) На микроуровне различные типы возбуждающих клеток в таламусе (ядерные [оливковый цвет] и матричные [сливовый цвет]) проецируются в различные слои (пронумерованные 1–6) коры головного мозга, где они контактируют со специфическими популяциями клеточных типов, которые оказывают различное влияние на кортикальные вычисления. Ядерные клетки посылают направленные проекции к звездчатым клеткам (L4, светло-оранжевый) в средних (зернистых) слоях, которые затем иннервируют пирамидальные нейроны в поверхностных (L2/3, мандариновый) и глубоких (L6A, бирюзовый) слоях, которые, в свою очередь, проецируются либо обратно в таламус (L6A), либо в пределах коры головного мозга (L2/3). В отличие от них, матричные клетки иннервируют поверхностные (L1) и глубокие (L5) слои, особенно нацеливаясь на крупные пирамидальные нейроны пирамидного тракта (PT-типа) с толстыми пучковыми дендритами (ttL5B, синий), которые являются единственным исходящим путем коры за пределы среднего мозга. И клетки ttL5B, и матричные клетки также тесно связаны с орексин-чувствительными пирамидальными нейронами слоя 6 (L6B, бирюзовый). Также существует обширный тормозной контроль над спайковой активностью таламуса: например, через ретикулярное ядро таламуса (RTn, темно-синий), которое возбуждается проекционными нейронами таламуса и кортикальными входами в таламус (не показано), и через внутренний бледный шар (GPi), который управляется входами от ttL5B к наружному бледному шару (GPe, средне-серый). NB: это идеализированная схема, предназначенная для общего обзора основных контуров, поэтому на ней показаны не все известные связи. (B) Различные ядра таламуса можно охарактеризовать в соответствии с их принадлежностью к (слева) первому порядку (светло-оранжевый) или высшему порядку (коричневый), в зависимости от того, поступают ли управляющие (драйверные) входы из подкорковых структур или из коры головного мозга соответственно; а также (справа) по экспрессии парвальбумина (в ядерных клетках) и кальбиндина (в матричных клетках). Обратите внимание, что отдельные ядра содержат смесь обоих типов клеток (что приблизительно показано относительной интенсивностью цвета; распределение внутри отдельных ядер не изображено). (C) На мезоуровне предполагается, что таламус контролирует локальную (через ядерные клетки) и дальнодействующую (через матричные клетки) возбудимость распределенных областей коры головного мозга посредством проекций, которые усиливают локальный или распределенный резонанс в кортико-таламических петлях по всей мантии коры. (D) На макроуровне таламус тесно взаимосвязан со всей мантией коры посредством аксональных связей, исходящих как из коры головного мозга, так и из таламуса, которые вместе образуют распределенную сеть, формирующую сознательный опыт. Особую важность имеет наличие в одной и той же системе как конвергентной (несколько кортикальных областей проецируются в одну область таламуса), так и дивергентной (одна область таламуса проецируется в несколько кортикальных областей) архитектуры. Гипоталамус (пунктирная линия) проецируется на множество узлов в восходящей системе возбуждения, где специализированные клетки высвобождают различные нейромодулирующие нейрохимические вещества (дофамин, светло-голубой; ацетилхолин, зеленый; норадреналин, темно-красный; серотонин, фиолетовый). Условные обозначения: CL, центральное латеральное ядро; dLGN, дорсальное латеральное коленчатое ядро; MD, медиодорсальное ядро; Pulv, подушка таламуса; RTN, ретикулярное ядро таламуса; VA, вентральное переднее ядро; VL, вентральное латеральное ядро.
Микро-, мезо- и макроуровневая организация таламокортикальной системы (A) На микроуровне различные типы возбуждающих клеток в таламусе (ядерные [оливковый цвет] и матричные [сливовый цвет]) проецируются в различные слои (пронумерованные 1-6) коры головного мозга, где они контактируют со специфическими популяциями клеточных типов, которые оказывают различное влияние на кортикальные вычисления. Ядерные клетки посылают направленные проекции к звездчатым клеткам (L4, светло-оранжевый) в средних (зернистых) слоях, которые затем иннервируют пирамидальные нейроны в поверхностных (L2/3, мандариновый) и глубоких (L6A, бирюзовый) слоях, которые, в свою очередь, проецируются либо обратно в таламус (L6A), либо в пределах коры головного мозга (L2/3). В отличие от них, матричные клетки иннервируют поверхностные (L1) и глубокие (L5) слои, особенно нацеливаясь на крупные пирамидальные нейроны пирамидного тракта (PT-типа) с толстыми пучковыми дендритами (ttL5B, синий), которые являются единственным исходящим путем коры за пределы среднего мозга. И клетки ttL5B, и матричные клетки также тесно связаны с орексин-чувствительными пирамидальными нейронами слоя 6 (L6B, бирюзовый). Также существует обширный тормозной контроль над спайковой активностью таламуса: например, через ретикулярное ядро таламуса (RTn, темно-синий), которое возбуждается проекционными нейронами таламуса и кортикальными входами в таламус (не показано), и через внутренний бледный шар (GPi), который управляется входами от ttL5B к наружному бледному шару (GPe, средне-серый). NB: это идеализированная схема, предназначенная для общего обзора основных контуров, поэтому на ней показаны не все известные связи. (B) Различные ядра таламуса можно охарактеризовать в соответствии с их принадлежностью к (слева) первому порядку (светло-оранжевый) или высшему порядку (коричневый), в зависимости от того, поступают ли управляющие (драйверные) входы из подкорковых структур или из коры головного мозга соответственно; а также (справа) по экспрессии парвальбумина (в ядерных клетках) и кальбиндина (в матричных клетках). Обратите внимание, что отдельные ядра содержат смесь обоих типов клеток (что приблизительно показано относительной интенсивностью цвета; распределение внутри отдельных ядер не изображено). (C) На мезоуровне предполагается, что таламус контролирует локальную (через ядерные клетки) и дальнодействующую (через матричные клетки) возбудимость распределенных областей коры головного мозга посредством проекций, которые усиливают локальный или распределенный резонанс в кортико-таламических петлях по всей мантии коры. (D) На макроуровне таламус тесно взаимосвязан со всей мантией коры посредством аксональных связей, исходящих как из коры головного мозга, так и из таламуса, которые вместе образуют распределенную сеть, формирующую сознательный опыт. Особую важность имеет наличие в одной и той же системе как конвергентной (несколько кортикальных областей проецируются в одну область таламуса), так и дивергентной (одна область таламуса проецируется в несколько кортикальных областей) архитектуры. Гипоталамус (пунктирная линия) проецируется на множество узлов в восходящей системе возбуждения, где специализированные клетки высвобождают различные нейромодулирующие нейрохимические вещества (дофамин, светло-голубой; ацетилхолин, зеленый; норадреналин, темно-красный; серотонин, фиолетовый). Условные обозначения: CL, центральное латеральное ядро; dLGN, дорсальное латеральное коленчатое ядро; MD, медиодорсальное ядро; Pulv, подушка таламуса; RTN, ретикулярное ядро таламуса; VA, вентральное переднее ядро; VL, вентральное латеральное ядро.
Автор: Whyte, Christopher J. et al. Neuron, Volume 112 Источник: www.cell.com
Два типа нейронов для двух задач

Вся магия кроется в двух разных типах нейронов таламуса, которые работают в тесной связке с корой головного мозга. Разделяют их условно на «матричные» и «ядерные».

Матричные нейроны отвечают за состояние. Они обладают широкими, диффузными связями, охватывая большие участки коры. Их задача — создать общий фон, подготовить «сцену». Именно они переводят мозг в режим бодрствования, повышая общую возбудимость коры и делая ее готовой к приему информации.

Ядерные нейроны отвечают за содержание. Их связи гораздо более точные и сфокусированные, работающие с конкретными функциональными зонами коры. Именно они обеспечивают обработку специфических сигналов — того, что мы видим или слышим в данный момент.

Но как именно они это делают?
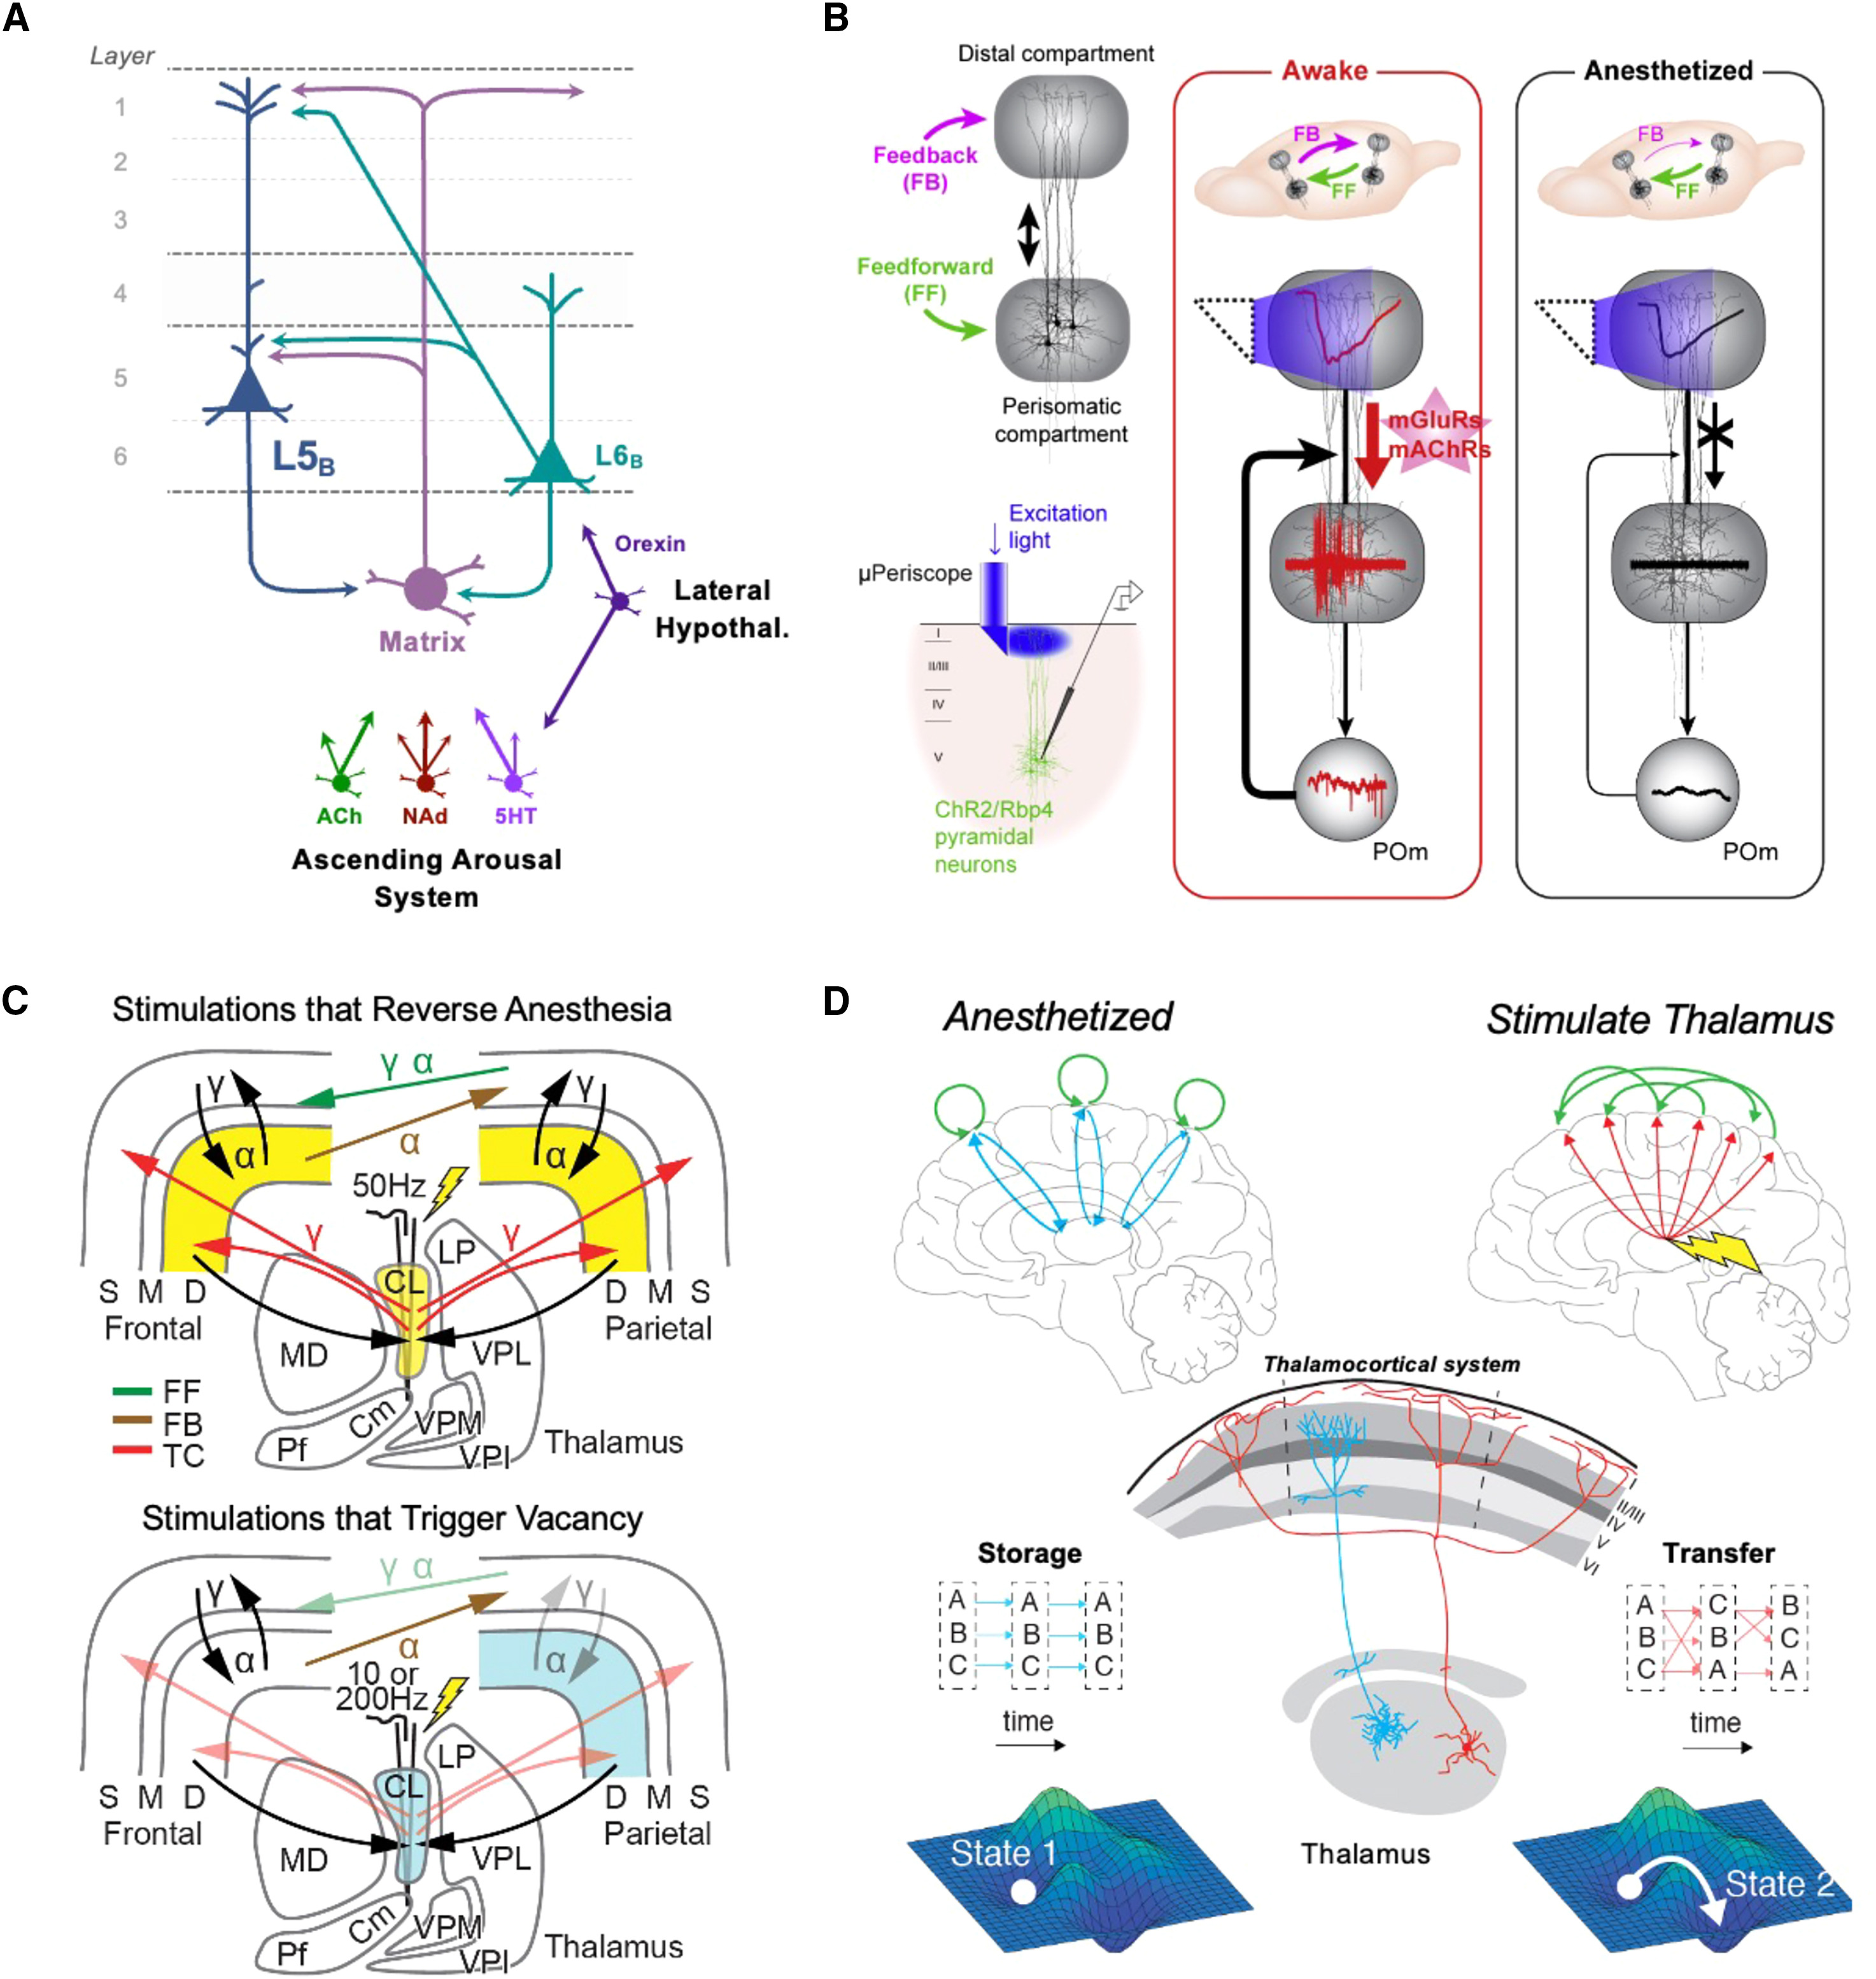
Взаимодействие матричных входов таламуса с корой головного мозга на разных масштабах для изменения состояния сознания (A) Таламокортикальные контуры, вовлеченные в состояние сознания. Матричные клетки таламуса (фиолетовые) являются важными мишенями ретикулярной активирующей системы. Они взаимно связаны с нейронами ttL5B (темно-синие) и идеально расположены для модуляции их возбудимости. Нейроны L6B, управляемые орексином, дополнительно модулируют эти таламокортикальные взаимодействия. (B) Во время бодрствования матричные входы таламуса возбуждают пирамидальные нейроны L5 через метаботропные глутаматергические входы к косым дендритам, позволяя кальциевым спайкам в апикальных дендритах влиять на соматическую активность. Под общей анестезией, в отсутствие таламического возбуждения, пирамидальные нейроны L5 не способны распространять сигналы от дендритов к соме, что способствует функциональному разобщению областей мозга. Рисунок адаптирован с разрешения Suzuki and Larkum.⁸⁰ (C) Минимально достаточный механизм, посредством которого DBS центрального латерального ядра (CL) таламуса восстанавливает или нарушает сознание. Верхняя часть: таламокортикальные (TC), прямые (FF) и обратные (FB) связи, наиболее измененные стимуляцией таламуса, которая успешно обращала общую анестезию (пропофол и изофлуран) у макак. Высокочастотная (50 Гц) DBS таламуса, одновременно подаваемая через 16 контактов линейного электрода (с шагом 200 мкм), центрированного в CL, имитирует паттерны активности бодрствующего состояния (желтый цвет), характерные для таламокортикальных эфферентов. Это увеличивает частоту разрядов в глубоких слоях коры (желтый цвет), что восстанавливает внутриколоночные, прямые и обратные связи на альфа- и гамма-частотах, несмотря на тормозное давление анестезии. Адаптировано с разрешения Redinbaugh et al.⁸¹ Нижняя часть: низко- (10 Гц) и очень высокочастотная (200 Гц) DBS, центрированная в CL, у бодрствующих макак вместо этого вызывает
Взаимодействие матричных входов таламуса с корой головного мозга на разных масштабах для изменения состояния сознания (A) Таламокортикальные контуры, вовлеченные в состояние сознания. Матричные клетки таламуса (фиолетовые) являются важными мишенями ретикулярной активирующей системы. Они взаимно связаны с нейронами ttL5B (темно-синие) и идеально расположены для модуляции их возбудимости. Нейроны L6B, управляемые орексином, дополнительно модулируют эти таламокортикальные взаимодействия. (B) Во время бодрствования матричные входы таламуса возбуждают пирамидальные нейроны L5 через метаботропные глутаматергические входы к косым дендритам, позволяя кальциевым спайкам в апикальных дендритах влиять на соматическую активность. Под общей анестезией, в отсутствие таламического возбуждения, пирамидальные нейроны L5 не способны распространять сигналы от дендритов к соме, что способствует функциональному разобщению областей мозга. Рисунок адаптирован с разрешения Suzuki and Larkum.⁸⁰ (C) Минимально достаточный механизм, посредством которого DBS центрального латерального ядра (CL) таламуса восстанавливает или нарушает сознание. Верхняя часть: таламокортикальные (TC), прямые (FF) и обратные (FB) связи, наиболее измененные стимуляцией таламуса, которая успешно обращала общую анестезию (пропофол и изофлуран) у макак. Высокочастотная (50 Гц) DBS таламуса, одновременно подаваемая через 16 контактов линейного электрода (с шагом 200 мкм), центрированного в CL, имитирует паттерны активности бодрствующего состояния (желтый цвет), характерные для таламокортикальных эфферентов. Это увеличивает частоту разрядов в глубоких слоях коры (желтый цвет), что восстанавливает внутриколоночные, прямые и обратные связи на альфа- и гамма-частотах, несмотря на тормозное давление анестезии. Адаптировано с разрешения Redinbaugh et al.⁸¹ Нижняя часть: низко- (10 Гц) и очень высокочастотная (200 Гц) DBS, центрированная в CL, у бодрствующих макак вместо этого вызывает «пустое» состояние, схожее с симптомами абсансной эпилепсии. Низкая активность в таламусе и глубоких слоях коры (синий цвет) приводит к нарушению связей в теменных внутриколоночных контурах и разрыву прямых связей (светлая штриховка). На основе результатов Redinbaugh et al.⁸² (D) Крупномасштабная кортико-таламическая модель нейронных масс (включающая матричные и ядерные клетки таламуса), которая воспроизвела восстановление сознания при стимуляции таламуса после пропофоловой анестезии у макак. Симуляция стимуляции матричных, но не ядерных, клеток повышала кортикальную возбудимость, обеспечивая передачу информации между областями и более сложную, менее стереотипную динамику. На макроуровне это отразилось в «уплощении» общемозгового энергетического ландшафта, что типично для состояния бодрствования. Рисунок воспроизведен с разрешения Müller et al.⁸³
Автор: Whyte, Christopher J. et al. Neuron, Volume 112 Источник: www.cell.com
Как включить мозг: механизм бодрствования

Между глубокими слоями коры и таламусом существует постоянная петля обратной связи: глубокие слои коры посылают сигналы в таламус, а таламус отвечает им обратно. Ключевую роль в этой петле играют матричные нейроны.

Когда вы бодрствуете, эта петля активна. Сигналы курсируют, поддерживая кору в «горячем», готовом к работе состоянии. Что происходит под общей анестезией? Анестетики не выключают кору напрямую. Они разрывают именно эту связь между корой и таламусом. Петля замолкает, и сознание гаснет.

Здесь кроется самое интересное. Эксперименты с глубокой стимуляцией мозга (DBS) показали, что если подать электрический импульс на определенные участки таламуса у пациента под наркозом, эту петлю можно запустить принудительно. Результат? Человек начинает проявлять признаки сознания, даже пока анестетик все еще действует.

Таламус, а точнее его матричные нейроны, не просто реагирует на сигналы пробуждения от ствола мозга. Он является активным участником, который «включает» кору и делает сознательный опыт возможным.

Хорошо, «свет» включили. Но что именно мы увидим на «экране»?
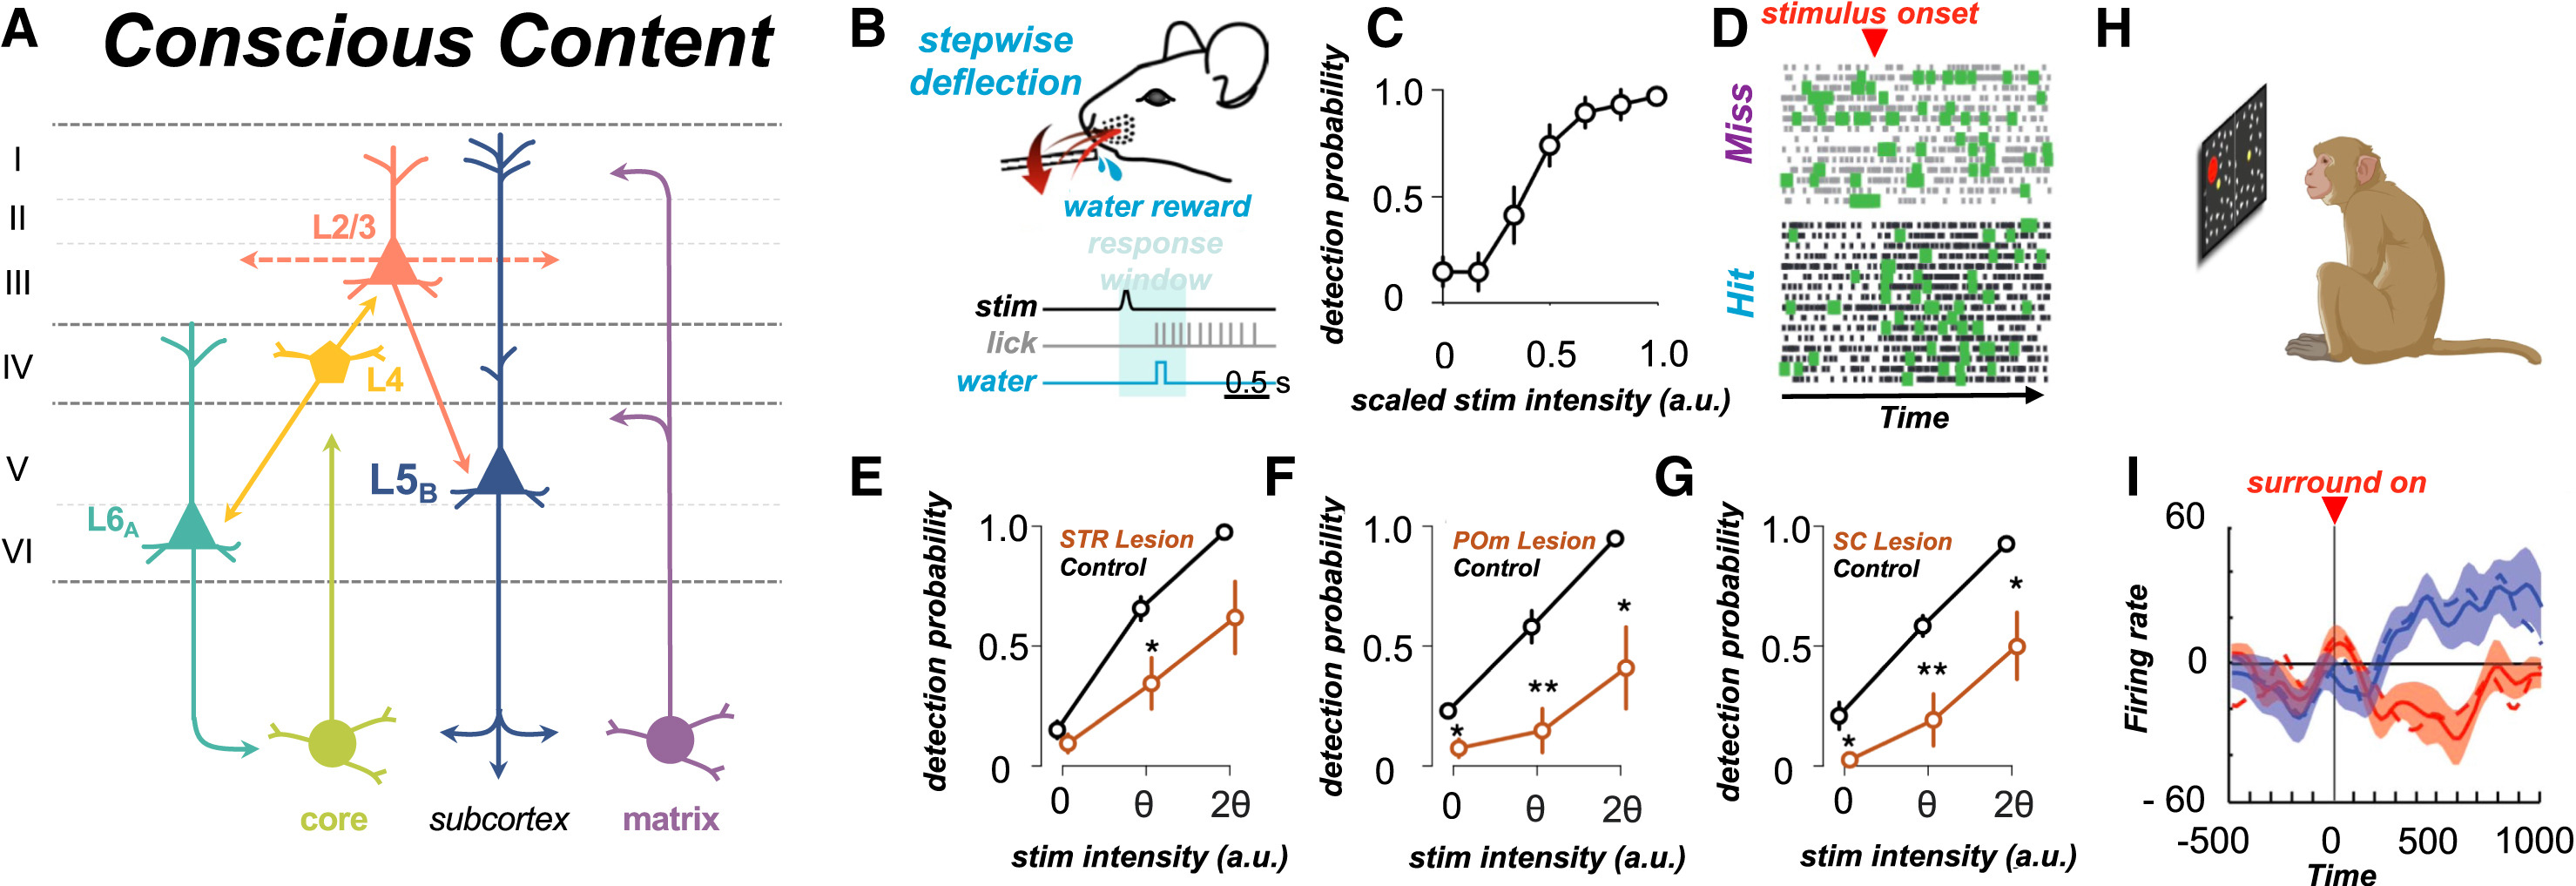
Вклад таламуса в содержание сознания (A) Гипотетический таламокортикальный контур, поддерживающий содержание сознания. Матричные клетки таламуса (фиолетовые) проецируются к апикальным дендритам клеток ttL5B (темно-синие) и пирамидальных клеток L2/3 (оранжевые), а также к косым дендритам клеток ttL5B в слое L5A. Проекции к косым дендритам деполяризуют ствол клетки через действие метаботропных глутаматергических (и холинергических) рецепторов, что, как было предположено и показано, облегчает связь между апикальным и соматическим компартментами, позволяя натриевым спайкам распространяться в обратном направлении от сомы к апикальным дендритам, способствуя генерации кальциевых спайков, и наоборот. И матричные, и ядерные (светло-зеленые) клетки таламуса получают управляющие (драйверные) входы от клеток ttL5B. Ядерные клетки посылают управляющие проекции к IT-клеткам L4 и пирамидальным клеткам L2/3 (не показано). IT-клетки L4 затем формируют замкнутый возбуждающий контур с ядерными клетками через нейроны L6A (голубые). Аналогичным образом, возбуждающий выход из клеток L4 нацелен на базальные дендриты клеток ttL5B через слой L2/3. (B) Иллюстрация парадигмы порогового обнаружения, использованной в исследованиях Takahashi и его коллег.¹⁶,¹⁴⁵ (C) Психометрическая функция, показывающая вероятность ответа (среднее ± SD) как функцию (масштабированной) интенсивности стимула у мышей во время сеансов записи. (D) Пример растровых графиков для сомы клеток ttL5B в пробах с попаданием (hit) и промахом (miss). Редкие вспышки (зеленый цвет) происходят в обоих условиях, но в пробах с попаданием они синхронизированы по времени с началом стимула. (E–G) Вероятность обнаружения (среднее ± SEM) в парадигме порогового обнаружения как функция интенсивности стимула при сравнении контрольного условия с (E) торможением стриатума, (F) торможением POm или (G) торможением верхнего двухолмия, из работы Takahashi et al.¹⁶ (H) Обобщенная парадигма подавления вспышкой, использованная Wilke et al.¹⁴⁶ Обезьяны фиксировали взгляд на центральной точке в течение 1,5 с, после чего на периферии зрения появлялся целевой стимул (красный диск). Через 2 с после появления целевого стимула появлялся окружающий узор, делая целевой стимул невидимым с вероятностью, пропорциональной плотности узора. Обезьян обучали сообщать об исчезновении стимула нажатием на рычаг. (I) Средняя частота разрядов (±SEM) нейронов в дорсальной и вентральной подушке таламуса, активность которых подавлялась при исчезновении стимула (красный) или активировалась при исчезновении стимула (синий). Пунктирные линии показывают реакции подушки таламуса на физическое удаление стимула, в то время как сплошные линии показывают реакции подушки на воспринимаемое исчезновение. (B)–(I) были воссозданы с разрешения Takahashi et al.¹⁶,¹⁴⁵ и Wilke et al.¹⁴⁶
Вклад таламуса в содержание сознания (A) Гипотетический таламокортикальный контур, поддерживающий содержание сознания. Матричные клетки таламуса (фиолетовые) проецируются к апикальным дендритам клеток ttL5B (темно-синие) и пирамидальных клеток L2/3 (оранжевые), а также к косым дендритам клеток ttL5B в слое L5A. Проекции к косым дендритам деполяризуют ствол клетки через действие метаботропных глутаматергических (и холинергических) рецепторов, что, как было предположено и показано, облегчает связь между апикальным и соматическим компартментами, позволяя натриевым спайкам распространяться в обратном направлении от сомы к апикальным дендритам, способствуя генерации кальциевых спайков, и наоборот. И матричные, и ядерные (светло-зеленые) клетки таламуса получают управляющие (драйверные) входы от клеток ttL5B. Ядерные клетки посылают управляющие проекции к IT-клеткам L4 и пирамидальным клеткам L2/3 (не показано). IT-клетки L4 затем формируют замкнутый возбуждающий контур с ядерными клетками через нейроны L6A (голубые). Аналогичным образом, возбуждающий выход из клеток L4 нацелен на базальные дендриты клеток ttL5B через слой L2/3. (B) Иллюстрация парадигмы порогового обнаружения, использованной в исследованиях Takahashi и его коллег.¹⁶,¹⁴⁵ (C) Психометрическая функция, показывающая вероятность ответа (среднее +- SD) как функцию (масштабированной) интенсивности стимула у мышей во время сеансов записи. (D) Пример растровых графиков для сомы клеток ttL5B в пробах с попаданием (hit) и промахом (miss). Редкие вспышки (зеленый цвет) происходят в обоих условиях, но в пробах с попаданием они синхронизированы по времени с началом стимула. (E-G) Вероятность обнаружения (среднее +- SEM) в парадигме порогового обнаружения как функция интенсивности стимула при сравнении контрольного условия с (E) торможением стриатума, (F) торможением POm или (G) торможением верхнего двухолмия, из работы Takahashi et al.¹⁶ (H) Обобщенная парадигма подавления вспышкой, использованная Wilke et al.¹⁴⁶ Обезьяны фиксировали взгляд на центральной точке в течение 1,5 с, после чего на периферии зрения появлялся целевой стимул (красный диск). Через 2 с после появления целевого стимула появлялся окружающий узор, делая целевой стимул невидимым с вероятностью, пропорциональной плотности узора. Обезьян обучали сообщать об исчезновении стимула нажатием на рычаг. (I) Средняя частота разрядов (+-SEM) нейронов в дорсальной и вентральной подушке таламуса, активность которых подавлялась при исчезновении стимула (красный) или активировалась при исчезновении стимула (синий). Пунктирные линии показывают реакции подушки таламуса на физическое удаление стимула, в то время как сплошные линии показывают реакции подушки на воспринимаемое исчезновение. (B)-(I) были воссозданы с разрешения Takahashi et al.¹⁶,¹⁴⁵ и Wilke et al.¹⁴⁶
Автор: Whyte, Christopher J. et al. Neuron, Volume 112 Источник: www.cell.com
Что именно мы осознаем? Таламус за пультом

Здесь в игру вступают ядерные нейроны. Они отвечают за то, какая именно информация станет частью сознательного опыта.

Возьмем простой пример: попытка расслышать тихий шорох в ночной тишине. Сигнал от ушей идет в мозг, но станет ли он осознанным? Оказывается, это во многом зависит от активности в петле между корой и ядерными нейронами таламуса.

Исследования на животных показали: когда слабый сенсорный стимул (например, легкое касание уса) осознается, в этой петле возникает специфическая вспышка активности. Если вспышки нет, стимул остается «за кадром», хоть органы чувств его и зафиксировали. Таламус буквально управляет порогом восприятия.

Более того, он обеспечивает стабильность нашего мира. Каждый раз, когда ваши глаза совершают быстрое движение (саккаду), изображение на сетчатке смазывается и смещается. Почему же мир не дергается перед глазами несколько раз в секунду? Потому что таламус получает копию команды на движение глаз и заранее «готовит» кору, обеспечивая бесшовное восприятие. Он сглаживает переходы между кадрами.
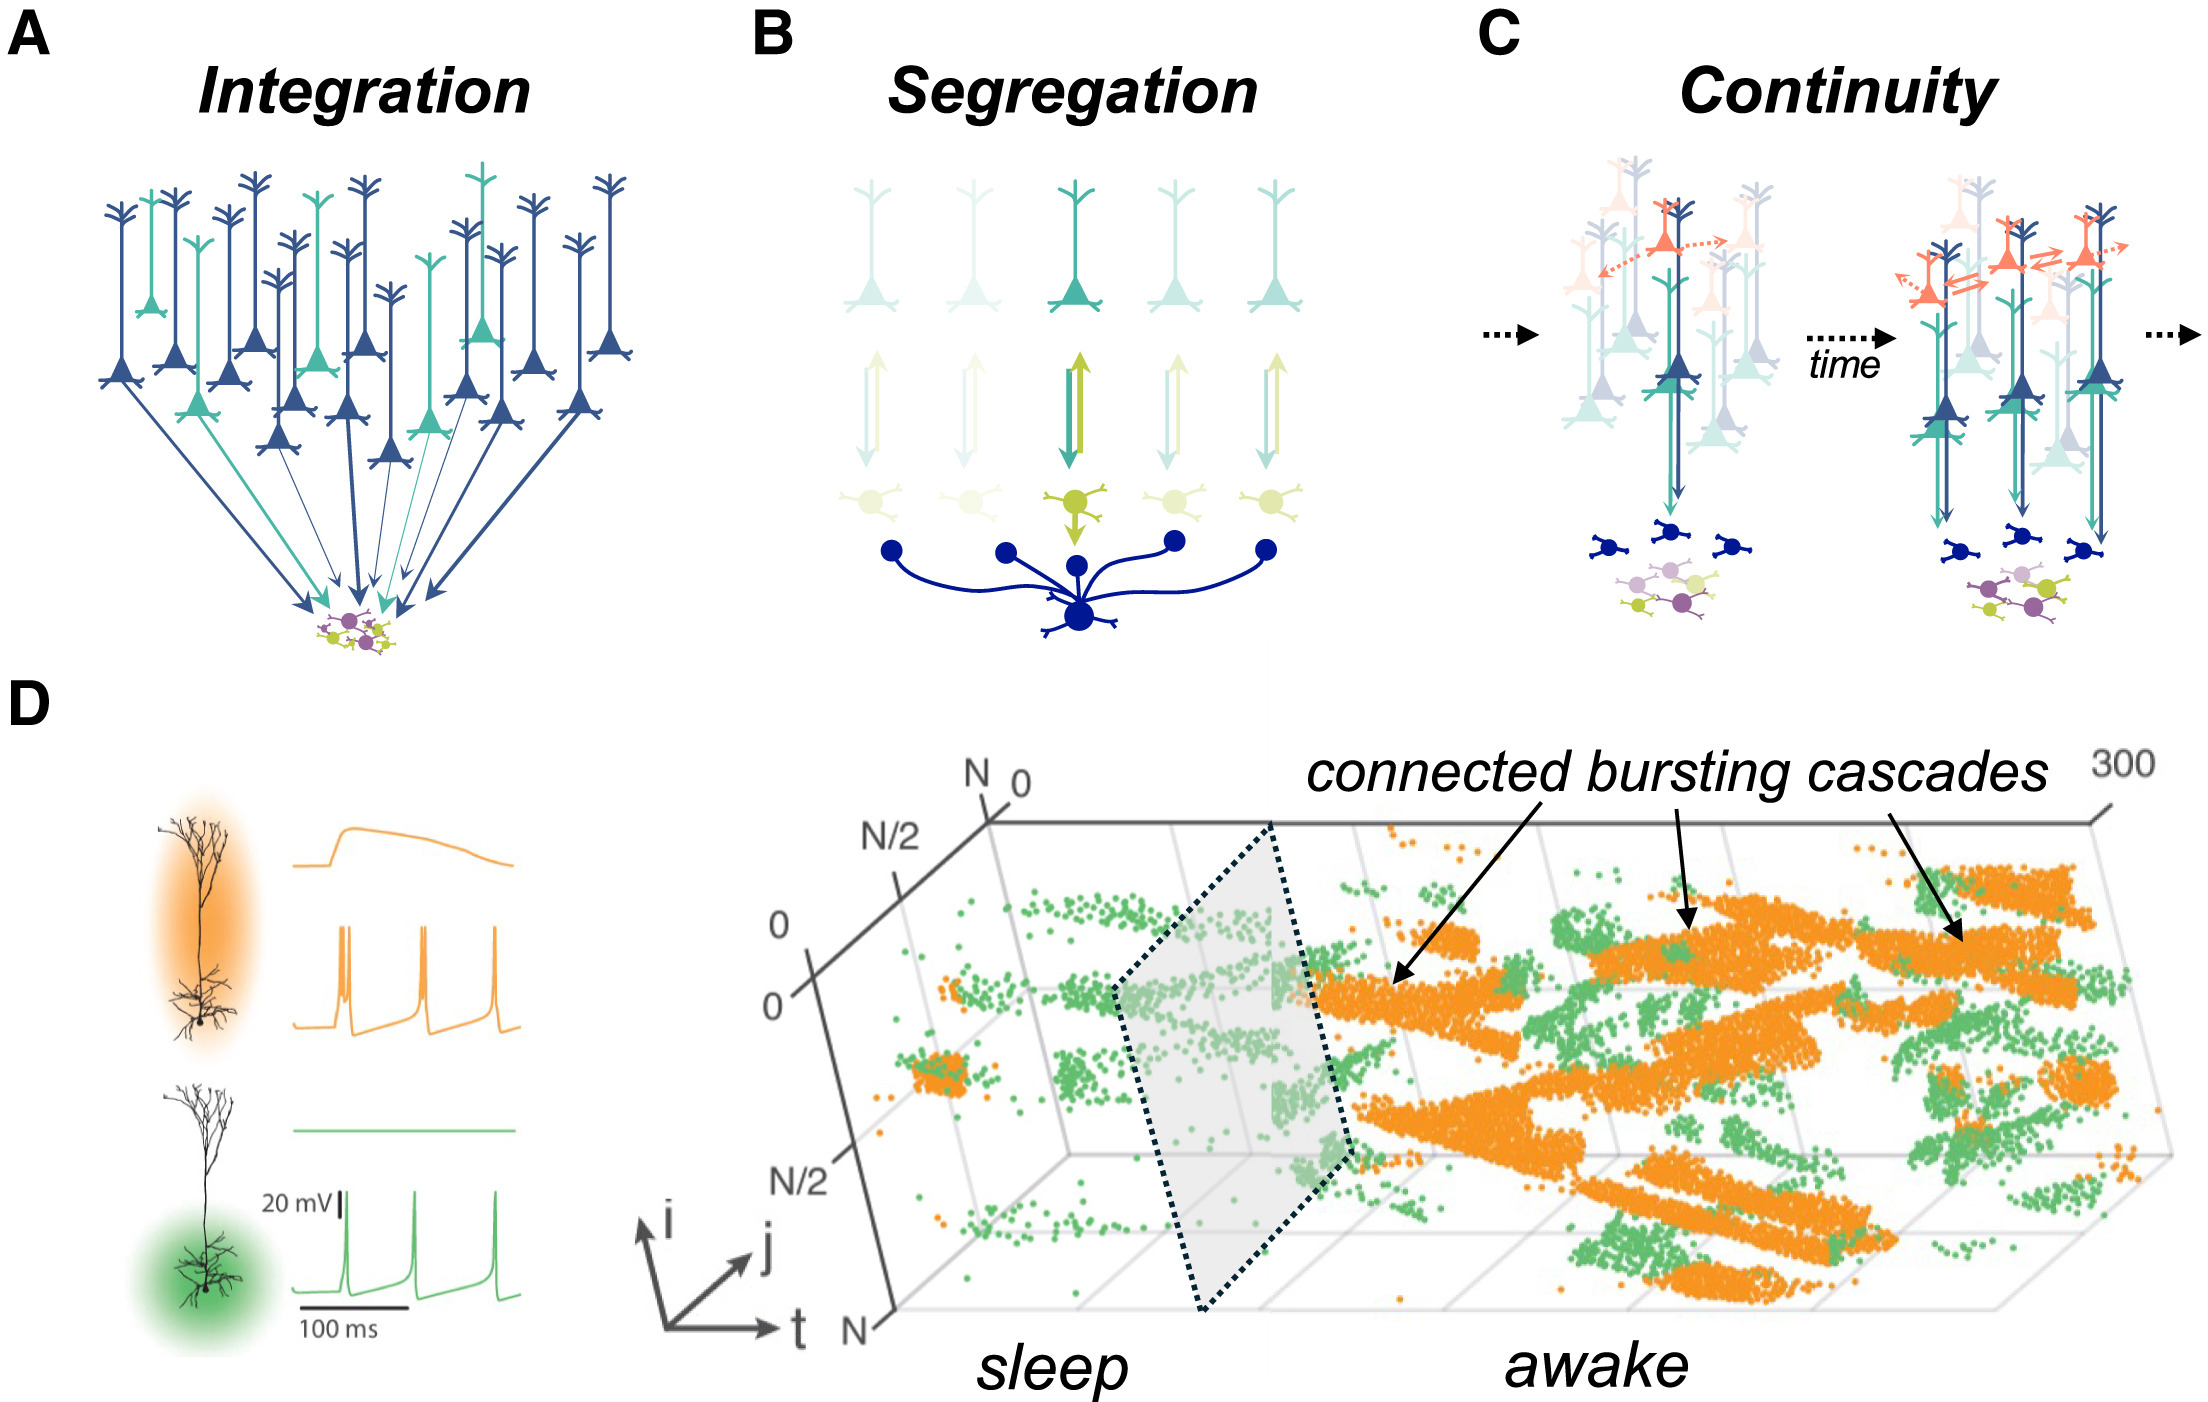
Вклад таламуса в характер содержания сознания (A–C) Ограничения, налагаемые на текущую динамику организацией таламуса, могут помочь объяснить ключевые особенности обработки сознательной информации, такие как (A) интеграция, которая, как мы утверждаем, возникает в результате снижения размерности, налагаемого сходящимися входами на меньшее количество клеток в таламусе (нижний ряд) по сравнению с корой головного мозга (верхний ряд); (B) сегрегация, которая является естественным побочным продуктом процесса, подобного разделяющей нормализации, возникающего из-за зависимого от активности привлечения тормозного ретикулярного ядра таламуса (темно-синий); и (C) непрерывность, при которой сочетание управляющей (драйверной) и модулирующей ролей в таламусе налагает
Вклад таламуса в характер содержания сознания (A-C) Ограничения, налагаемые на текущую динамику организацией таламуса, могут помочь объяснить ключевые особенности обработки сознательной информации, такие как (A) интеграция, которая, как мы утверждаем, возникает в результате снижения размерности, налагаемого сходящимися входами на меньшее количество клеток в таламусе (нижний ряд) по сравнению с корой головного мозга (верхний ряд); (B) сегрегация, которая является естественным побочным продуктом процесса, подобного разделяющей нормализации, возникающего из-за зависимого от активности привлечения тормозного ретикулярного ядра таламуса (темно-синий); и (C) непрерывность, при которой сочетание управляющей (драйверной) и модулирующей ролей в таламусе налагает «эффект Матфея» на клеточные популяции, что дает импульс активности нейронам, связанным с текущим доминирующим таламокортикальным ансамблем. Цвета клеток в (A)-(C) соответствуют цветам на Рисунках 1, 2 и 3. (D) Была создана спайковая нейронная модель для имитации ключевой особенности клеток ttL5B, а именно, их перехода от режима регулярных спайков (зеленый; вход только к базальным дендритам) к режиму вспышек (оранжевый; одновременная активация апикальных и базальных дендритов), когда он управляется матричными входами таламуса. После настройки модели по электрофизиологическим данным, полученным от макак под анестезией/бодрствующих и естественно спящих, авторы показали, что область в пространстве параметров модели, которая лучше всего соответствует сну, была связана с преимущественно регулярной спайковой активностью (зеленые точки), тогда как в режиме бодрствования (следуя за серой пунктирной моделью), модельные нейроны ttL5B (встроенные в кортикальный слой размером N = 100 x 100) были способны переходить в режим вспышек, который, в свою очередь, запускал вспышки в синаптически связанных нейронах, приводя к устойчивой активности, которая могла когерентно распространяться по кортикальному слою — процесс, названный «связанные каскады вспышек». (D) было адаптировано из Munn et al.¹⁴⁸ с разрешения. Обратите внимание, что эти механизмы предназначены лишь для того, чтобы передать правдоподобные, но не исчерпывающие способы реализации каждой из этих особенностей.
Автор: Whyte, Christopher J. et al. Neuron, Volume 112 Источник: www.cell.com
Три кита нашего опыта: как таламус создает целостную реальность

Но роль таламуса еще глубже. Сама структура его связей с корой объясняет три фундаментальных свойства нашего сознания: его целостность, разделенность и непрерывность.

  1. Интеграция (Целостность). Почему яблоко воспринимается как единый объект — красное, круглое, гладкое, — а не как набор отдельных признаков? В коре мозга работают миллиарды нейронов, обрабатывающих эти признаки в разных зонах. А в таламусе нейронов на порядки меньше. Когда вся эта информация из коры сходится в таламусе, она неизбежно «сжимается». Этот процесс, известный как снижение размерности, заставляет мозг объединять разрозненные потоки данных в единый, интегрированный образ.
  2. Сегрегация (Разделенность). Как у вас получается сосредоточиться на этой статье, игнорируя шум за окном? Вокруг таламуса есть тормозная оболочка — ретикулярное ядро (TRN). Когда одна таламо-кортикальная петля (обрабатывающая текст) становится активной, она возбуждает TRN, которое, в свою очередь, подавляет соседние, конкурирующие петли (обрабатывающие шум). Это механизм, который позволяет одному потоку информации доминировать в сознании, отсекая все лишнее.
  3. Непрерывность. Почему сознание ощущается как плавный, непрерывный поток, а не набор случайных вспышек? Активная в данный момент таламо-кортикальная петля имеет преимущество. Ей проще оставаться активной или повлиять на то, какая петля активируется следующей. Возникает своего рода инерция, которая и создает ощущение плавного, непрерывного течения опыта.
Не просто реле, а центральный процессор

Таким образом, таламус предстает не пассивным посредником, а динамической системой управления. Он использует разные типы нейронов для двух ключевых задач: поддержания общего состояния бодрствования и формирования конкретного содержания нашего опыта.

Он сжимает информацию, чтобы создать целостный мир, отсекает лишнее, чтобы мы могли сфокусироваться, и обеспечивает плавность нашего восприятия.

Фундаментальный вывод заключается в том, что сознание — это не продукт одной лишь коры головного мозга. Это результат сложного и непрерывного взаимодействия между корой и таламусом, где каждая из структур выполняет свою незаменимую роль.

Изображение в превью:
Автор: Brian_chrischan CC BY-SA 3.0
Источник: commons.wikimedia.org
2 комментария

M
Да ну, процессор. Скорее просто синхронизатор, как в древних видеокартах.
H
Статья неплохая, но кликбейтный заголовок расходится с текстом, правильнее бы было «ключевая роль таламуса в образовании сознания».

Добавить комментарий

Сейчас на главной

Новости

Публикации

Керосинка наносит ответный удар. Ретро-дизайн и современная яркость. Обзор Moslighting MOS-M1

Огромная ёмкость аккумулятора, теплый и яркий нейтрально-белый свет, плавная регулировка яркости и уютная внешность старой-доброй «керосинки». Кемпинговый фонарик от Moslighting в очередной раз...

В холодную или кипящую воду класть картофель: почему результат получается разным

Казалось бы, что может быть проще варёной картошки? Почистили клубни, положили в кастрюлю, залили водой и поставили на плиту. Но даже здесь возникает вопрос, из-за которого хозяйки могут...

Красный плюс на светофоре: что означает этот сигнал и как правильно действовать водителю

На сложных перекрёстках в ряде стран можно встретить светофор с дополнительной секцией, в которой горит красный символ в виде плюса. Этот сигнал вызывает вопросы даже у опытных водителей, привыкших...

Почему нельзя ждать, пока гейзерная кофеварка зашипит, и зачем макать ее в холодную воду: как сварить дома густой кофе без горечи

Характерное бурление и шипение, которые раздаются из гейзерной кофеварки в конце ее работы, большинство людей воспринимают как сигнал о том, что кофе готов. Однако замеры температуры и давления...

Инструкция по сборке Вселенной: почему для симуляции одного человека хватит энергии настольной лампы

В чилийской пустыне Атакама, на высоте двух с половиной тысяч метров, работают телескопы Паранальской обсерватории. Свет далеких галактик, который улавливают здешние зеркала, летит сквозь космос...

Что, если мы уже поймали сигналы инопланетян, но приняли их за пульсары? Вычислить их поможет алгоритм общения светлячков

Программы поиска внеземных цивилизаций (SETI) с момента своего появления в середине XX века опирались на представления о технологиях, которыми в тот момент обладало само человечество....