Ученые вырастили организм, от которого произошла вся сложная жизнь. Внутри него не оказалось органов
Все живые существа на Земле делятся на две принципиально разные группы.
К первой относятся бактерии и археи. Их клетки устроены относительно просто: внутри нет изолированных отсеков, а генетический материал свободно плавает в цитоплазме.
Ко второй группе принадлежат эукариоты. Это мы с вами, а также все животные, растения, грибы и простейшие организмы вроде амеб. Клетка эукариот намного крупнее, и внутри нее работает развитая система специализированных структур: ядро защищает ДНК, эндоплазматическая сеть и аппарат Гольджи производят и сортируют белки, а митохондрии вырабатывают клеточную энергию.
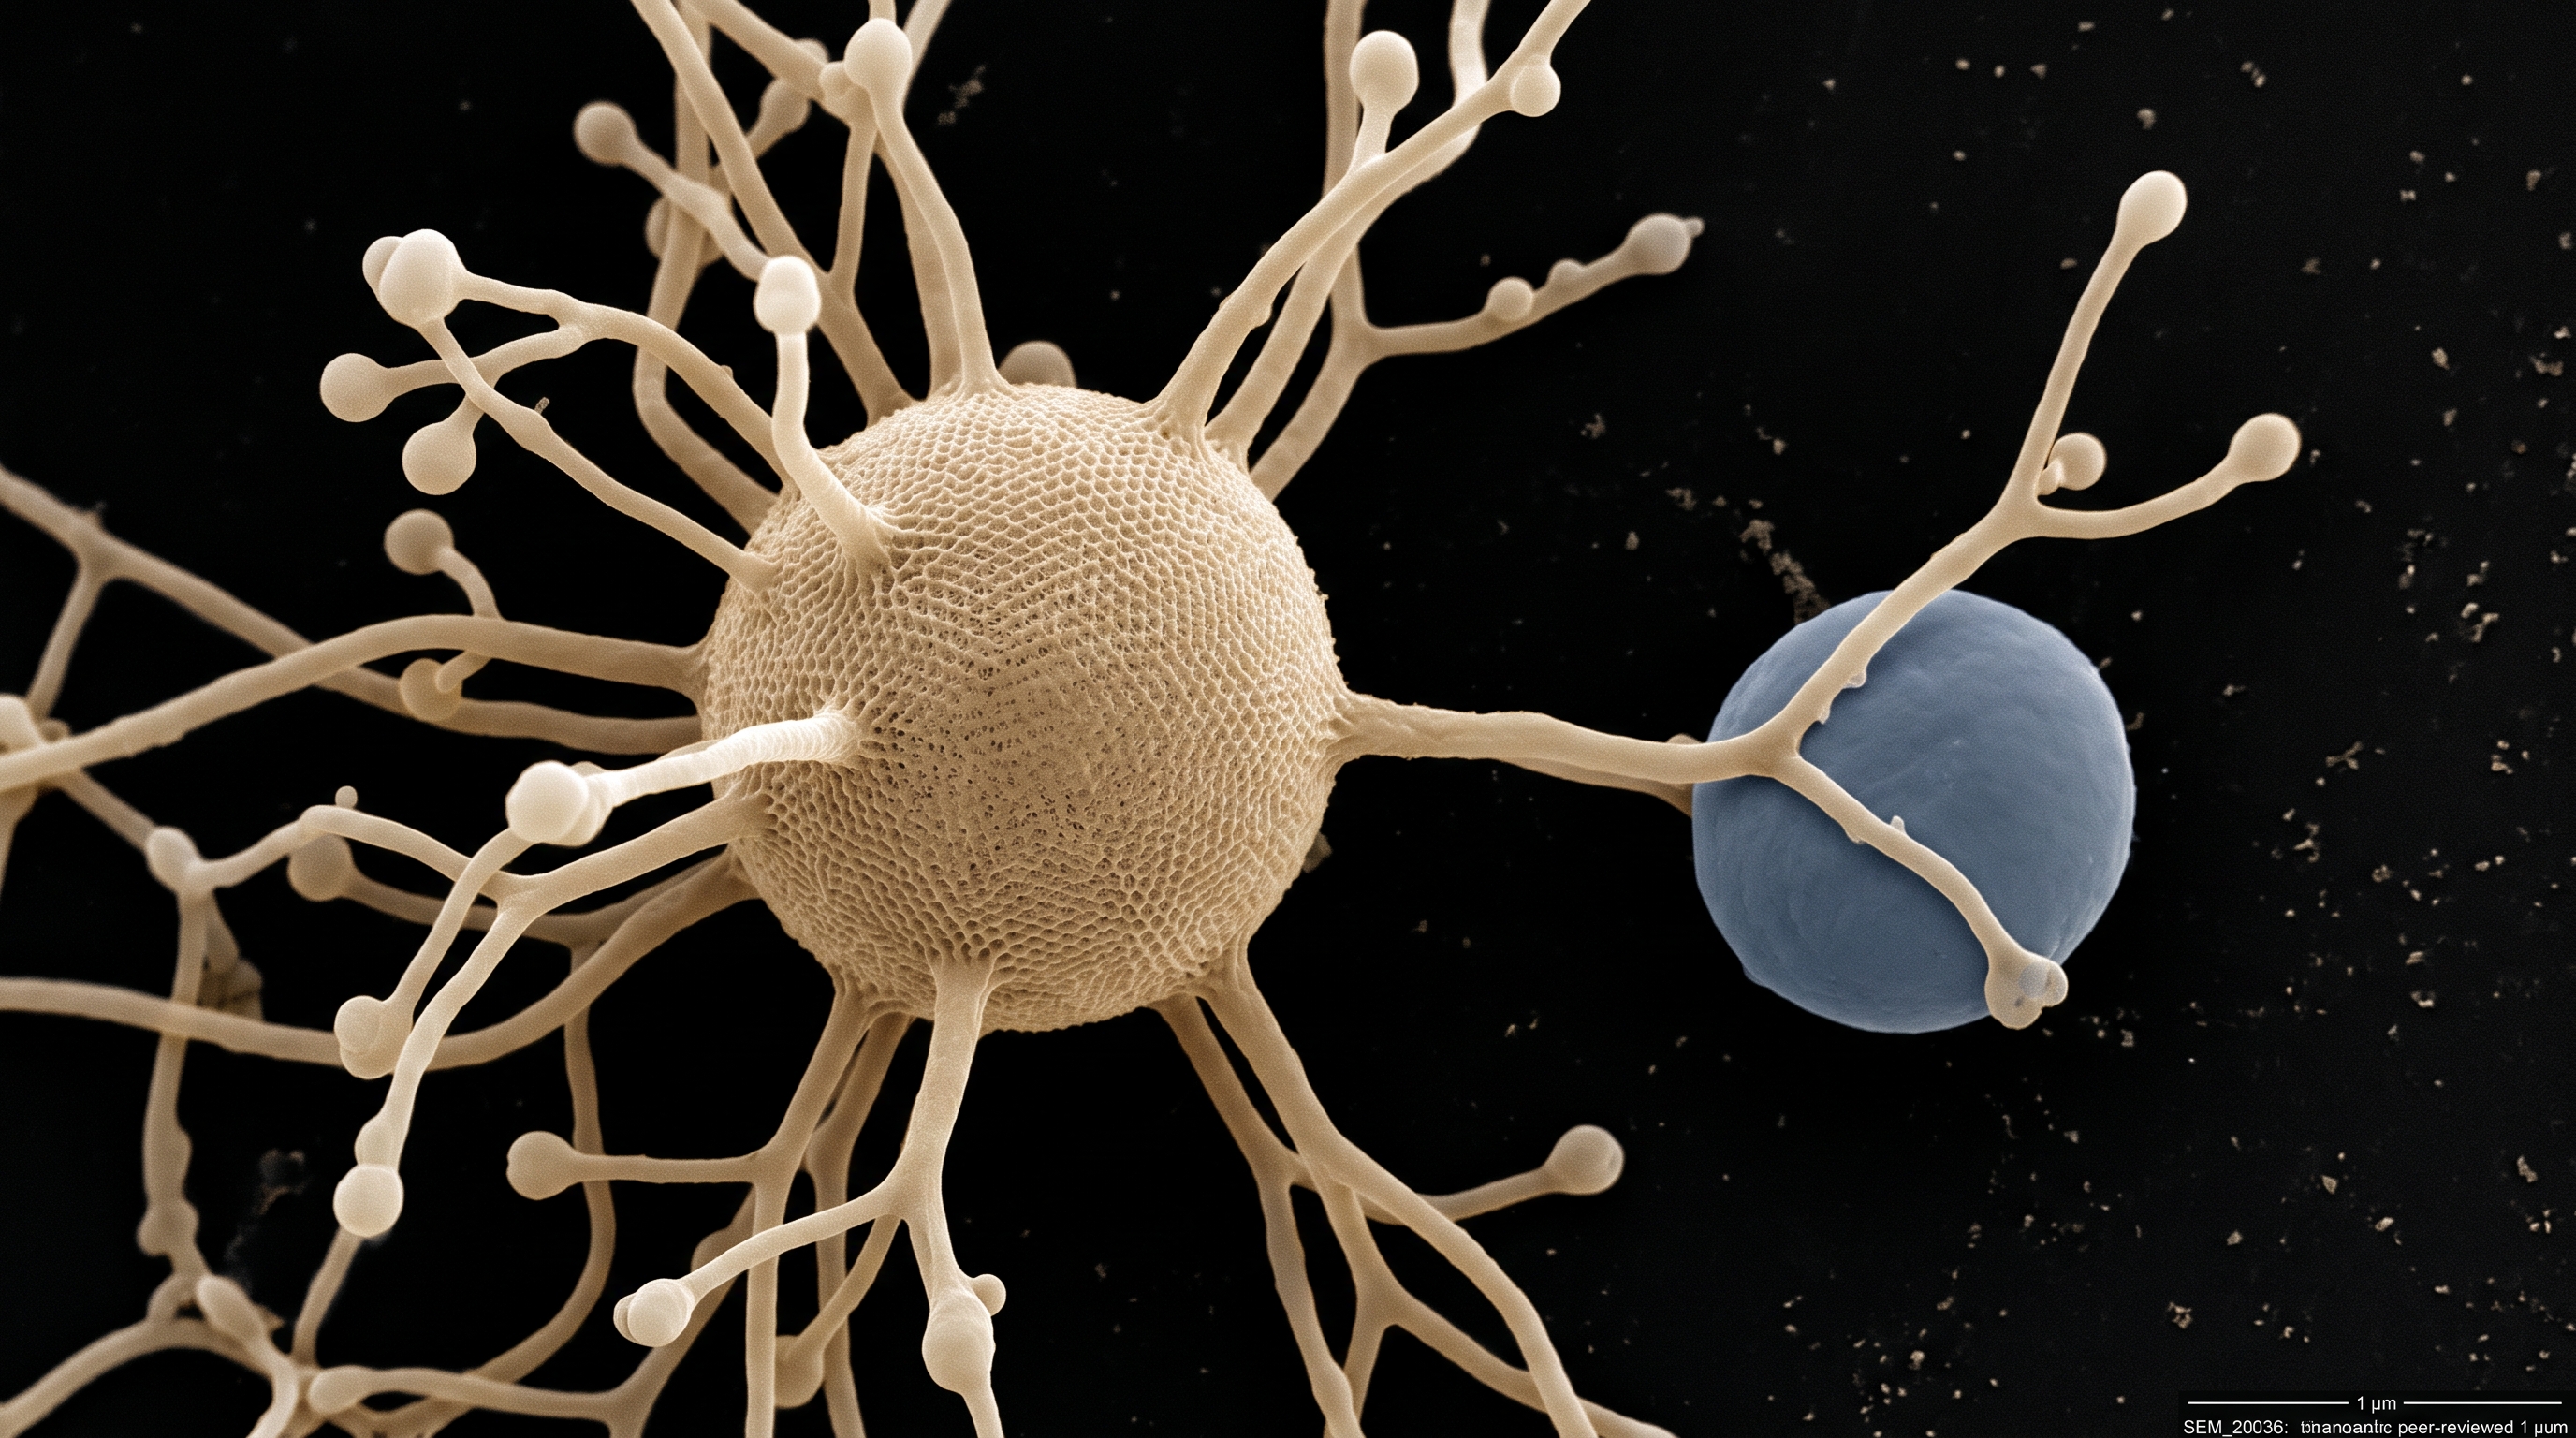
Биологи давно доказали, что эукариоты возникли в результате объединения двух простых организмов: некая древняя архея поглотила бактерию, которая не погибла, а прижилась внутри хозяина и превратилась в митохондрию. Этот процесс называют эукариогенезом.
Однако более полувека оставалось неизвестным, кем именно была эта исходная архея. Каким строением она обладала? Умела ли она дышать кислородом? Были ли в ее клетке зачатки сложной внутренней архитектуры еще до того, как она объединилась с бактерией?
Ответы на эти вопросы содержались в исследовании международной группы биологов во главе с Хироюки Имати и Масару Нобу из японского института JAMSTEC, опубликованном в журнале Nature. Ученым впервые удалось выделить из природы и вырастить в лаборатории живые культуры хеймдалльархей — микроорганизмов, которые генетически ближе всего стоят к общему предку всех сложных существ на планете. Результаты работы полностью изменили представления о том, с чего начиналась эволюция сложных форм жизни.
Содержание
- Метагеномный тупик: почему ученые спорили десять лет
- Подземный источник: три года непрерывной селекции
- Внутреннее устройство: никаких органелл
- Парадокс роста: увеличение объема вместо деления
- Метаболическая зависимость: жизнь в симбиозе
- Разрешение кислородного парадокса
- Механизмы детоксикации: защита вместо дыхания
- Реконструкция предка: как начинался эукариогенез
- Значение открытия для экспериментальной биологии
Метагеномный тупик: почему ученые спорили десять лет
В 2015 году биологи совершили переворот в систематике. Исследуя пробы грунта со дна Северного Ледовитого океана, генетики обнаружили фрагменты ДНК ранее неизвестной группы микроорганизмов, которую назвали асгард-археями. Позже внутри этой группы выделили класс хеймдалльархей (Heimdallarchaeia). Филогенетический анализ последовательностей ДНК показал: эукариоты произошли непосредственно от хеймдалльархей.
Это открытие изменило структуру биологического древа. Классическая модель трех доменов (бактерии, археи и эукариоты) уступила место модели двух доменов: эукариоты оказались не самостоятельной ветвью жизни, а глубоко специализированной дочерней группой внутри архей.
Однако все эти выводы строились на метагеномике — компьютерной сборке геномов из сотен тысяч фрагментов ДНК, извлеченных из ила. Никто никогда не видел этих существ живыми. Метагеномный анализ показал, что в ДНК хеймдалльархей закодировано множество белков, считавшихся визитной карточкой эукариот. В их числе были гены актина (белка цитоскелета), гены убиквитиновой системы (утилизации клеточных отходов) и гены белков, управляющих движением мембранных пузырьков.
Более того, в их геномах нашли последовательности, отвечающие за производство цитохром-оксидазы — белкового комплекса, с помощью которого аэробные организмы дышат кислородом.
На основе этих данных возникла популярная теория. Многие исследователи предположили, что общий предок архей и эукариот уже был весьма сложным существом: его клетка содержала внутренние мембраны, первичную систему сортировки веществ и могла использовать кислород для дыхания. Выходило, что архея подготовила все условия для сложной жизни самостоятельно, а бактерию захватила лишь на завершающем этапе.
Но компьютерная модель генома не равна живому организму. Присутствие гена не объясняет, как именно работает клетка, какую форму она принимает и в каких условиях способна расти. Чтобы проверить теорию, требовалось совершить то, что многие микробиологи считали невозможным: выделить чистую культуру этих медленно растущих глубоководных архей и изучить их под микроскопом.
Подземный источник: три года непрерывной селекции
Попытки вырастить асгард-архей на стандартных лабораторных средах терпели неудачу. Эти микробы обладают экстремально медленным обменом веществ, а лабораторные бактерии-загрязнители мгновенно обгоняют их в росте и вытесняют из культуры. Предыдущий опыт группы Имати по выращиванию другого, более дальнего родственника эукариот — локиархеи Promethearchaeum syntrophicum — занял двенадцать лет.
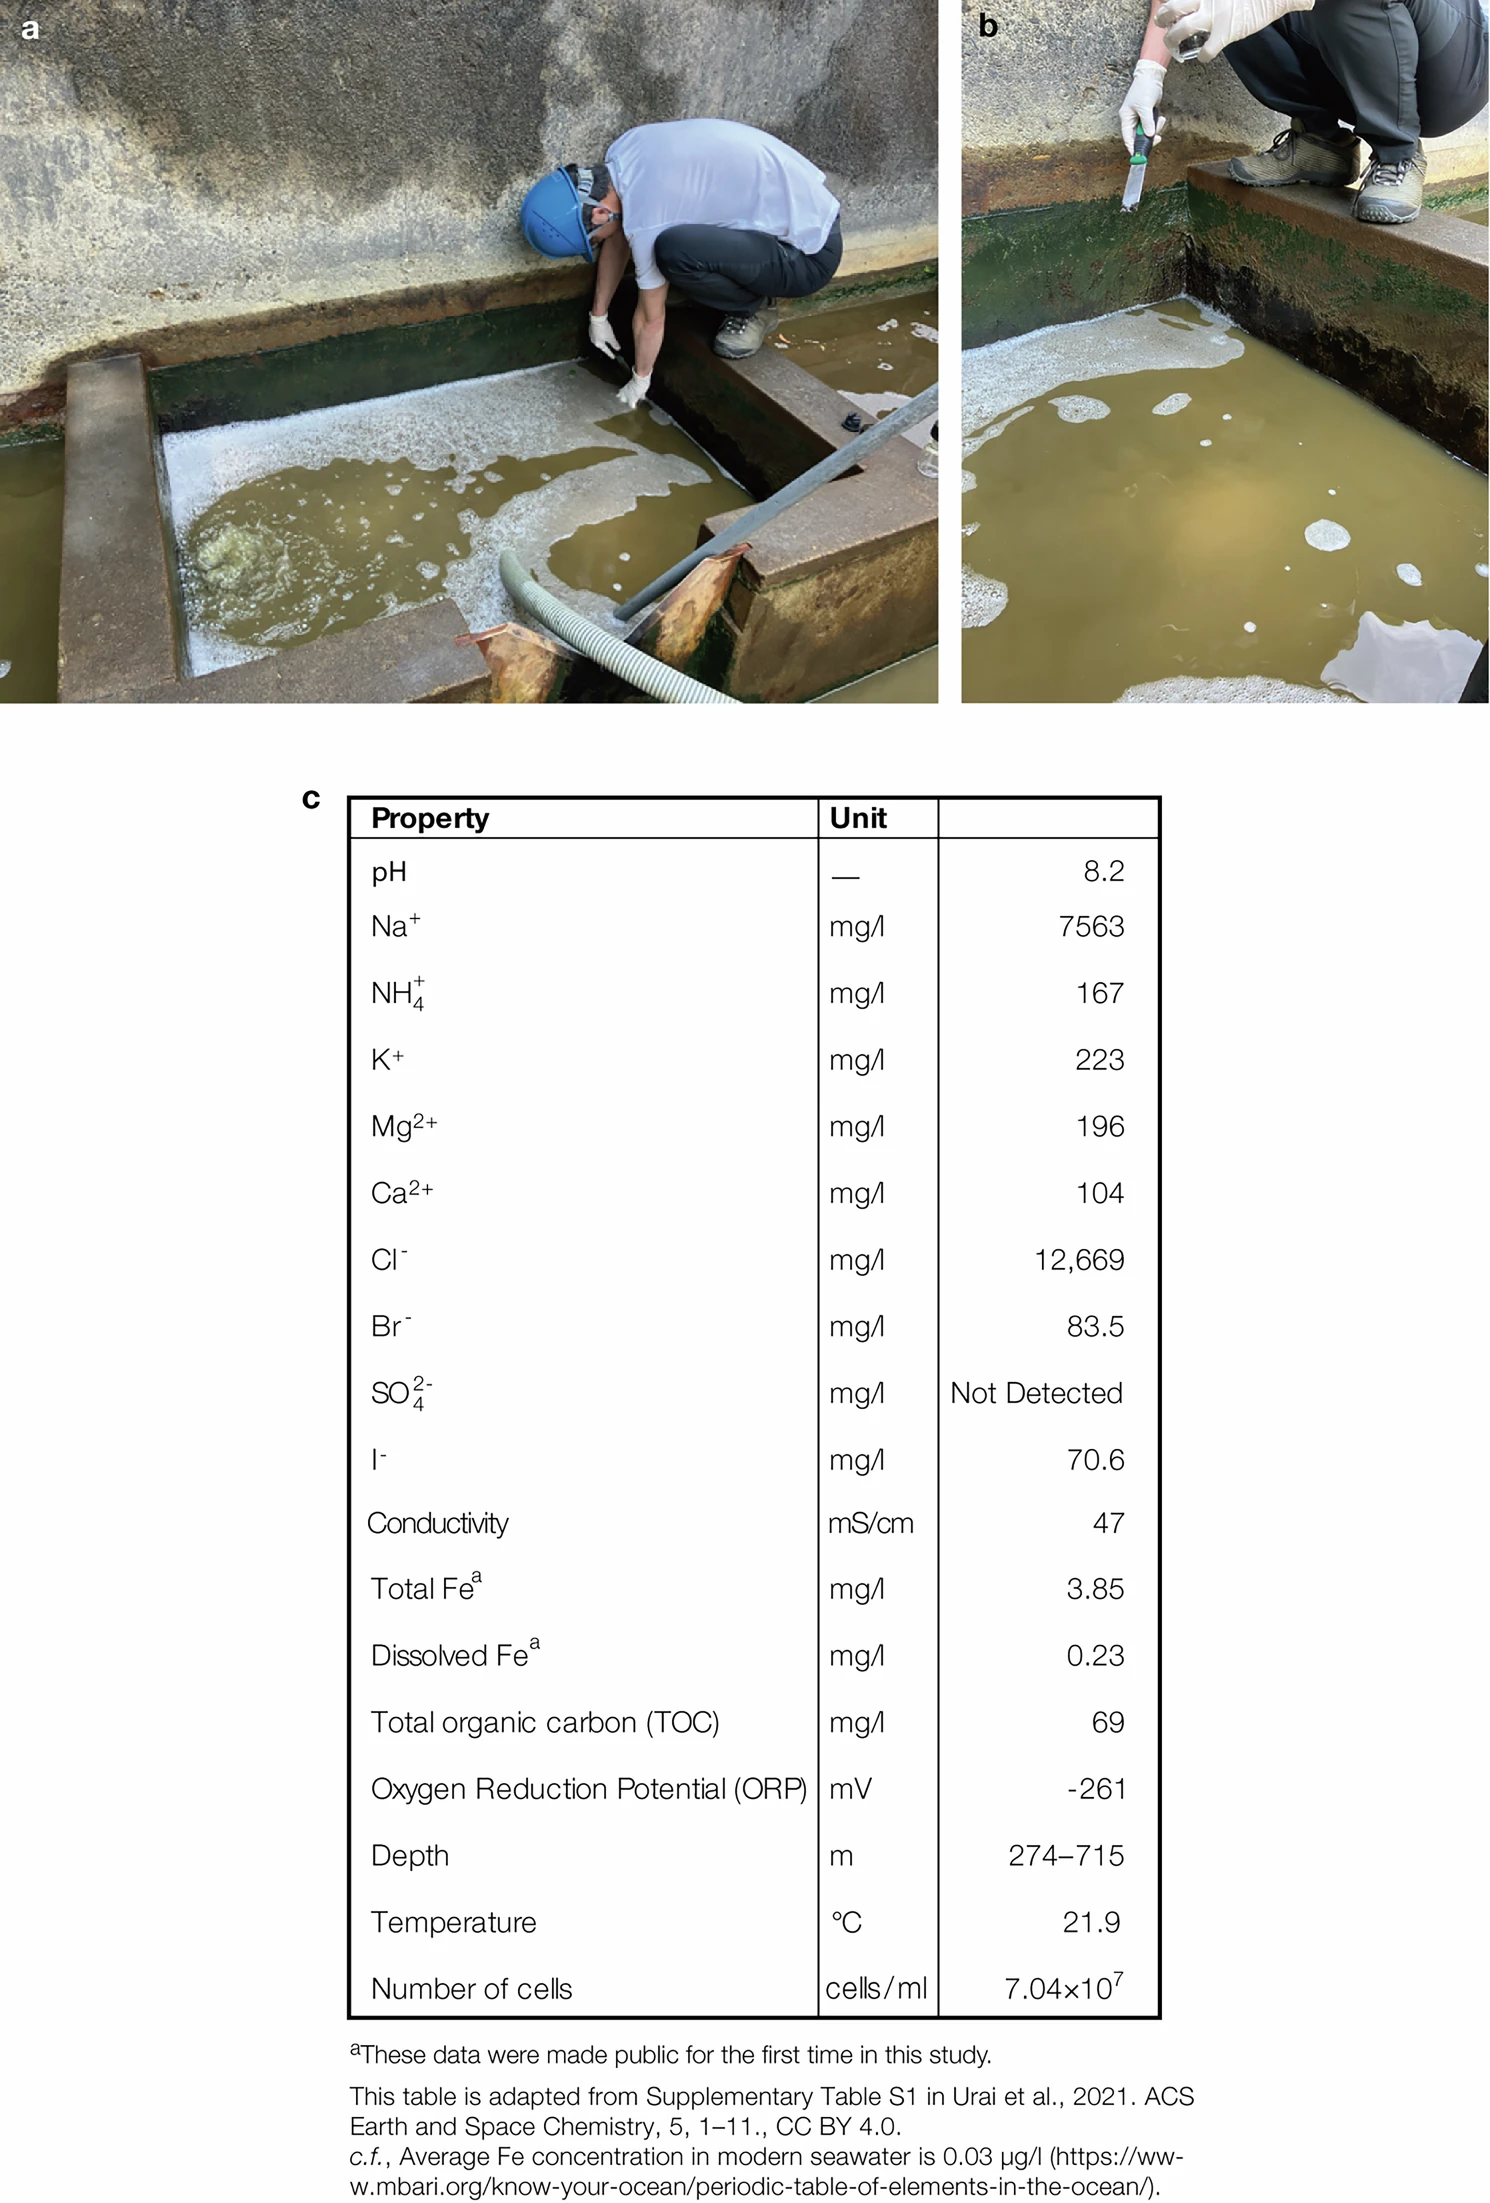
Чтобы найти хеймдалльархей, исследователи обратились к газодобывающей скважине KTG3 на полуострове Босо в Японии. Из пластов песчаника на глубине сотен метров на поверхность там поступает высокоминерализованный бескислородный рассол. Он содержит метан, железо, йод и растворенную древнюю органику. Геохимически эта жидкость повторяет состав морских осадочных вод далекого прошлого.
В скважине происходят регулярные выбросы жидкости, из-за чего уровень воды кратковременно опускается. Бактериальная пленка, покрывающая стенки трубы, на короткое время оказывается на воздухе, получая небольшие дозы кислорода, а затем снова погружается в бескислородный рассол. Исследователи предположили, что местное микробное сообщество приспособлено именно к тем условиям, в которых формировались первые предки эукариот.
Биологи взяли образцы биопленки и начали серию экспериментов в герметичных стеклянных сосудах. В питательную среду добавили природный рассол, измельченный минерал магнетит, белковые компоненты (казеин, пептон и сухое молоко) и набор из пяти антибиотиков, убивающих большинство обычных бактерий.
Селекция шла поэтапно. Каждые сто дней культуру пересевали в свежую питательную среду. Из нее намеренно удалили химические вещества, связывающие кислород, чтобы создать стабильную микрооксическую среду — растворенный кислород присутствовал в концентрации около 280 наномолей. В таких условиях выживали только микроорганизмы, способные переносить контакт с воздухом.
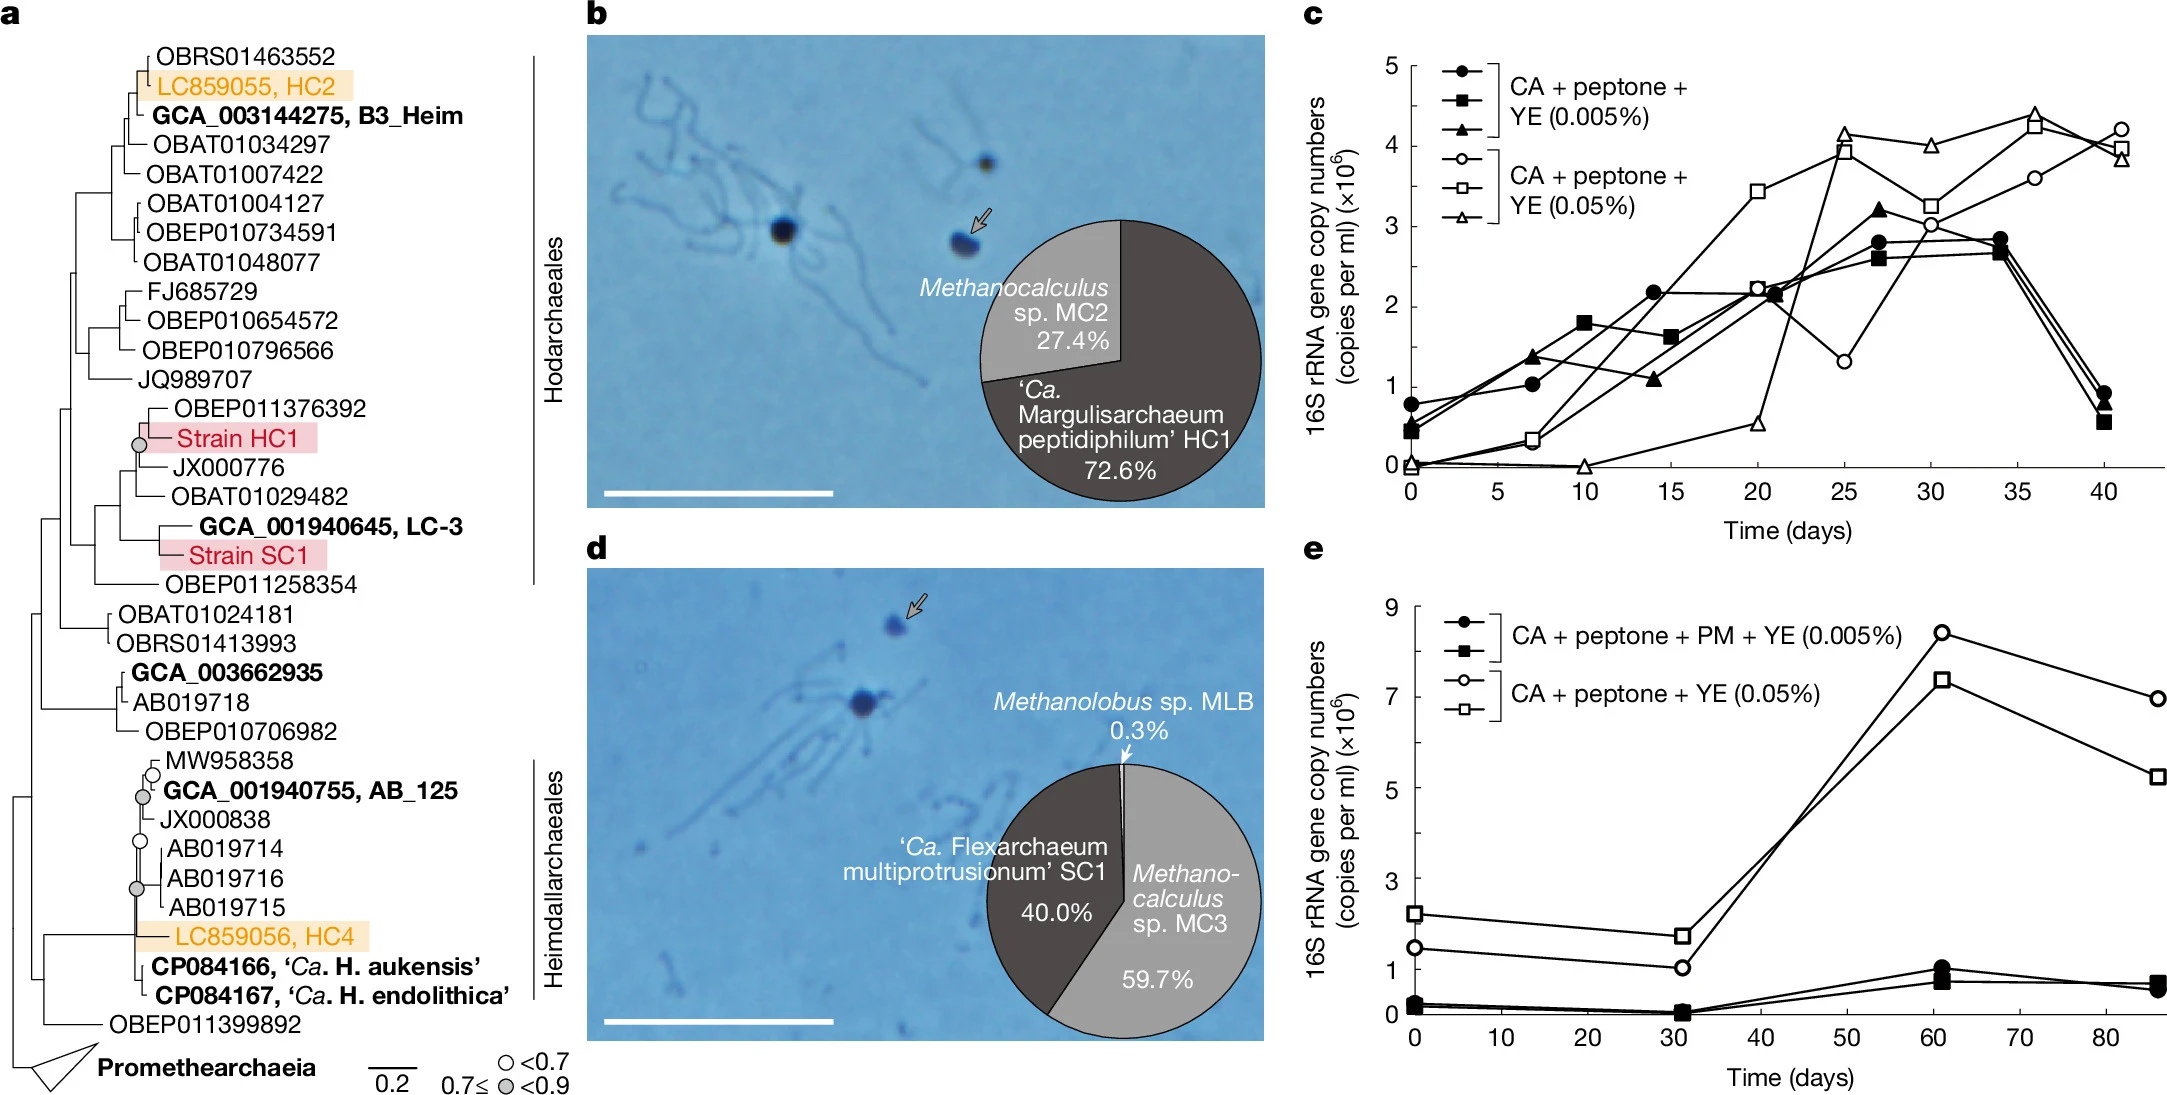
Спустя три года непрерывных пересевов и оптимизации температуры исследователи добились успеха. Они выделили два стабильных штамма:
- Штамм HC1, получивший научное название Candidatus Margulisarchaeum peptidiphilum (назван в честь Линн Маргулис, создательницы современной эндосимбиотической теории). Он рос в устойчивой со-культуре всего с одним партнером — метаногенной археей рода Methanocalculus.
- Штамм SC1, названный Candidatus Flexarchaeum multiprotrusionum. Он существовал в тройной культуре с двумя видами метаногенов.
Геном штамма HC1 секвенировали полностью: это замкнутая кольцевая молекула ДНК размером 7,91 миллиона пар оснований. Это самый большой геном среди всех известных представителей группы. По количеству эукариотических генов штамм HC1 вошел в верхние 25% среди всех исследованных архей. Он представлял собой идеальную модель для проверки строения клетки.
Внутреннее устройство: никаких органелл
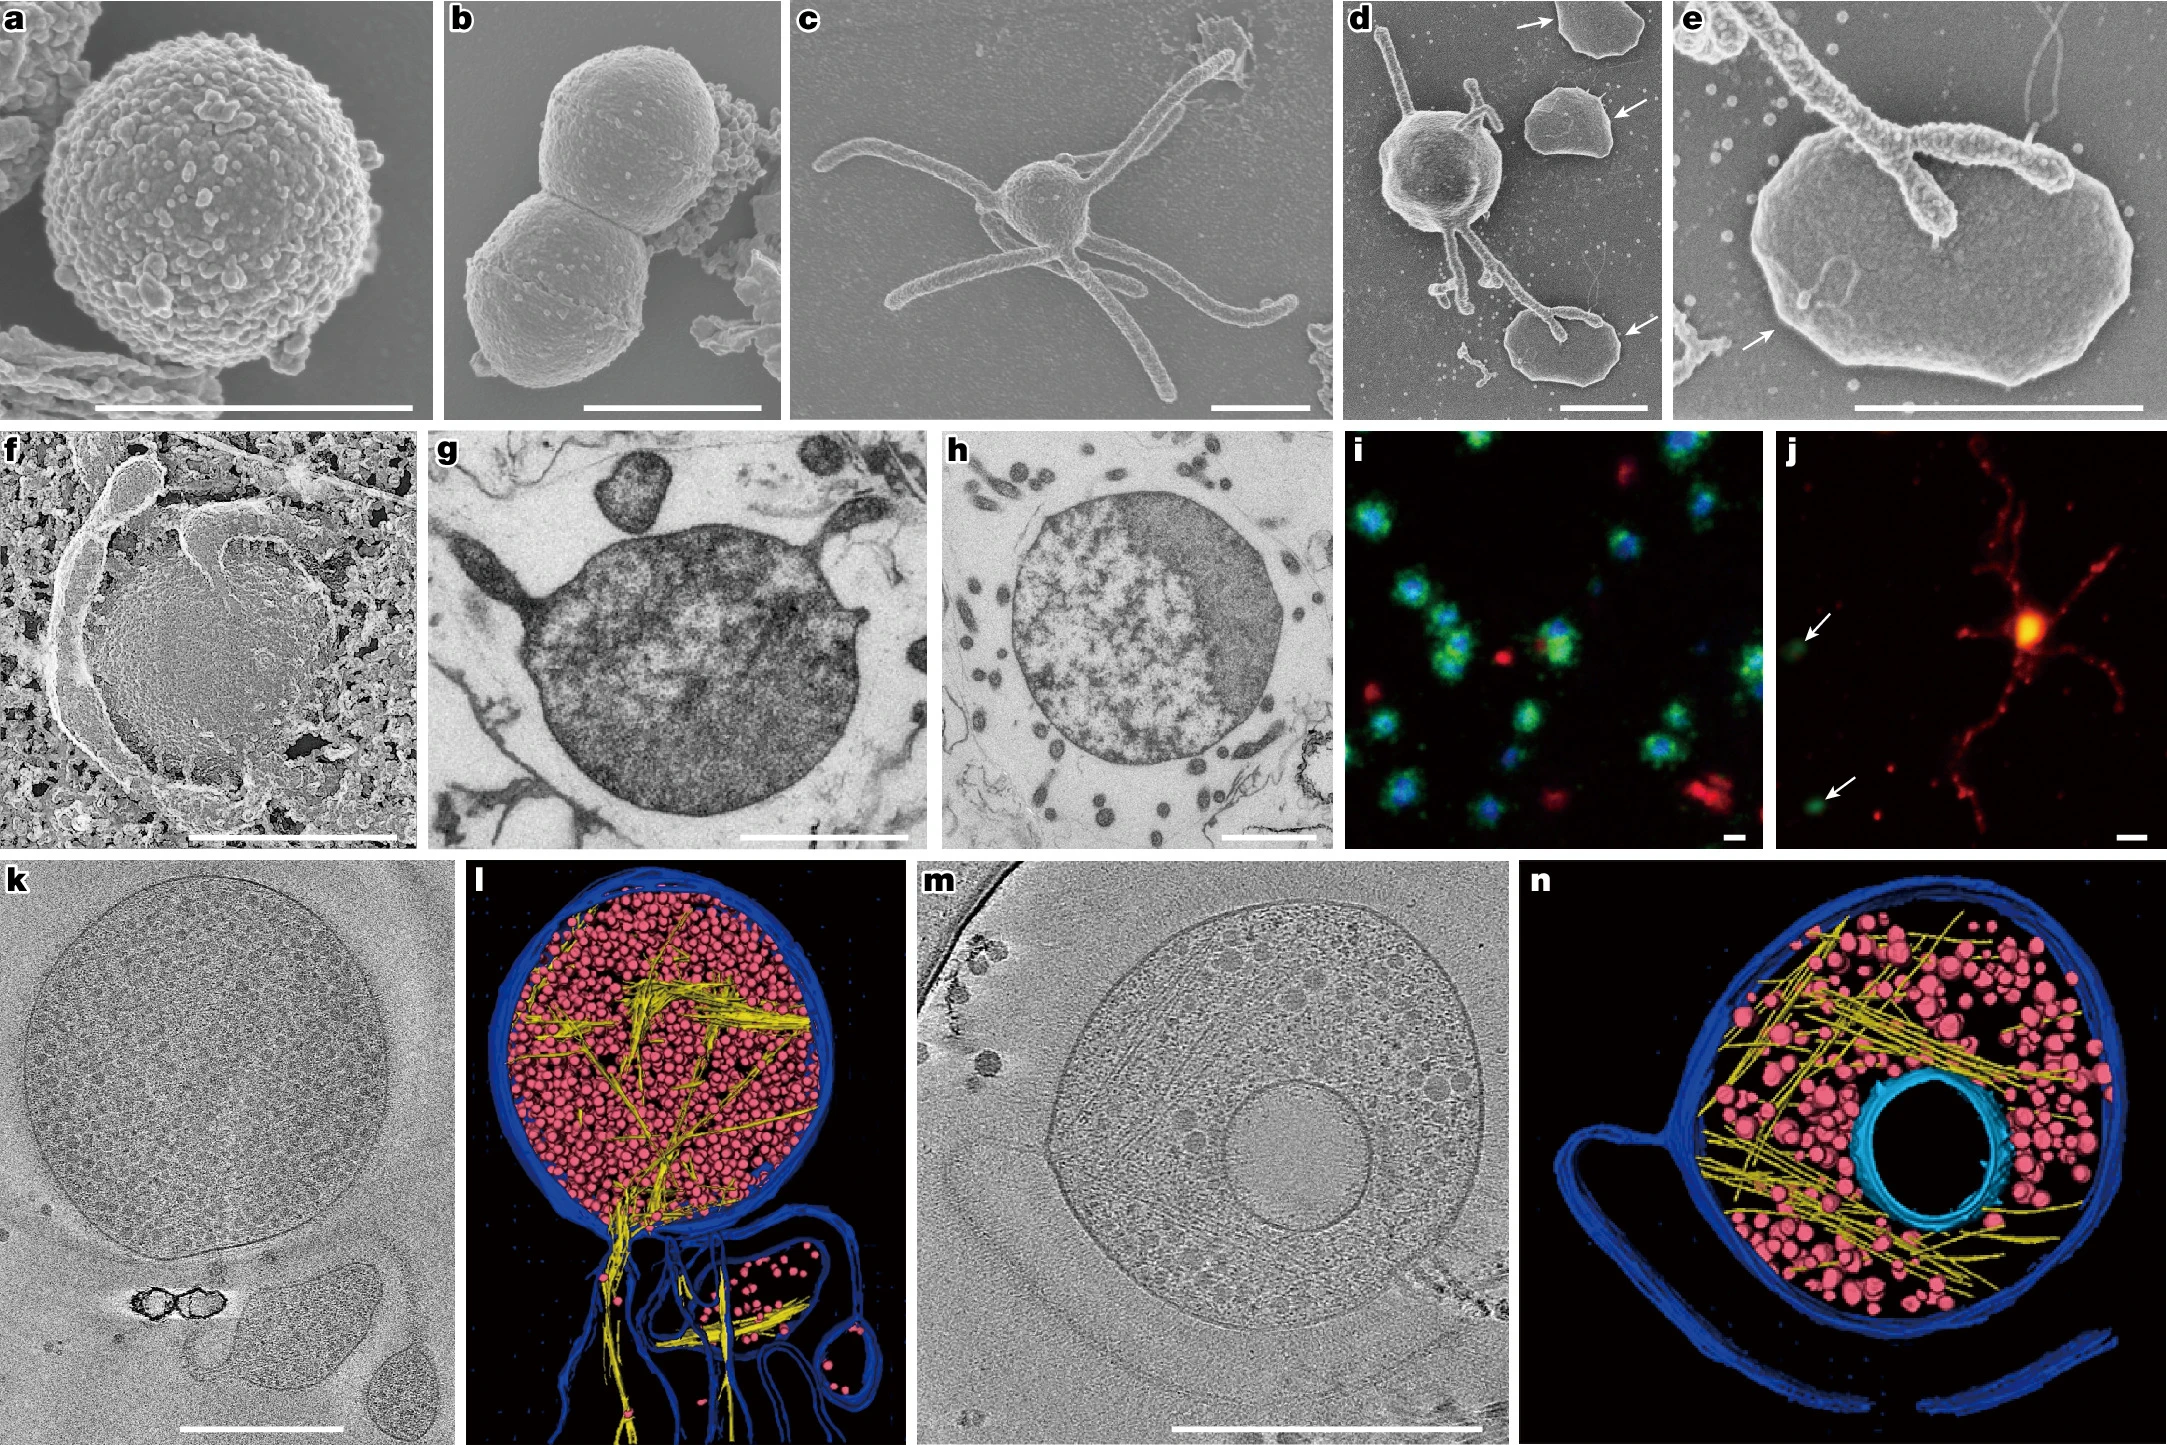
Ученые применили комплекс методов микроскопии: криоэлектронную томографию замороженных живых клеток, сканирующую микроскопию сверхвысокого разрешения и анализ ультратонких физических срезов.
Результат оказался однозначным: внутри клетки хеймдалльархей нет признаков эукариотической сложности.
У этих организмов отсутствуют постоянные внутренние мембранные структуры. В цитоплазме нет зачатков ядра, нет замкнутых мембранных трубок или пузырьков, характерных для эндоплазматической сети или аппарата Гольджи. Внутреннее пространство устроено строго по прокариотическому типу.
Лишь в редких случаях внутри отдельных клеток наблюдались единичные временные пузырьки, но они не образовывали стабильной взаимосвязанной транспортной системы. Это открытие опровергло гипотезу о том, что развитая мембранная система существовала у архей до захвата будущей митохондрии.
При этом клетка показала упорядоченную организацию других элементов:
- Разделение генетического материала и аппарата трансляции: флуоресцентная микроскопия выявила, что клеточная ДНК сосредоточена в центральной части клетки, тогда как рибосомная РНК оттеснена к периферии. Это разделение поддерживается белками-гистонами, которые сжимают ДНК в компактную массу.
- Полноценный актиновый скелет: белок локиактин формирует внутри цитоплазмы протяженные нити. Криоэлектронная микроскопия и моделирование с помощью алгоритмов AlphaFold3 подтвердили, что эти нити по своей геометрической структуре и параметрам спирали практически неотличимы от актиновых микрофиламентов человека.
- Внешняя оболочка: клетка покрыта симметричным белковым панцирем (S-слоем), состоящим из соединенных четверок одинаковых молекул с центральной сквозной порой. Белки этого слоя модифицированы прикрепленными сахарами точно так же, как поверхностные белки многих эукариот.
Парадокс роста: увеличение объема вместо деления
Морфологически клетки HC1 представляют собой шарики диаметром от 0,8 до 2,3 микрометра. Однако их поведение при наличии питательных веществ противоречит привычной микробиологической логике.
Если обычная бактерия получает избыток пищи, она начинает делиться с максимальной частотой. Штамм HC1 ведет себя противоположным образом. При десятикратном увеличении концентрации питательных веществ (дрожжевого экстракта) в растворе время удвоения популяции не изменилось: клеткам по-прежнему требовалось от 7 до 12 дней на один цикл деления.
Вместо ускорения размножения клетки начали увеличиваться в размерах. Средний объем тела клетки вырос более чем в два раза — с 1,2 до 2,6 кубических микрометра.
Одновременно с этим клетки начали активно отращивать наружные трубчатые структуры — длинные мембранные выросты постоянной толщины (около 370 нанометров), укрепленные изнутри актиновыми нитями. Длина этих отростков достигала нескольких микрометров, они ветвились и формировали вздутия на концах.
С помощью автоматического анализа трехмерных электронных микрофотографий ученые измерили объемы пятнадцати тысяч клеток. Оказалось, что совокупный объем отростков в среднем составлял 142% от объема самого тела клетки. Отростки содержали большую часть клеточного белка.
Исследователи установили, что образование отростков и клеточное деление никогда не происходят одновременно. На фотографиях делящихся клеток выросты отсутствовали полностью.
Это означает, что архея использует выросты для двух конкретных задач.
Во-первых, они служат временным хранилищем строительных блоков: клетка сначала долго накапливает белки и липиды в ветвях, разрастаясь во все стороны, а затем быстро втягивает или сбрасывает их непосредственно перед актом деления надвое.
Во-вторых, выросты необходимы для удержания симбиотических партнеров.
Метаболическая зависимость: жизнь в симбиозе
Штамм HC1 оказался облигатным синтрофом. Это означает, что он физически не способен жить и производить энергию в одиночку, без помощи микроорганизма другого вида.
Биохимический анализ показал, что клетки питаются исключительно пептидами — короткими цепочками аминокислот. Они не способны усваивать простые сахара и даже не могут расти на смеси отдельных свободных аминокислот. Клетка выделяет во внешнюю среду ферменты-пептидазы, разрушает длинные белки на короткие фрагменты, втягивает их внутрь и расщепляет с выделением электронов.
Электроны переносятся на белок ферредоксин, а затем с помощью гидрогеназ сбрасываются на протоны с образованием свободного молекулярного водорода или муравьиной кислоты (формиата).
Здесь возникает фундаментальное термодинамическое ограничение. Реакция окисления пептидов с выделением водорода энергетически выгодна только тогда, когда концентрация водорода в окружающей среде остается предельно низкой. Как только продукты реакции накапливаются вокруг клетки, химическое равновесие смещается, и ферменты перестают работать. Клетка больше не может извлекать энергию и останавливает рост.
По этой причине штаммам HC1 и SC1 жизненно необходимы метаногенные партнеры. Метаногенные археи потребляют водород и углекислый газ, превращая их в метан, и тем самым непрерывно удаляют продукты распада пептидов из зоны реакции.
Эксперименты подтвердили эту зависимость. Ученые добавили в культуру 2-бромэтансульфонат — химическое вещество, избирательно блокирующее ферменты метаногенеза. Метаногены прекратили поглощать водород, и концентрация газа в растворе выросла. В результате рост штамма HC1 полностью остановился. Точно такой же результат дало прямое введение газообразного водорода в культуральные флаконы.
Именно синтрофия объясняет функциональное назначение длинных мембранных выростов. С помощью электронного микроскопа исследователи зафиксировали, что концы отростков хеймдалльархей плотно обвивают клетки метаногенов. В зоне контакта внешние мембраны двух разных организмов удерживаются тонкими белковыми спиральными нитями. Такое сближение сокращает расстояние диффузии: водород переходит от клетки-продуцента к клетке-потребителю напрямую, не рассеиваясь в окружающем пространстве.
Разрешение кислородного парадокса
Второй важнейший вопрос касался дыхания. Предыдущие генетические анализы метагеномов асгард-архей выявили в них гены большой субъединицы цитохром c-оксидазы (комплекса Cox), а также оксидазы типа bd. Поскольку у современных эукариот комплекс Cox отвечает за финальную стадию кислородного дыхания — перенос электронов на кислород с синтезом воды и выработкой АТФ, — возникло предположение, что предки эукариот уже умели дышать кислородом.
Культивация штамма HC1 позволила проверить эту гипотезу экспериментально.
Ученые подвергли чистую культуру воздействию различных концентраций кислорода. Если в газовую смесь над раствором добавляли всего 1% кислорода, плотность клеток HC1 падала на два порядка: микробы быстро погибали. Если из питательной среды просто убирали химические восстановители (вещества, связывающие растворенный кислород), рост также прекращался.
Рост при следовых количествах кислорода (около 280 наномолей) восстанавливался только в присутствии природных аэробных бактерий из той же скважины — видов Mariniphaga и Alcanivorax. Эти бактерии быстро захватывали и связывали весь поступающий кислород, снижая его концентрацию до нуля. Даже в этом случае кислород не стимулировал деление архей: биомасса штамма HC1 не увеличивалась по сравнению с контрольными анаэробными условиями.
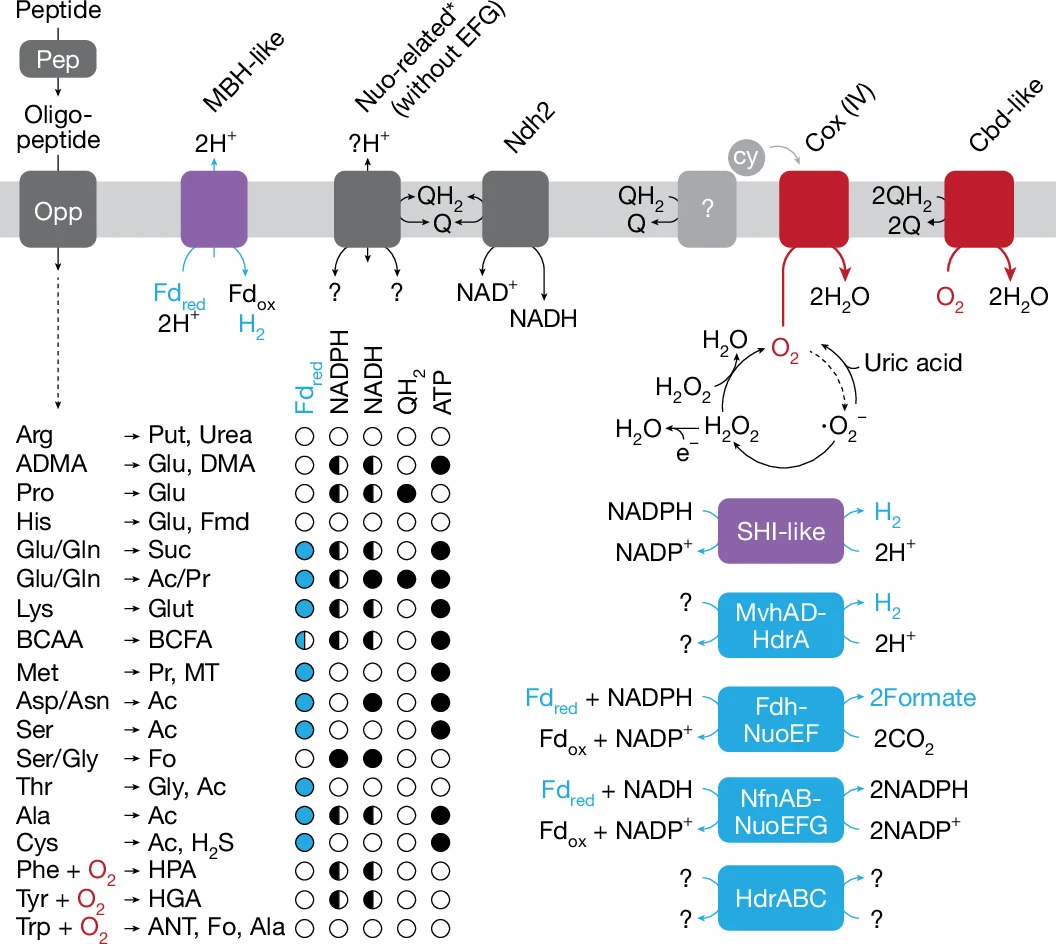
Чтобы окончательно выяснить метаболический статус хеймдалльархей, исследователи реконструировали пути переноса электронов по полному геному HC1 и сопоставили их с метаболизмом других организмов.
Выяснилось, что дыхательная цепь HC1 не замкнута:
- В клетке полностью отсутствуют ключевые белки, связывающие распад питательных веществ с кислородом. В частности, отсутствует дыхательный комплекс III (цитохром bc1), необходимый для передачи электронов от хинонов к цитохрому c.
- Даже если допустить наличие неизвестного белка с аналогичной функцией, архея способна перенаправить на восстановление кислорода лишь малую долю электронов, полученных при расщеплении аминокислот. Полного окисления органики с выработкой энергии за счет кислорода не происходит.
Для подтверждения строгого анаэробиоза авторы разработали статистический классификатор на основе машинного обучения. Они проанализировали соотношение двух фундаментальных ферментных систем в центральном метаболизме сотен видов бактерий и архей:
- ODH (2-оксокислотные дегидрогеназы) — используют кофермент NAD, устойчивы к кислороду и доминируют у всех организмов с кислородным дыханием.
- OFOR (2-оксокислота: ферредоксин оксидоредуктазы) — используют ферредоксин, содержат нестабильные железосерные кластеры 4Fe-4S и мгновенно разрушаются в присутствии свободного кислорода. Это базовый маркер строго анаэробного метаболизма.
Анализ показал: баланс ферментов OFOR и ODH четко разделяет анаэробов и аэробов с точностью более 95%. Все изученные представители асгард-архей, включая штамм HC1 и другие геномы хеймдалльархей с генами оксидаз, попадают в кластер строгих анаэробов. Их ферментный аппарат глубоко завязан на чувствительный к кислороду ферредоксин.
Механизмы детоксикации: защита вместо дыхания
Зачем же анаэробному организму нужны гены терминальных оксидаз?
Биохимический профиль штамма HC1 показал, что ферменты кислородного метаболизма служат исключительно для детоксикации. В пограничных зонах, где бескислородные подземные воды кратковременно контактируют с атмосферным воздухом, свободный кислород представляет смертельную опасность для клетки: он окисляет железосодержащие ферменты и запускает образование свободных радикалов.
Штамм HC1 нейтрализует кислород сразу по нескольким направлениям:
- Прямое связывание: комплексы Cox и цитохром bd перехватывают молекулы кислорода и восстанавливают их до безвредной воды, расходуя на это электроны, но не запасая энергию в виде протонного градиента для синтеза АТФ.
- Ферментативная антиоксидантная защита: в геноме активно экспрессируются гены каталазы, супероксиддисмутазы, пероксиредоксинов и глобинов. В культуре подтверждено присутствие гема B — обязательного компонента каталазных систем.
- Использование ароматических аминокислот: клетка экспрессирует кислородозависимые ферменты расщепления фенилаланина, тирозина и триптофана. При этом метаболические пути обрываются: клетка не извлекает из этих реакций промежуточные продукты для синтеза углеводов или АТФ. Реакция окисления ароматических колец идет исключительно ради того, чтобы связать токсичный молекулярный кислород в стабильные химические соединения.
- Удержание железа: среди белков штамма HC1 одним из самых распространенных оказался ферритин. Он связывает свободные ионы железа внутри цитоплазмы, предотвращая реакцию Фентона — химический процесс, при котором контакт железа с кислородом порождает крайне разрушительные гидроксильные радикалы.
Таким образом, хеймдалльархеи научились кратковременно выдерживать контакт с кислородом, создав многоуровневый комплекс нейтрализации окислительного стресса, но фундаментально остались бескислородными организмами.
Реконструкция предка: как начинался эукариогенез
Полученные экспериментальные данные позволяют сформировать детальную и обоснованную модель переходного периода от простых прокариот к эукариотам.
Генеалогия жизни теперь доказана экспериментально: эукариоты происходят из клады хеймдалльархей. Однако гипотеза о том, что последний общий предок архей и эукариот (LAECA) уже имел развитую систему внутренних мембран, ядро и способность дышать кислородом, не подтвердилась.
Непосредственный предшественник сложных клеток характеризовался следующими физиологическими чертами:
- Простое внутреннее строение: клетка не содержала ядерной оболочки, эндоплазматической сети или постоянных пузырьков. Внутреннее пространство организовывалось за счет плотной конденсации хроматина с помощью гистонов и динамического актинового цитоскелета.
- Анаэробный метаболизм: организм существовал в бескислородной среде, утилизировал белковые цепочки (пептиды) и производил водород.
- Облигатная синтрофия: микроб не мог жить независимо и зависел от других одноклеточных, удалявших излишки водорода.
- Медленный рост и направленный синтез структур: организм медленно делился, но тратил значительную часть энергии на наращивание объема и формирование длинных актиновых отростков, необходимых для контакта с метаболическими партнерами и накопления биомассы.
Эти выводы подтверждают модель эндосимбиоза, известную как «Ox-Tox» (Oxygen Detoxification), и концепцию обратного потока метаболитов.
События развивались следующим образом. В эпоху глобального насыщения океана кислородом древняя синтрофная архея сталкивалась с нарастающим окислительным стрессом. Защитные механизмы нейтрализации кислорода требовали расхода ресурсов. Архея использовала свои разветвленные мембранные выросты, чтобы удерживать не только метаногенных потребителей водорода, но и бактериальных симбионтов.
Одним из таких партнеров стала факультативно аэробная альфа-протеобактерия — предок будущих митохондрий. Первоначально взаимодействие не было связано с передачей большого количества энергии хозяину. Бактерия выполняла две задачи: утилизировала излишки органики хозяина и, главное, непрерывно поглощала свободный кислород на внешней границе клетки, создавая внутри плотного сплетения мембран бескислородную микрозону.
Архея поставляла бактерии пептиды и защищала ее механически, обволакивая своими выростами. Со временем мембранные отростки сомкнулись вокруг бактериальной клетки, переместив ее внутрь цитоплазмы.
После завершения эндосимбиоза бактерия передала клетке-хозяину полноценную дыхательную цепь и способность синтезировать колоссальное количество АТФ с помощью кислорода. И только тогда — при наличии практически неограниченного энергетического ресурса митохондрий и необходимости изолировать чужеродную бактериальную ДНК от генетического аппарата хозяина — клетка начала выстраивать сложные внутренние мембраны: ядерную оболочку, аппарат Гольджи и систему направленного везикулярного транспорта.
Значение открытия для экспериментальной биологии
Культивирование штаммов HC1 и SC1 переводит изучение происхождения эукариот из области теоретических гипотез и компьютерного моделирования в плоскость строгого лабораторного эксперимента.
До сих пор единственным культивированным представителем асгард-архей оставался штамм Promethearchaeum syntrophicum (MK-D1), относящийся к классу локиархей. Однако локиархеи филогенетически дальше отстоят от сложных организмов, обладают крайне малыми размерами клеток (около 0,5 микрометра) и требуют до полутора месяцев на одно деление. Это крайне затрудняло биохимические и микроскопические тесты.
Штаммы хеймдалльархей HC1 и SC1 лишены этих ограничений. Их клетки крупнее, делятся в два-три раза быстрее, а лаг-фаза перед началом активного роста существенно короче. Кроме того, их геномы содержат наибольшее число эукариотических генов среди всех выделенных архей.
Теперь исследователи получили воспроизводимую модель для изучения ключевых цитологических процессов:
- как древний актин взаимодействовал с мембранами до появления моторных белков вроде миозина;
- каким образом белки S-слоя обеспечивали проницаемость для крупных полимеров при отсутствии эндоцитоза;
- как генетические регуляторные сети перестраивали клетку с медленного накопления биомассы на деление.
Выращивание хеймдалльархей в контролируемых лабораторных системах доказало: переход к сложной внутриклеточной организации не был плавным процессом предварительного усложнения одной лишь архейной клетки. Ключевые структурные инновации эукариот стали результатом биохимического компромисса, возникшего уже после физического объединения двух простых, но идеально дополнивших друг друга прокариотических организмов.
Источник: Nature
1 комментарий
Добавить комментарий