Птицы — не единственный эксперимент: как динозавры осваивали полет несколько раз
В эволюционной биологии долгое время господствовало представление, что активный машущий полет возник среди позвоночных лишь четыре раза: у насекомых, птерозавров, птиц и рукокрылых. Внутри группы динозавров эту способность традиционно закрепляли исключительно за линией настоящих птиц, ведущей свое начало от юрских предков. Однако череда палеонтологических находок конца XX и начала XXI века в Азии показала, что оперенными были многие хищные динозавры, не имевшие прямого отношения к предкам современных пернатых.
Среди этих находок особое место заняли микрорапторины — мелкие хищные тероподы, обладавшие контурными и маховыми перьями не только на передних, но и на задних конечностях. Их анатомия породила затяжную научную дискуссию.
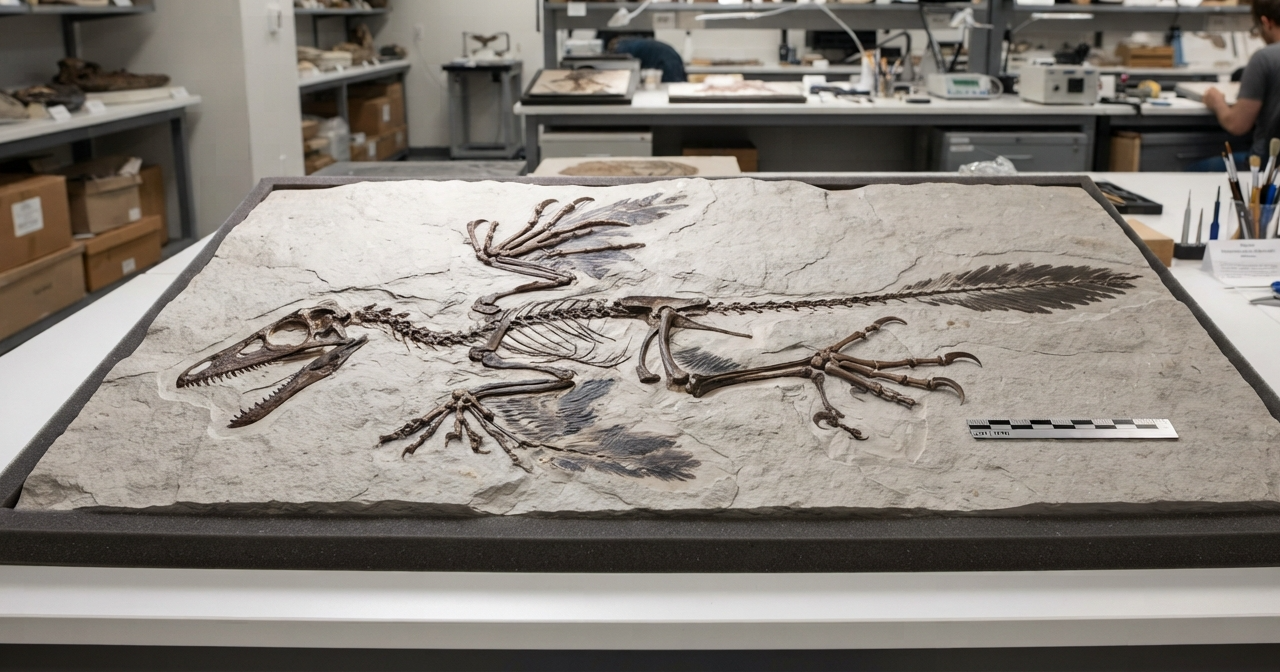
Главный вопрос заключался в следующем: унаследовали ли микрорапторины и птицы способность к перемещению по воздуху от единого общего предка, либо они пришли к одинаковым адаптациям независимо друг от друга? Существовала и компромиссная точка зрения: возможно, у всех близких родственников птиц имелась скрытая генетическая программа развития, которая просто активизировалась в разных ветвях при возникновении подходящих условий среды.
Ответ на этот вопрос дает исследование международной группы ученых, опубликованное в журнале Nature Communications. Описание нового вида пернатого динозавра и количественный анализ анатомических изменений показали: полет у нептичьих теропод возник автономно, с нуля, причем анатомические узлы летательного аппарата собирались в прямо противоположной последовательности, чем у птиц.
Содержание
Находка в провинции Ляонин
Новый род и вид получил название Norellraptor barsboldi. Имя присвоили в честь двух исследователей ископаемых позвоночных — американца Марка Норелла и монгольского палеонтолога Ринчена Барсболда.
Окаменелость извлекли из пород нижнемеловой формации Цзюфотан в уезде Цзяньчан на западе китайской провинции Ляонин. Возраст этих отложений составляет около 120 миллионов лет. Местные мелкозернистые осадочные породы знамениты тем, что сохраняют не только минерализованные кости, но и мягкие ткани, включая роговые чехлы когтей, содержимое желудков и детали перьевого покрова.
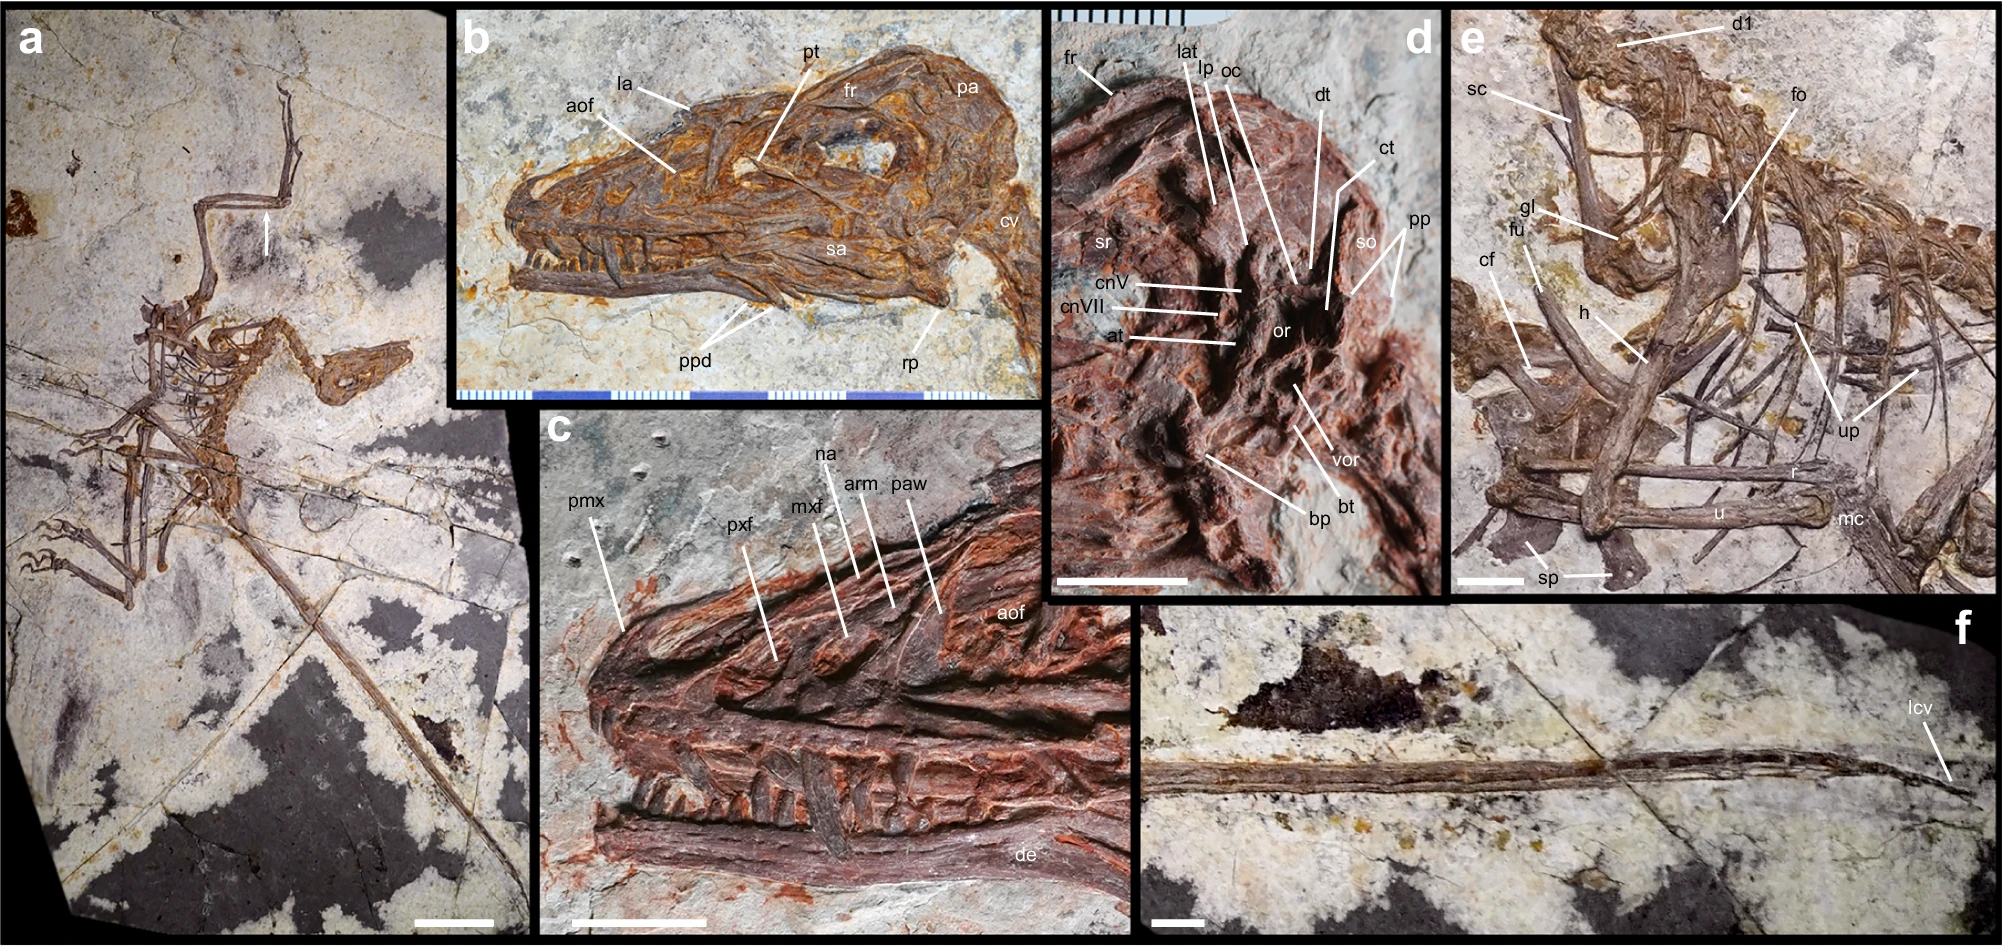
Голотип нореллраптора представляет собой почти полный сочлененный скелет длиной 57 сантиметров. Кости сохранили естественное анатомическое положение, практически не сместившись после гибели животного. Рядом с передними конечностями, крестцом, голенями и дистальной частью хвоста отпечатались перья. На передних конечностях они имеют выраженную асимметричную форму: наружное опахало пера заметно уже внутреннего. Такое строение перьев снижает их скручивание под действием набегающего воздушного потока и служит прямым биомеханическим признаком аэродинамической функции крыла.
Анатомические детали скелета
Изучение черепа и осевого скелета показало высокую степень адаптации к облегчению массы тела при сохранении механической устойчивости.
Череп нореллраптора треугольный при взгляде сбоку, с умеренно удлиненной мордой и округлой черепной коробкой. Главная отличительная черта этого рода — исключительная степень развития костных окон в боковой стенке черепа. Так называемое промаксиллярное окно увеличено настолько, что занимает всю переднюю треть предглазничной ямки. Черепная коробка пронизана системой внутренних воздушных полостей (пневматизацией), которые сообщались с дыхательной системой. У нореллраптора обнаружены глубокие углубления в височных и ушных зонах, схожие по строению с полостями черепа птиц и родственных им троодонтид.
Передняя конечность демонстрирует комплекс признаков, связанных с движением крыла:
- Плечевая кость имеет расширенный дельтопекторальный гребень, служащий местом прикрепления крупных грудных мышц. В этом гребне присутствует сквозное овальное отверстие, облегчающее саму кость.
- Лучевая кость относительно тонкая и грацильная, ее длина составляет около 80% от длины плечевой кости. Локтевая кость имеет легкий изгиб и заканчивается округлым отростком.
- В запястье сохранилась полулунная кость. Этот анатомический элемент охватывает проксимальный конец первой пястной кости и соприкасается со второй. Такое сочленение дает кисти возможность складываться в горизонтальной плоскости строго вдоль предплечья, прижимая длинные перья к телу, когда животное находилось на земле.
Задние конечности нореллраптора также несут следы глубокой специализации. Кости голени и верхнего отдела стопы полностью срослись между собой. Третья плюсневая кость в своей верхней части резко утончена и сдавлена с боков второй и четвертой плюсневыми костями. Такое строение стопы (арктометатарсус) характерно для теропод, испытывавших интенсивные нагрузки на стопу при беге и приземлении: боковые кости смыкаются над средней, перераспределяя механическое давление и предотвращая вывихи при резком соприкосновении с поверхностью.
Проблема общего предка и скрытых программ
Чтобы понять место нореллраптора в эволюции, необходимо рассмотреть концепцию глубокой гомологии. В эволюционной морфологии этим термином обозначают ситуацию, когда у двух не связанных напрямую групп организмов возникают внешне похожие органы, потому что обе группы унаследовали от очень далекого предка одинаковую генетическую цепь регуляции развития. В таком случае независимое появление признака — это не полностью случайный процесс, а реализация заранее заложенного потенциала.
Если бы появление полета у динозавров подчинялось этому правилу, то микрорапторины и птицы должны были шаг за шагом активировать одни и те же эмбриональные механизмы. Их путь к полету состоял бы из одинаковых стадий.
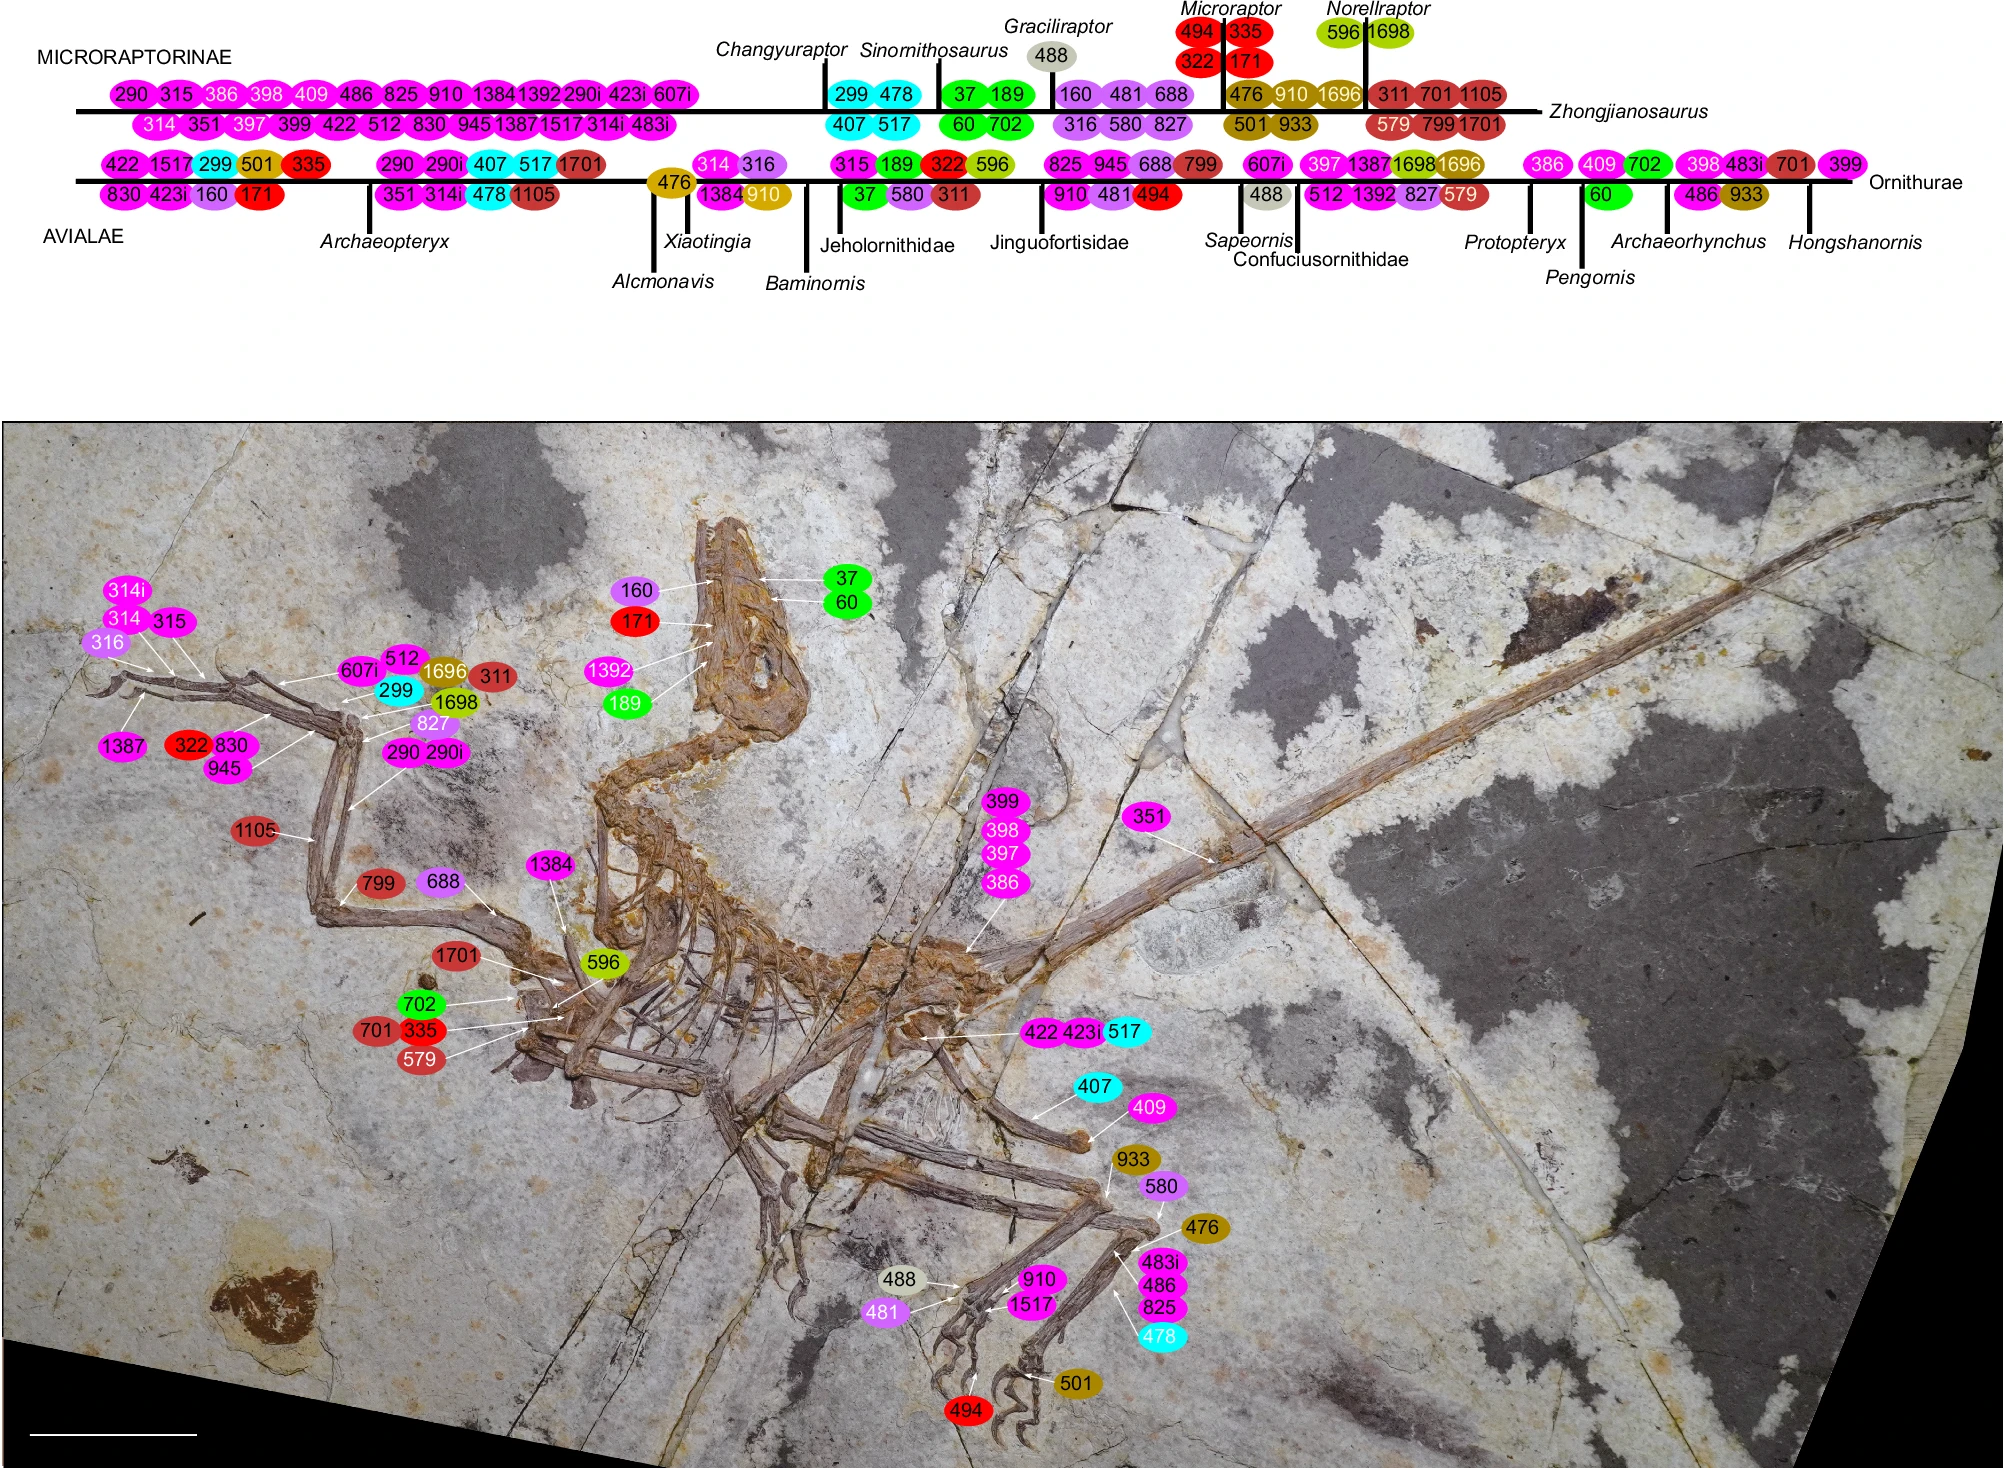
Исследователи составили обширную матрицу данных, включившую 194 морфологических признака, характерных для паравесов. Выяснилось, что микрорапторины делят с линией птиц (Avialae) 57 синапоморфий (производных признаков), то есть около 30% всего адаптивного комплекса. Среди них:
- срастание парных пластин грудины по средней линии;
- увеличение длины грудины относительно бедренной кости;
- появление выраженного бокового отростка на коракоиде;
- развитие крючковидных отростков на ребрах, соединяющих соседние ребра в единую жесткую корзину;
- относительное укорочение пальцев передней конечности;
- редукция дистального выступа лобковых костей таза;
- появление пучка специализированных перьев на первом пальце кисти (крылышка).
Сходство выглядит глубоким и системным. Однако решающее значение имеет не сам факт наличия этих костей и суставов, а последовательность, в которой они возникали в ходе геологического времени.
Анализ очередности: статистический разрыв
Авторы работы применили математический аппарат для анализа последовательности эволюционных шагов. Они ранжировали появление каждого из 57 общих признаков на эволюционном дереве микрорапторин и на дереве птиц, после чего рассчитали коэффициент ранговой корреляции Спирмена.
Результат показал отсутствие какой-либо связи:
- Коэффициент корреляции для всего набора из 57 признаков составил -0,08 при уровне значимости p=0,50.
- Коэффициент корреляции исключительно для признаков крыла и плечевого пояса составил 0,15 при p=0,47.
В статистике значения коэффициента, близкие к нулю при высоком значении p, означают одно: между сравниваемыми рядами данных нет согласованности. Порядок анатомических перестроек в двух линиях был абсолютно разным.
Как менялись микрорапторины
У микрорапторин первичные изменения затронули самые крайние отделы передней конечности — пальцы. В самом основании этой группы произошло резкое укорочение предконечных фаланг второго и третьего пальцев. Первая фаланга первого пальца уменьшилась и перестала выходить за границу второй пястной кости.
Эти изменения привели к тому, что кисть утратила древнюю хищническую функцию: динозавры больше не могли надежно захватывать и удерживать добычу пальцами передних лап. Кисть превратилась в жесткую плоскую опору для перьев.
И только значительно позже, на уровне продвинутой группы Microraptorini, начались изменения опорного скелета туловища: произошло слияние костей запястья и пясти в единый блок, удлинилась грудина, а в дельтопекторальном гребне появилось сквозное окно.
Как менялись предки птиц
В линии птиц (Avialae) процесс шел в обратном направлении. На самых ранних этапах — у оснований групп Pygostylia и Ornithothoraces — сформировался мощный и жесткий грудной каркас. Створки грудины увеличились и соединились, коракоид приобрел выраженные боковые выступы, а кости запястья консолидировались, создавая механическую опору для взмаха.
При этом пальцы передней конечности еще долго сохраняли примитивные пропорции и подвижность. Их редукция, слияние и потеря фаланг произошли на миллионы лет позже, когда сам силовой механизм взмаха уже был полностью сформирован.
Если принудительно заставить филогенетическую программу объединить микрорапторин и птиц в одну сестринскую группу, длина эволюционного древа увеличивается сразу на 23 шага. В биологии действует принцип экономии (парсимонии): эволюционный сценарий, требующий значительно большего числа лишних допущений и независимых потерь признаков, признается маловероятным. Количественный анализ показывает, что летательные аппараты этих двух групп не имели общей отправной точки.
Микроструктура кости и физиология развития
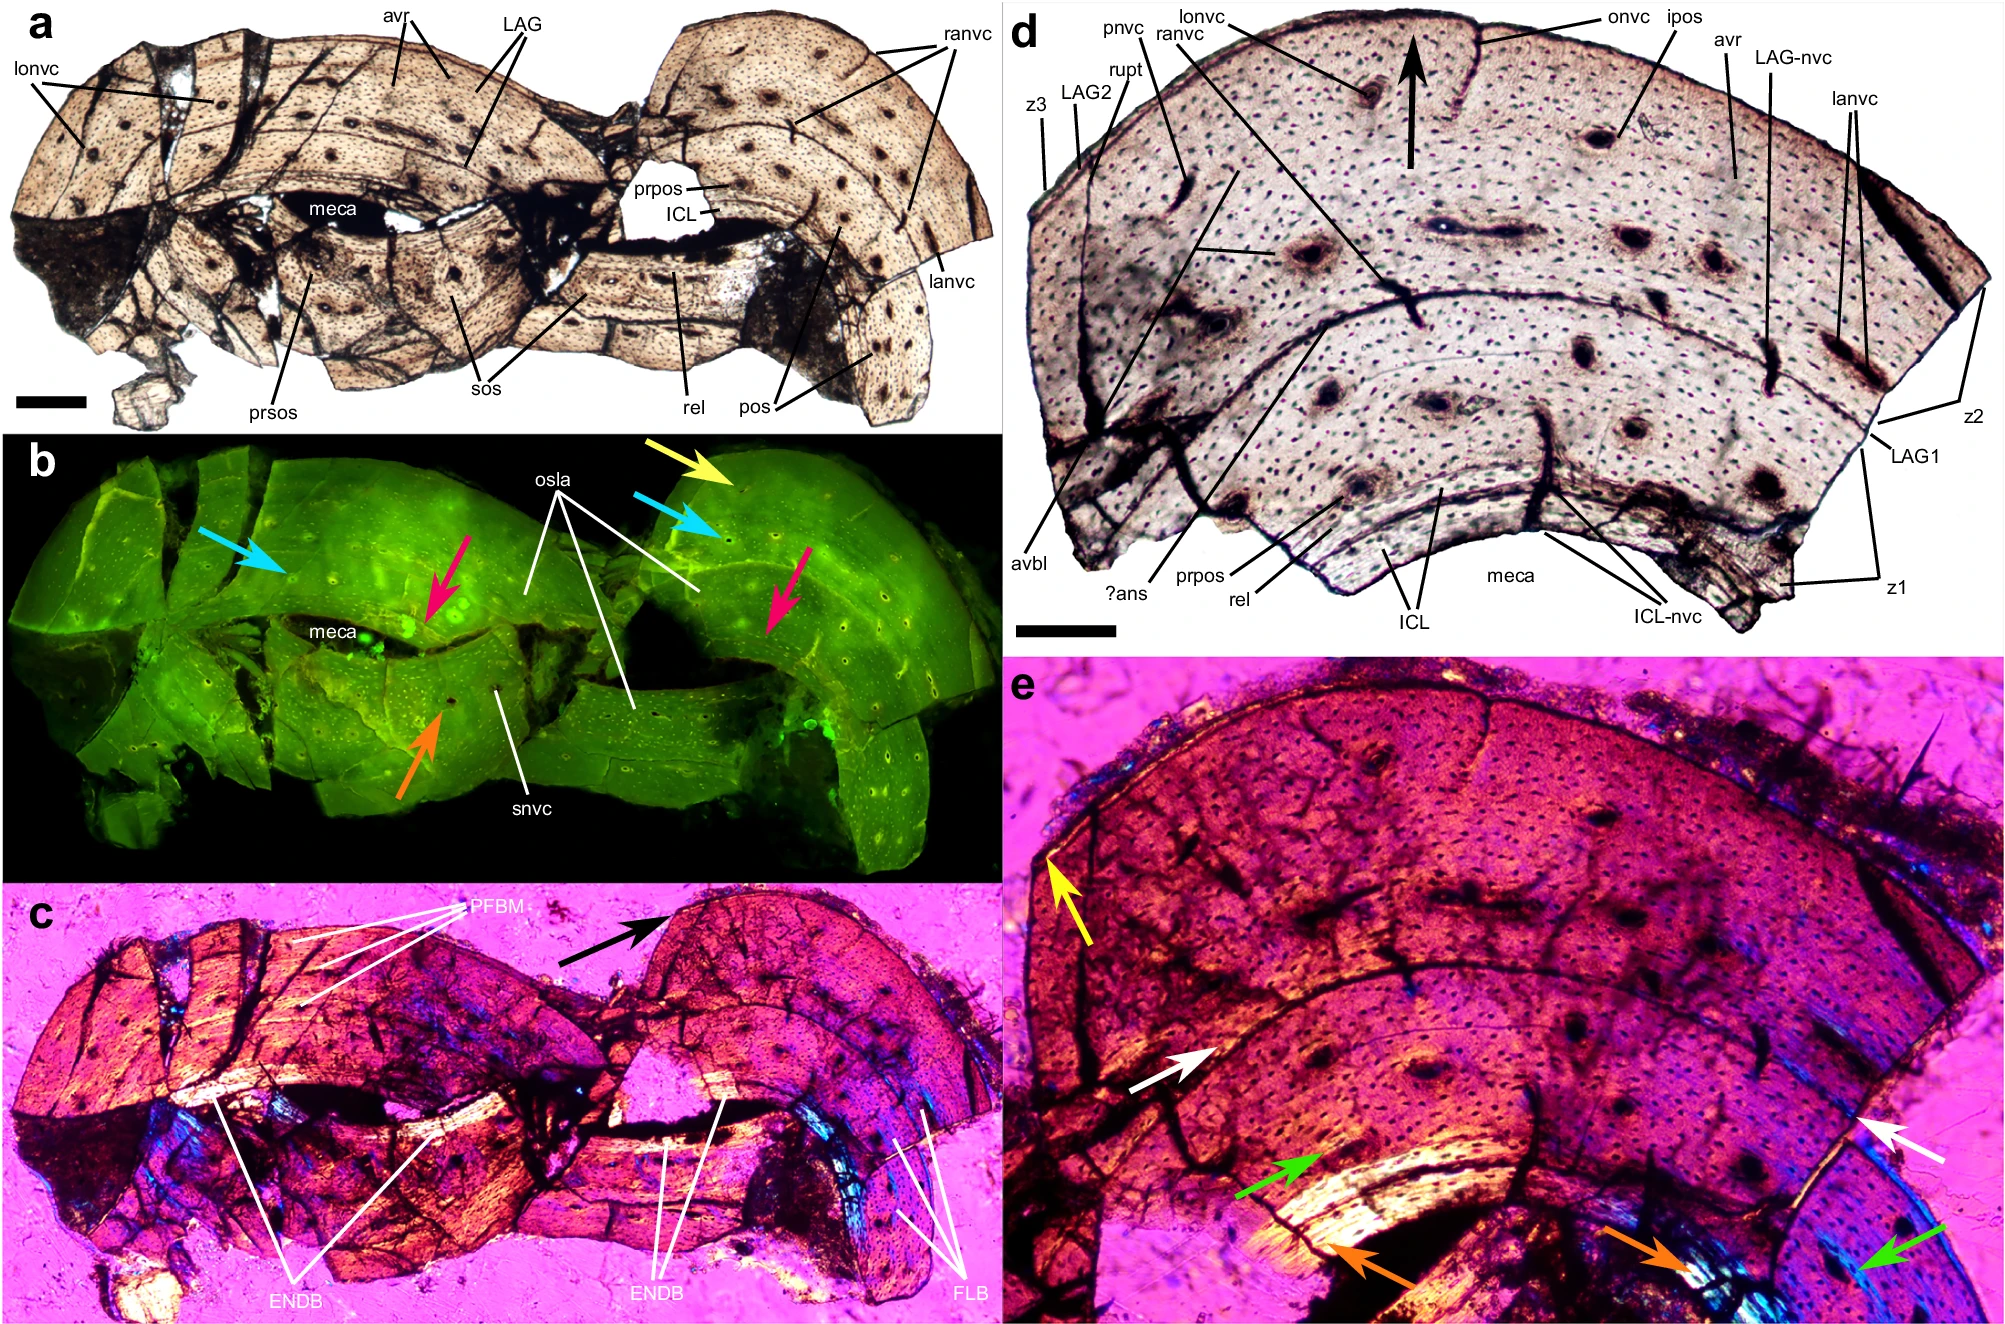
Помимо макроанатомии скелета, ученые применили метод остеогистологии. Из средней части левой лучевой кости нореллраптора изготовили прозрачный шлиф толщиной 52 микрометра. Препарат исследовали в проходящем, поляризованном и ультрафиолетовом свете для изучения расположения коллагеновых волокон, плотности кровеносных сосудов и формы костных клеток (остеоцитов).
Толщина плотного слоя кости (компакты) оказалась небольшой — от 365 до 487 микрометров. Она окружает обширную внутреннюю полость, в которой полностью отсутствуют костные балки (трабекулы). Это свидетельствует о том, что кость была полой и пневматизированной, снижая общий вес крыла.
В толще компактного слоя сохранились две непрерывные линии остановки роста (LAGs) и формирующийся третий наружный слой. Линии остановки роста возникают в периоды сезонного замедления метаболизма, чаще всего зимой или в засушливый период, когда питание ограничено. Присутствие двух линий и начального третьего слоя указывает, что особь прожила как минимум три полных года и погибла в начале четвертого.
Характер костной ткани выявил специфическую динамику развития:
- Внутренняя зона (первый год жизни): ткань сформирована первичными остеонами с хаотично расположенными сосудистыми каналами. В этой зоне отмечены процессы частичного разрушения и перестройки кости со стороны внутренней полости.
- Средняя зона (второй год жизни): внутренняя часть зоны сложена фиброзно-ламеллярной костью с высокой плотностью сосудов, что указывает на период быстрого роста. Однако ближе к наружному краю сосуды практически полностью исчезают. Костная ткань становится плотной, параллельно-волокнистой, а полости костных клеток выстраиваются в упорядоченные ряды. Скорость роста конечности в конце этого периода резко упала.
- Наружная зона (начало третьего года): тонкий прерывистый слой толщиной до 15,7 микрометра, свидетельствующий о кратковременном возобновлении роста перед гибелью особи.
У современных летающих птиц выводкового типа (например, уток или гусей) рост скелета строго асимметричен: ноги птенца растут сразу после вылупления, а крылья долго остаются недоразвитыми, после чего переживают короткий период взрывного и непрерывного роста перед оперением. В костях крыльев молодых птиц сосудистая сеть остается густой вплоть до достижения взрослыми особями окончательных размеров.
У нореллраптора наблюдается иная картина. Рост лучевой кости крыла прерывался сезонными остановками задолго до завершения общего формирования скелета, демонстрируя чередование быстрого накопления костной ткани и длительных периодов метаболического покоя. При этом бедренные кости у близких видов микрорапторов росли равномерно, без выраженных пауз.
Такой режим указывает на раннее, но ступенчатое развитие передних конечностей, не имеющее аналогов среди ныне живущих птиц.
Новая конфигурация эволюционного древа
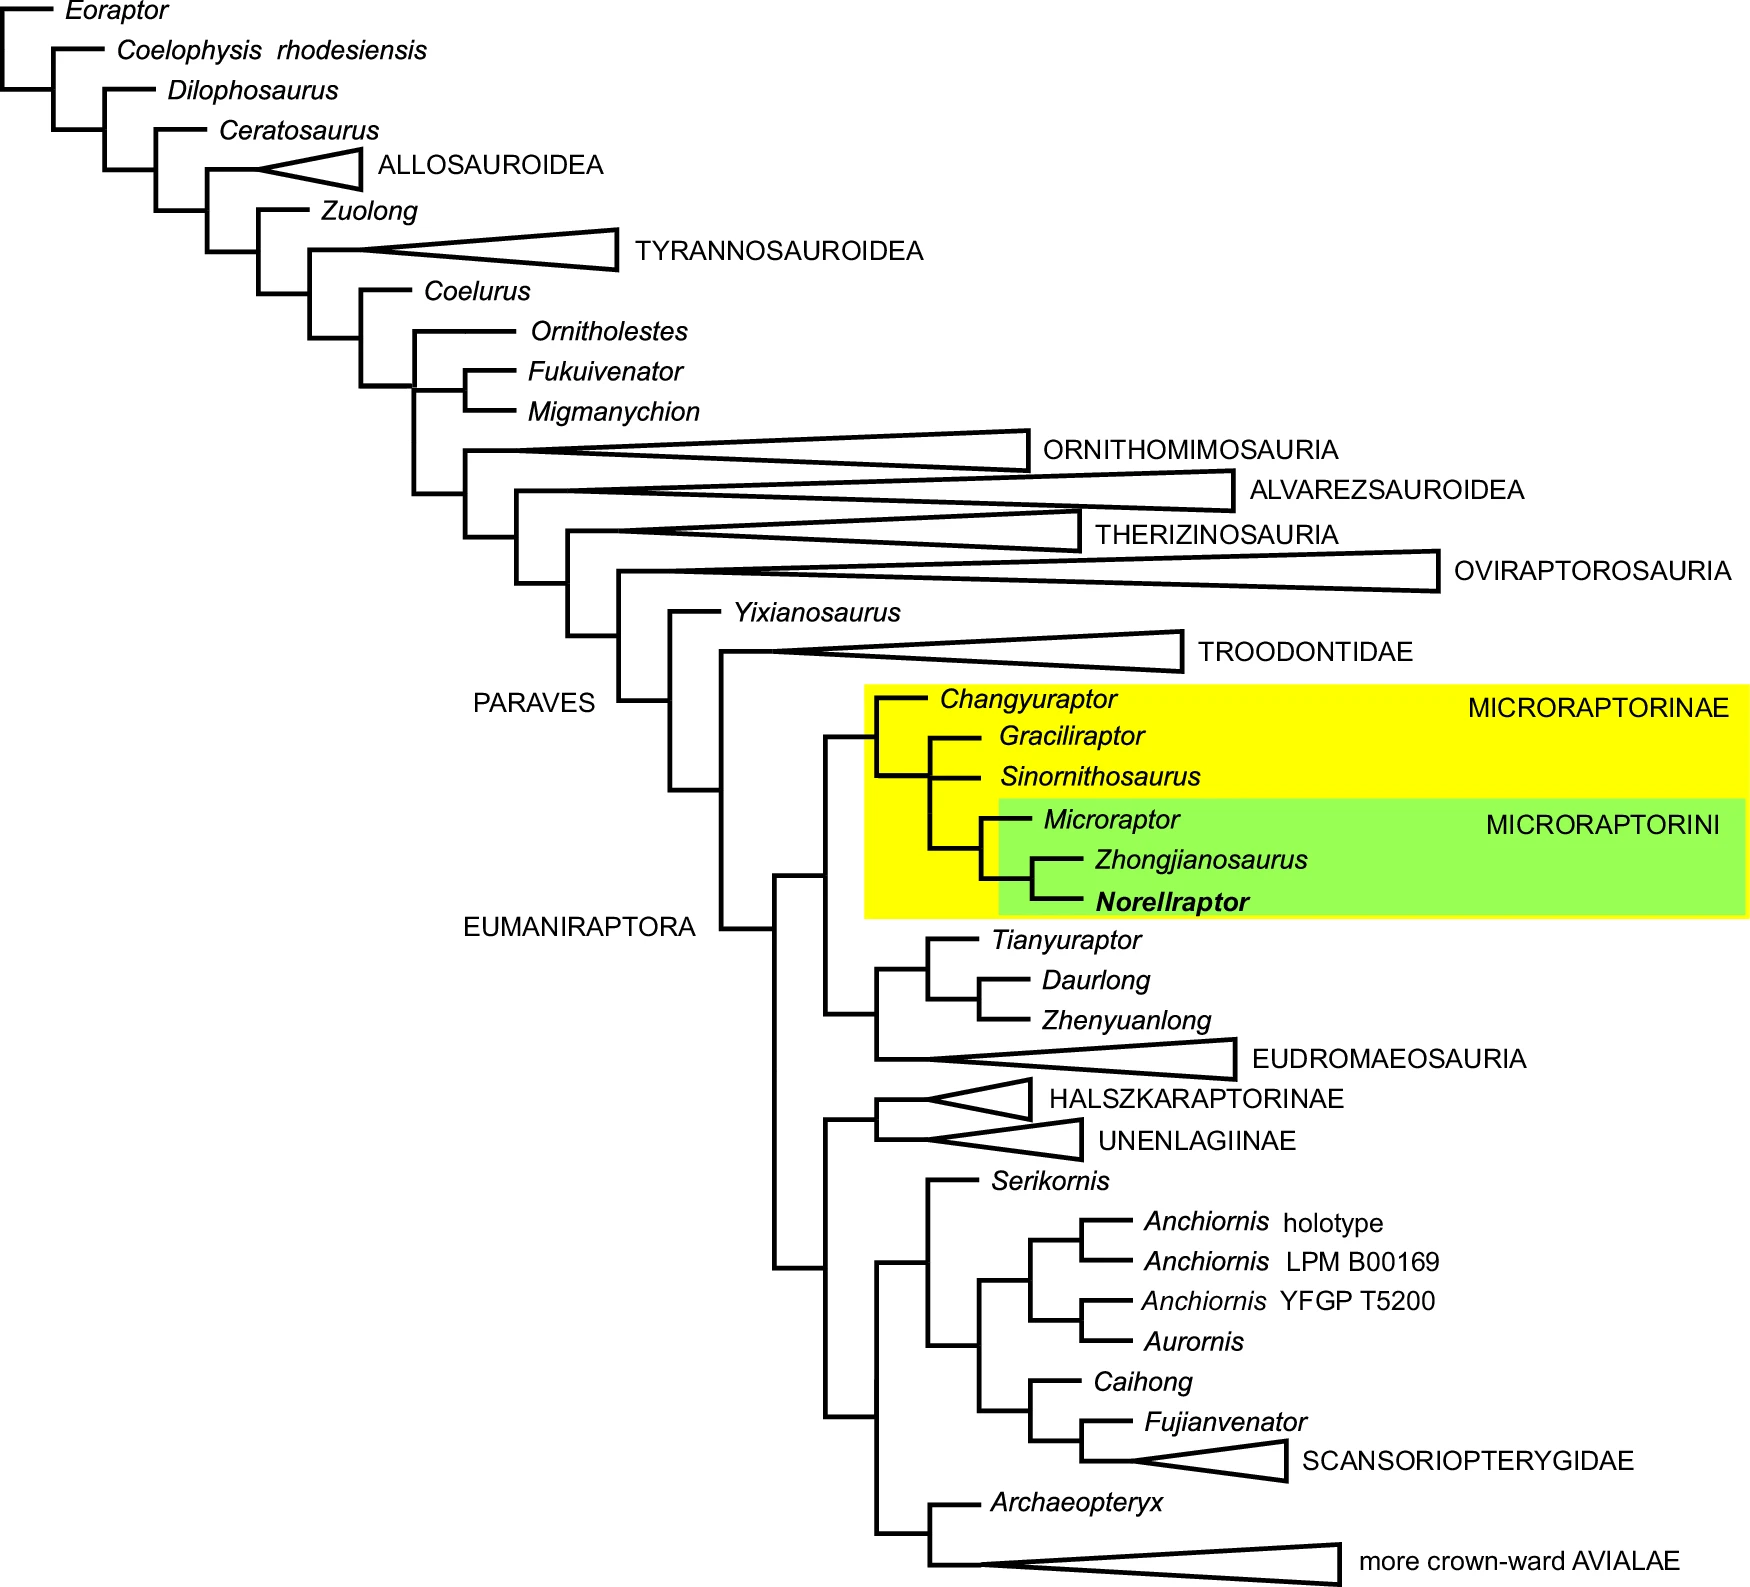
Включение данных о нореллрапторе позволило пересмотреть родственные связи внутри более широкой группы паравесов. Анализ показал, что такие формы, как южноамериканские уненлагии (Unenlagiinae) и полуводные хальшкарапторины (Halszkaraptorinae), анатомически стоят ближе к предкам птиц, чем микрорапторины.
Это перемещение изолирует подсемейство микрорапторин на боковой ветви внутри дромеозаврид. Их сходство с птицами оказывается полностью конвергентным.
Физические условия воздушной среды накладывали одинаковые ограничения на любое сухопутное животное мелкого размера, пытавшееся перейти к планированию или машущему полету:
- требовалось увеличение несущей площади тела, что привело к разрастанию перьевого покрова;
- требовалось снижение общей массы, что вызвало развитие воздушных полостей в черепе и истончение стенок трубчатых костей;
- требовалось противостоять нагрузкам при взмахах, что потребовало слияния элементов грудины и ребер.
Однако пути реализации этих требований определялись случайными мутациями и исходной анатомией конкретных предковых групп.
Микрорапторины решили задачу удержания перьев крыла за счет ранней деградации подвижности пальцев, сформировав четырехкрылый летательный аппарат с выраженной опорой на перья задних лап. Линия птиц пошла по пути создания высокопроизводительного грудного мышечного комплекса, развивая активный машущий полет с опорой исключительно на переднюю пару конечностей.
Окаменелость нореллраптора показывает, что эволюция структур сложного поведения не является линейным процессом движения к единой цели. Мезозойский полет развивался в рамках нескольких независимых природных попыток, в которых разные группы животных находили собственные морфологические комбинации для решения одинаковых физических задач.
Источник: Nature Communications
0 комментариев
Добавить комментарий