Как осьминоги научились пользоваться зеркалами для охоты
Линии развития позвоночных животных и головоногих моллюсков разделились свыше 520 миллионов лет назад. В тот исторический период у общего предка этих организмов еще не существовало сложной центральной нервной системы. В дальнейшем эволюция создавала органы чувств и структуры управления поведением с нуля в каждой группе.
У птиц и млекопитающих обработка зрительных сигналов и принятие решений сосредоточились в головном мозге, в частности в коре больших полушарий. У головоногих моллюсков возникла принципиально иная анатомическая организация: из пятисот миллионов нейронов осьминога около трети находится в центральном головном мозге, а остальные две трети распределены по нервным узлам восьми щупалец. Каждая конечность способна самостоятельно обрабатывать осязательную и химическую информацию, а также управлять собственными движениями.
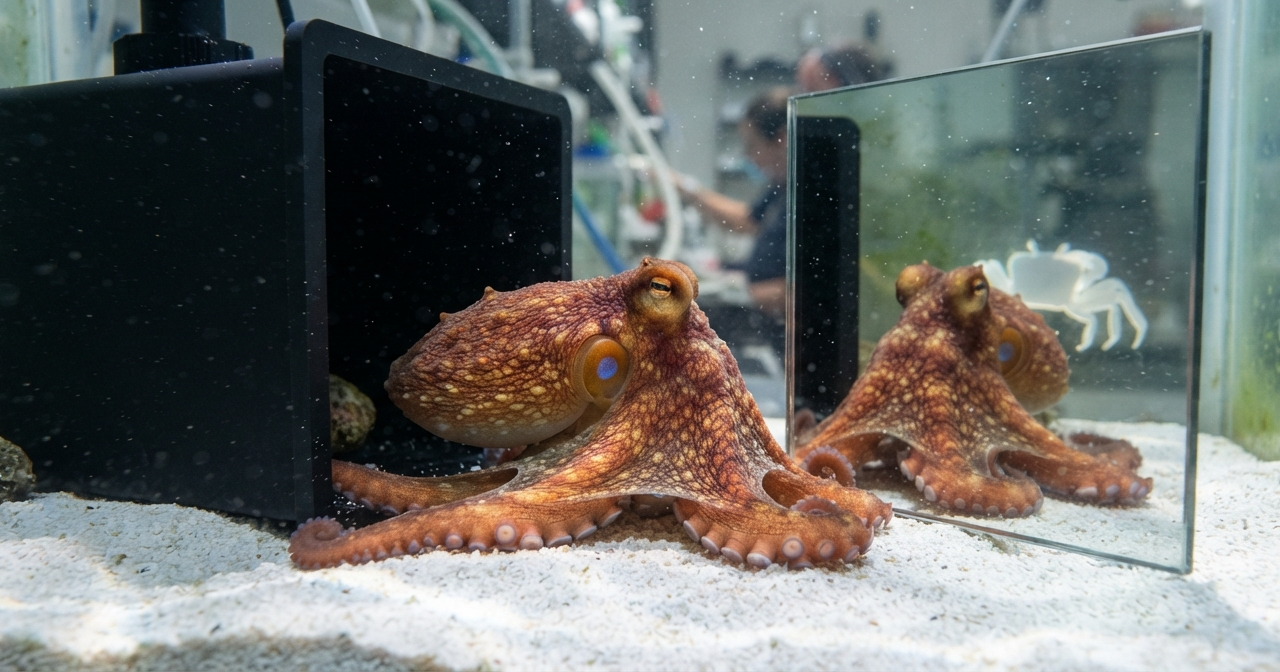
Несмотря на глубокие анатомические различия, и позвоночные, и моллюски обитают в одном физическом пространстве и подчиняются общим оптическим законам. Недавняя работа исследовательской группы из Дартмутского колледжа под руководством Мэри Кизелер и Питера Тсе показала, что калифорнийский двупятнистый осьминог (Octopus bimaculoides) может освоить использование зеркала для ориентации в пространстве.
Животные научились находить пищу, которую не видели прямым зрением, опираясь исключительно на ее отражение. Это первый случай в истории науки, когда подобное поведение экспериментально зафиксировали у беспозвоночных животных. Статья с описанием результатов вышла в научном издании Current Biology.
Содержание
Сложность задачи: зеркало как источник данных
В естественной среде обитания животные практически не сталкиваются с вертикальными отражающими поверхностями. Спокойная поверхность воды дает отражение, но не создает условий, при которых один предмет заслоняет другой, оставаясь видимым только в отраженном свете. Поэтому зеркало представляет собой сложный стимул для зрительной системы любого живого существа.
Большинство видов реагирует на собственное отражение или отражение сородича стандартным набором врожденных программ. Рыбы, птицы и многие хищные млекопитающие видят в отражении соперника: они принимают угрожающие позы, пытаются атаковать стекло или, напротив, демонстрируют подчинение и страх. Другие животные через некоторое время теряют к отражению интерес, поскольку оно не издает запаха и звуков.
Использование зеркала для поиска предметов требует совершенно другого когнитивного механизма — опосредованного восприятия. Это способность понимать, что видимое изображение указывает на физический объект, который находится в другой точке пространства.
Чтобы успешно решить такую задачу, нервная система должна выполнить два последовательных действия:
- Затормозить врожденную реакцию. Хищник ориентируется на движение: если он видит добычу прямо перед собой (пусть даже в виде отражения), его первый безусловный импульс — совершить бросок на изображение. Этот импульс необходимо подавить волевым усилием.
- Пересчитать геометрические координаты. Животное должно соотнести оптический образ на плоской поверхности зеркала со своим физическим окружением. Если в зеркале краб виден слева, значит, в реальном аквариуме он находится сзади или сбоку, вне зоны прямого обзора.
До последнего времени прохождение этого теста фиксировали только у видов с развитым головным мозгом: шимпанзе, макак, азиатских слонов, свиней, а также серых попугаев и новокаледонских воронов. Исследование биологов из Дартмутского колледжа доказало, что этот навык доступен и моллюскам.
Порядок проведения эксперимента
В исследовании участвовали калифорнийские двупятнистые осьминоги. Чтобы исключить влияние посторонних факторов, авторы работы создали закрытую экспериментальную систему.
Осьминоги обладают развитым химическим чувством на присосках, улавливают колебания воды кожей и реагируют на слабые электрические поля живых организмов. Если бы в опытах использовали живого краба, подопытное животное могло обнаружить его по запаху или движению воды. По этой причине исследователи заменили настоящую добычу цифровым изображением.
Установка состояла из следующих элементов:
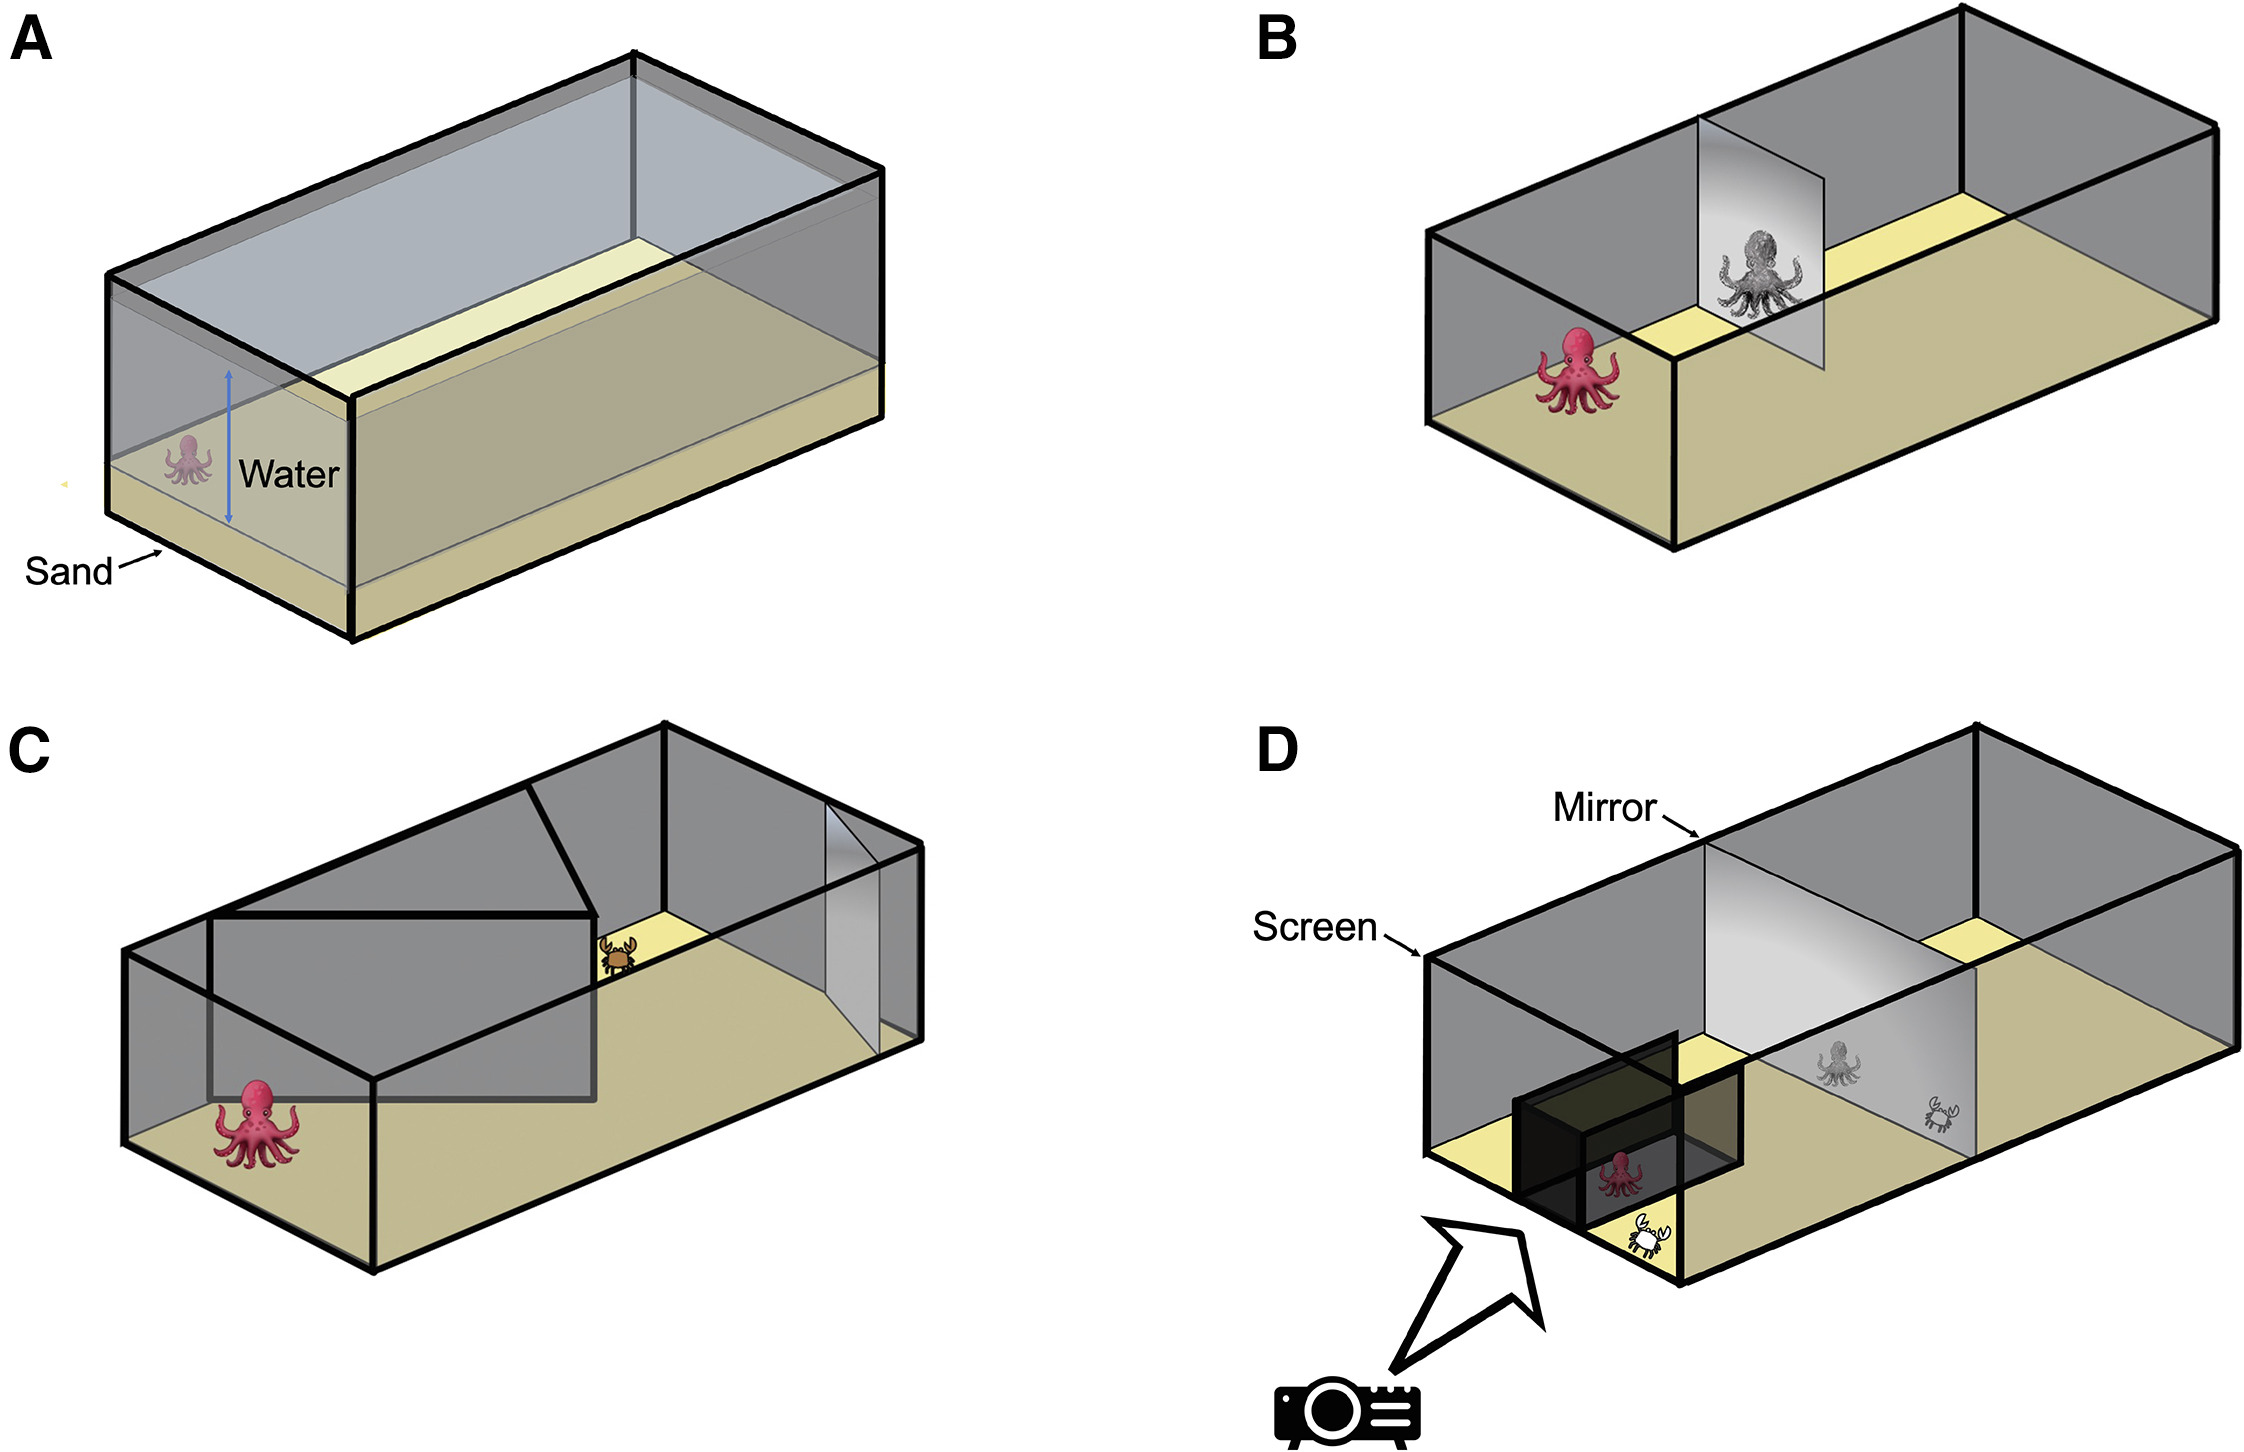
- Тестовый аквариум: отсек длиной 91,4 сантиметра и шириной 61 сантиметр с уровнем воды 52 сантиметра. Дно покрывал белый песок, необходимый для четкой видеофиксации перемещений.
- Зеркало: панель размером 59 на 61 сантиметр, закрывавшая всю центральную плоскость аквариума от дна до поверхности воды.
- Стартовая камера: прямоугольный бокс из непрозрачного черного пластика размером 21,6 на 25,4 на 11,4 сантиметра. Камера была установлена на песке у дальней стенки напротив зеркала. Она была открыта только сверху и со стороны, обращенной к зеркалу. Ее боковые и задняя стенки полностью перекрывали осьминогу обзор боковых частей аквариума.
- Проекционная система: видеопроектор, расположенный вне помещения с аквариумом. Он проецировал белый силуэт манящего краба шириной 28 миллиметров на полупрозрачный экран, закрепленный на внешней стороне задней стенки аквариума. Силуэт двигался по нижнему краю со скоростью 4 сантиметра в секунду либо в левой, либо в правой части экрана.
Находясь внутри стартовой камеры, осьминог физически не мог увидеть краба на экране за своей спиной. Прямой путь лучей света блокировали пластиковые стенки. Единственное место, где появлялся движущийся силуэт, — это поверхность зеркала, стоящего прямо перед боксом.
Опыты проходили в отдельной комнате без присутствия людей, чтобы исключить случайные подсказки. Наблюдение вели дистанционно с помощью видеокамер.
Перед осьминогом стояла задача: заметить в зеркале появление краба, определить, с какой стороны он проецируется, выйти из стартовой камеры и приплыть именно в тот угол задней стенки, где находился экран. Если животное касалось зеркала, попытка засчитывалась как ошибка. Если оно направлялось в правильный угол и пересекало контрольную линию у задней стенки, оператор с помощью лески опускал в воду настоящего живого краба в качестве пищевого подкрепления.
Этапы обучения и преодоление рефлекса
Эксперимент состоял из трех последовательных стадий: привыкания, предварительного обучения и финального тестирования.
На стадии привыкания осьминогов помещали в аквариум с зеркалом, давая им возможность свободно исследовать пространство в течение 60 минут. Животные плавали вдоль отражающей поверхности, ощупывали стекло щупальцами и постепенно перестали воспринимать собственное отражение как угрозу или сородича.
Затем началось обучение. Исследователи спрятали живого краба в открытой стеклянной банке за непрозрачной перегородкой в одном из углов резервуара. Прямой видимости между крабом и стартовой точкой не было, но угол наклона зеркала позволял осьминогу видеть банку в отражении.
В первых попытках все три подопытных животных действовали одинаково: они плыли напрямую к отражению в стекле и пытались схватить несуществующую добычу. Убедившись, что за стеклом ничего нет, они начинали хаотично исследовать дно, случайно находили спрятанную банку и извлекали краба.
Главный когнитивный сдвиг произошел в течение 10-12 повторений. Этого количества попыток оказалось достаточно, чтобы осьминоги перестали совершать броски на зеркало. Животные выработали поведенческое торможение: увидев отражение краба, они больше не трогали стекло, а целенаправленно разворачивались и направлялись в угол, где стояла банка.
Анализ результатов тестирования
В финальной тестовой фазе с цифровой проекцией краба приняли участие три дикие особи, успешно завершившие предварительную подготовку.
Всего исследователи провели 55 испытаний. Часть из них отсеяли по объективным критериям: в шести случаях осьминоги спали или не проявляли активности, четыре раза произошел сбой аппаратуры, а еще в четырех животные покидали бокс до включения проектора. В зачет пошли 41 попытка.
Авторы выделили два набора данных:
- Базовый набор (30 попыток): учитывались только те случаи, когда осьминог сделал выбор стороны у задней стенки, вообще не прикоснувшись к зеркалу.
- Расширенный набор (41 попытка): включал также случаи, когда животное касалось зеркала перед тем, как поплыть к задней стенке.
В базовом наборе данных осьминоги безошибочно выбрали правильную сторону в 72,9% случаев (22 верных выбора против 8 ошибок). В расширенном наборе точность составила 69,1%.
Чтобы подтвердить, что результаты не были делом случая, ученые применили метод компьютерного моделирования. Программа воспроизвела эксперимент один миллион раз для трех виртуальных животных, которые выбирали направление наугад с вероятностью 50 на 50. Расчеты показали, что вероятность получить реальный результат осьминогов путем случайного угадывания составляет 0,007 (менее одного шанса из ста).
Видеозаписи позволили выявить важные физические параметры движения:
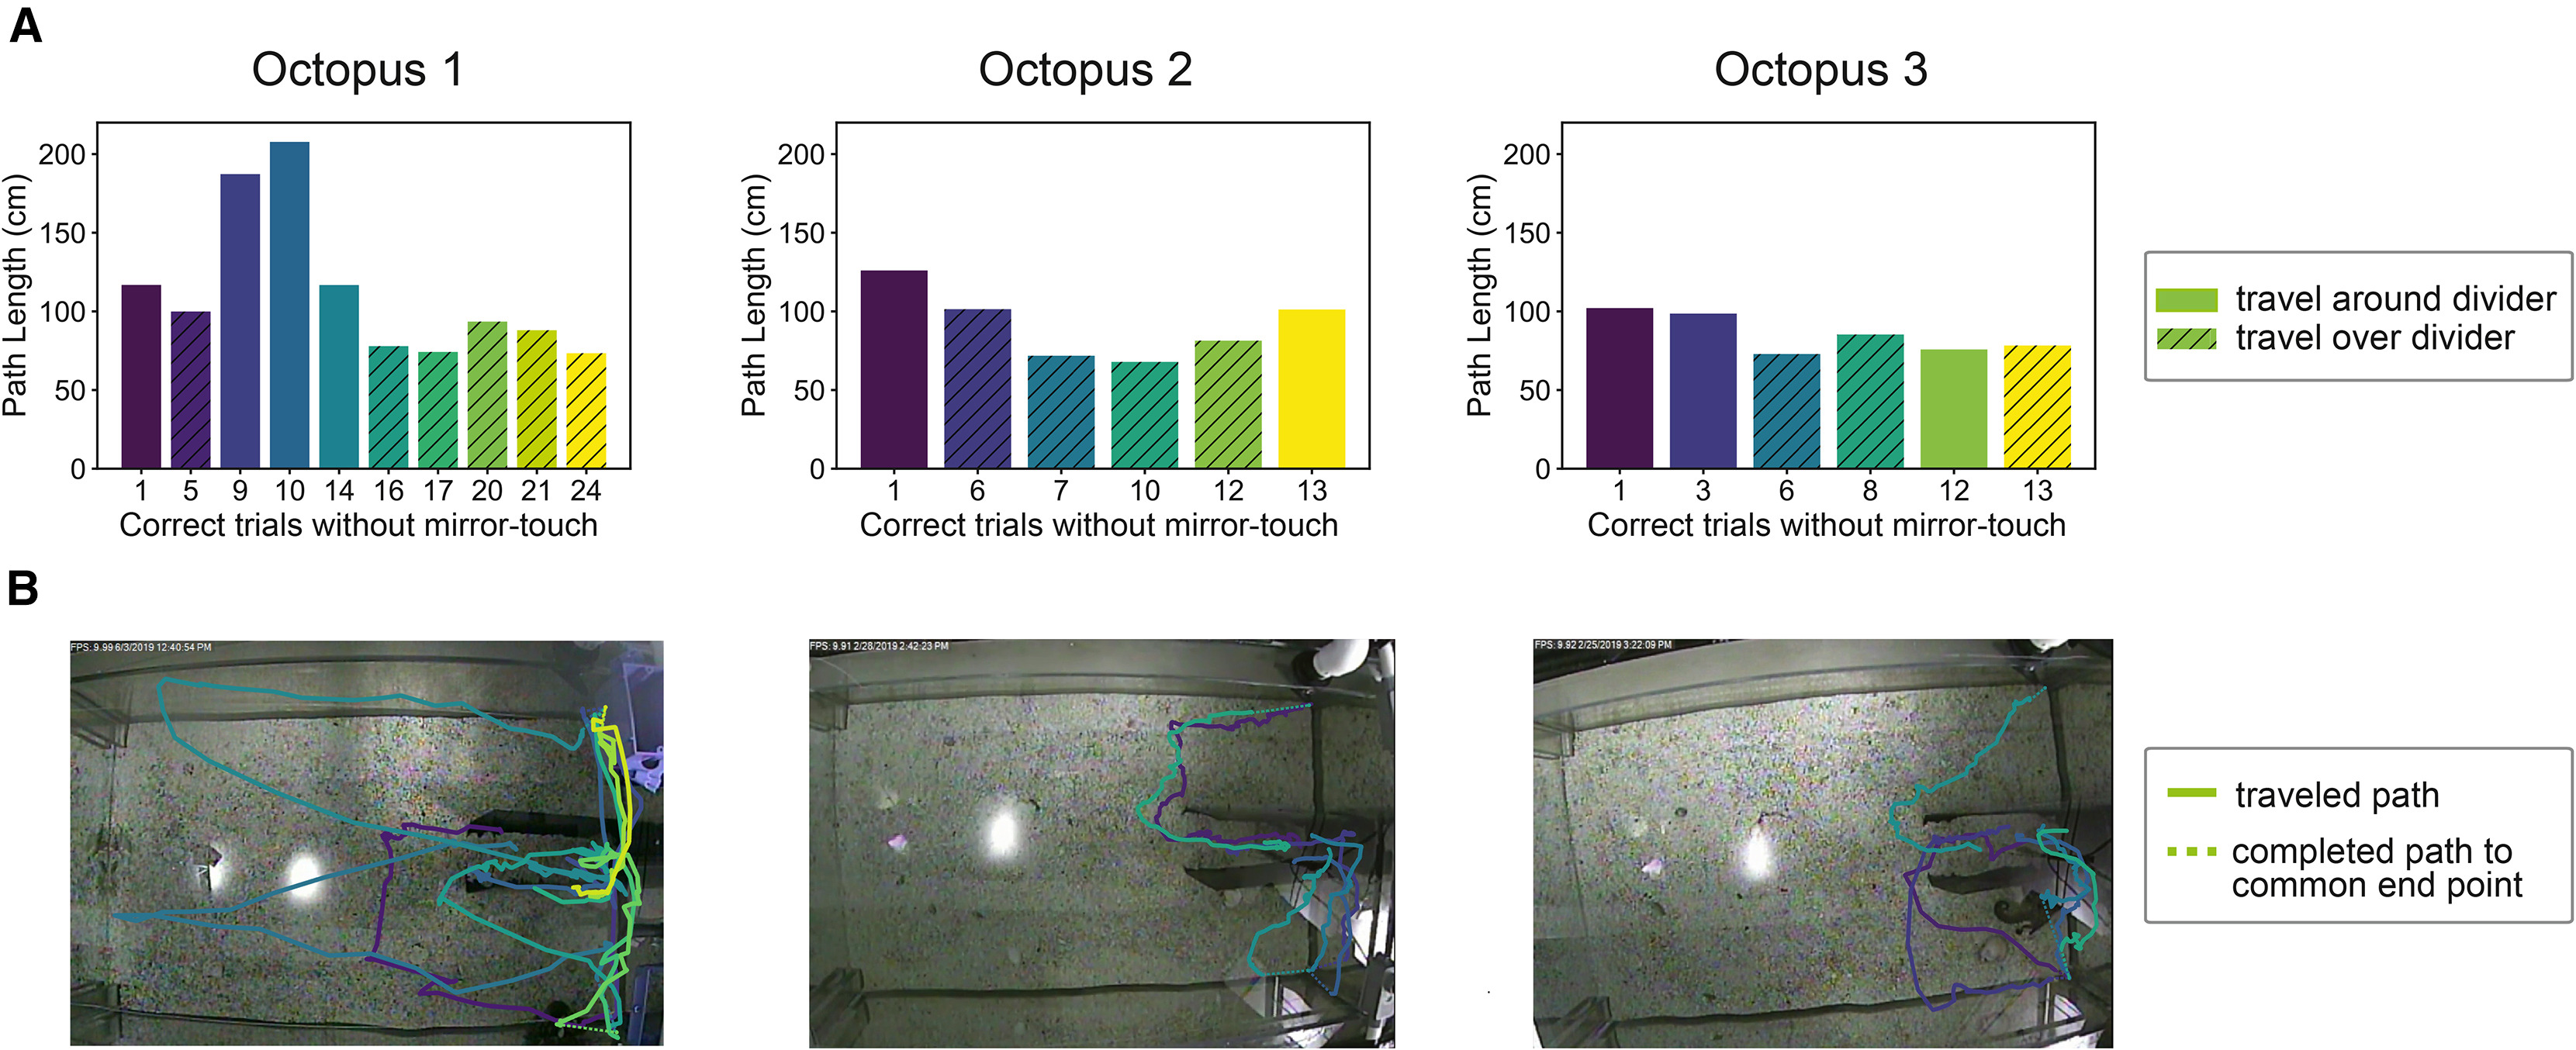
- Принятие решения до старта. В 27 из 30 попыток осьминоги выдерживали изначально выбранное направление от момента выхода из камеры до достижения задней стенки. Животные не метались по дну и не меняли сторону в процессе движения. Корректировка курса наблюдалась лишь трижды, когда особь сначала делала несколько неуверенных движений вперед, а затем резко поворачивала в правильную сторону.
- Преодоление вертикальной преграды. В 59% успешных испытаний осьминоги даже не выплывали через открытый передний створ бокса. Они перелезали прямо через боковую стенку камеры со стороны проецируемого стимула. Это прямое доказательство того, что животные определяли направление движения еще находясь внутри бокса, опираясь только на зеркальный образ, а не замечали проекцию случайно после выхода на открытое пространство.
- Рост скорости перемещения. От первых попыток к последним время, необходимое моллюскам для достижения цели, устойчиво сокращалось. Это свидетельствует об оптимизации двигательного навыка по мере накопления опыта.
Различие между механической дрессировкой и пониманием пространства
Один из главных вопросов экспериментальной биологии при оценке навыков животных формулируется просто: имело ли место осознанное использование информации или животное выработало механическую ассоциацию?
При ассоциативном обучении (простой дрессировке) мозг запоминает схему: «светлое пятно в левой части поля зрения требует поворота туловища направо». Если бы осьминоги действовали по этой примитивной формуле, они не смогли бы адаптироваться к изменению геометрии задачи.
Однако факты указывают на то, что животные сформировали целостное представление о пространстве аквариума:
Во-первых, конфигурация тренировочных и финальных тестов принципиально различалась. Во время обучения осьминог подплывал близко к зеркалу и поворачивал на 90 градусов. В основном тесте от него требовалось выйти из стартовой камеры, развернуться на 180 градусов назад или перелезть через вертикальное препятствие. Все три особи безошибочно выполнили правильный маневр уже в первой зачетной попытке нового теста, без предварительной наработки двигательного шаблона.
Во-вторых, контейнеры с настоящим крабом-наградой находились над поверхностью воды. Если бы животные просто связывали появление отражения с получением корма без привязки к геометрии дна, они бы всплывали прямо к верхней кромке воды, ожидая падения добычи. Однако осьминоги каждый раз плыли именно к нижней части задней стенки — в ту точку, где перемещался световой силуэт краба.
Таким образом, подопытные животные объединили оптическую картину в зеркале с внутренней схемой своего окружения, сопоставив отраженное изображение со скрытым физическим местом за пределами прямой видимости.
Значение открытия для науки об эволюции разума
Эксперимент специалистов Дартмутского колледжа важен для понимания того, как в живой природе формируются высшие когнитивные функции.
Долгое время считалось, что сложные формы анализа сенсорной информации неразрывно связаны с развитием коры больших полушарий у млекопитающих. Осьминоги опровергают это представление. Их нервная система развивалась по совершенно иному плану: за зрительное обучение и память у них отвечают зрительные доли и вертикальная доля мозга. Эти образования не имеют ничего общего со структурой мозга позвоночных ни по строению, ни по типу эмбрионального развития.
Сходство поведения млекопитающих и осьминогов в зеркальных тестах представляет собой пример конвергентной эволюции. Это явление возникает тогда, когда не связанные друг с другом организмы независимо вырабатывают одинаковые решения сходных жизненных задач. Охота на подвижную добычу в сложном рельефе морского дна требует точного расчета расстояний, запоминания ориентиров и умения прогнозировать перемещение объектов, скрытых за препятствиями. Естественный отбор привел головоногих моллюсков к тем же принципам обработки информации, к которым другие эволюционные ветви пришли миллионы лет спустя.
Кроме того, способность использовать зеркало для навигации традиционно считается важным этапом на пути к зеркальному самосознанию. В этологии существует классический тест Гэллапа: животному наносят на тело пятно краски без запаха в такое место, которое оно может увидеть только в зеркале. Если особь, глядя на отражение, начинает трогать или счищать метку на собственном теле, ученые делают вывод о наличии базового представления о себе как об отдельном объекте.
До настоящего времени тест Гэллапа уверенно проходили лишь высшие приматы, слоны, дельфины, косатки, сороки и некоторые виды рыб (например, губан-чистильщик). Эксперимент с калифорнийскими осьминогами показывает, что способность моллюсков считывать информацию с зеркальных поверхностей достаточна для перехода к полноценному исследованию их самосознания.
Ученые уже работают над адаптацией методики нанесения меток для обыкновенного осьминога (Octopus vulgaris), способного запоминать и индивидуально различать своих сородичей. Вполне возможно, что способность отделять себя от окружающего мира появилась в океане задолго до того, как первые позвоночные животные вышли на сушу.
Источник: Current Biology
0 комментариев
Добавить комментарий