Крылья бабочек создают оптическую иллюзию в полете, заставляя хищников промахиваться
В живой природе дневные бабочки представляют собой заметную и уязвимую цель. Они летают в светлое время суток, их крылья покрыты яркими полосами и пятнами, а частота взмахов относительно мала. Классическая теория эволюции связывает выживание жертвы со способностью скрываться от глаз хищника или быстро убегать от него. Бабочки не делают ни того, ни другого.
Если сопоставить их с ночными мотыльками, разница становится еще более отчетливой. Мотыльки обладают однотонной, серой или бурой защитной окраской, летают по ночам и взмахивают крыльями с высокой частотой. Несмотря на эти преимущества, они постоянно служат добычей для птиц и рукокрылых. В то же время среди дневных птиц крайне мало видов, способных регулярно ловить бабочек прямо в воздухе.
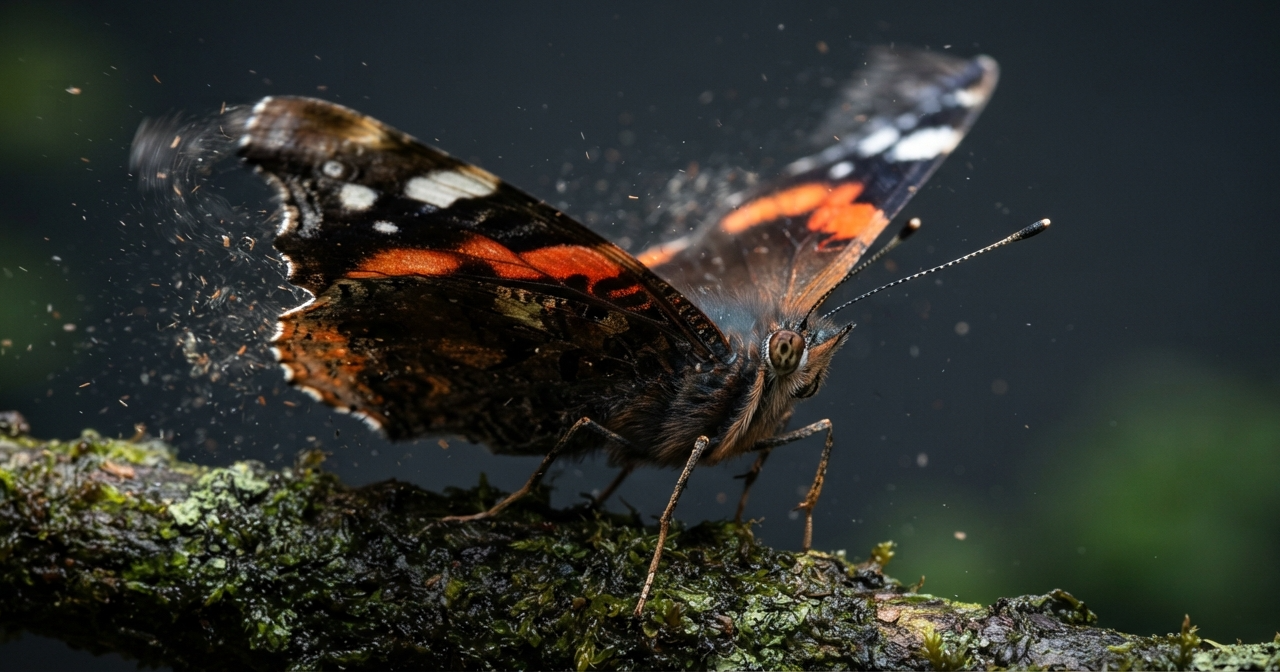
Биологи долгое время объясняли этот факт тремя факторами: ядовитостью некоторых видов, наличием ложных глазков на крыльях для отпугивания птиц или половым отбором, при котором яркая окраска необходима для привлечения партнера. Однако эти гипотезы не объясняли, почему многие вполне съедобные виды бабочек без выраженных глазков продолжают нести на верхней стороне крыльев резкие черно-белые или цветные полосы.
Ответ на этот вопрос дала группа исследователей из Эксетерского и Эссекского университетов в Великобритании. В статье, опубликованной в журнале Nature, ученые доказали: контрастный рисунок крыльев работает совместно с физикой полета, создавая оптический обман, который не позволяет хищнику точно определить скорость и направление движения жертвы.
Содержание
- Почему прежние теории маскировки в движении не находили подтверждения
- Как устроено зрение хищника: элементарные детекторы движения
- Анализ живых бабочек на скорости 1000 кадров в секунду
- Трехмерное моделирование 757 видов европейских бабочек
- Компьютерная эволюция: воспроизведение природных полос с нуля
- Эксперимент с участием людей: подтверждение промаха
- Выводы и практическое значение исследования
Почему прежние теории маскировки в движении не находили подтверждения
Идея о том, что чередование полос может мешать правильному восприятию движущегося объекта, появилась еще в начале двадцатого века. Ее называли эффектом ослепления движением (motion dazzle). Предполагалось, что контрастные полосы на теле зебр, змей или ящериц размывают контуры животного во время бега и мешают хищнику рассчитать точку нападения.
Однако многочисленные лабораторные проверки этой идеи давали неясные или противоречивые результаты. Причина неудач заключалась в постановке экспериментов. Исследователи использовали неподвижные макеты, картонные мишени или простые геометрические фигуры на мониторах, которые двигались с постоянной скоростью по прямой линии.
В реальной природе прямолинейного и равномерного перемещения тел практически не существует. Животные двигаются за счет работы лап или крыльев. Это означает, что отдельные части их тела непрерывно меняют направление относительно общего курса движения. Когда бабочка летит вперед, ее крылья не просто опускаются и поднимаются. Они деформируются, скручиваются по краям и в определенные доли секунды движутся назад или в стороны относительно направления всего тела.
Авторы нового исследования предположили, что оптический эффект контрастных полос невозможно обнаружить на неподвижном объекте. Он возникает только тогда, когда геометрия рисунка накладывается на сложную механику взмаха.
Как устроено зрение хищника: элементарные детекторы движения
Чтобы понять, как именно возникает оптическая ошибка, необходимо рассмотреть работу зрительного аппарата птиц. Глаз животного не передает в мозг непрерывную видеозапись в высоком разрешении. Первичная обработка движения происходит непосредственно в сетчатке глаза с помощью специализированных нейронных цепочек — элементарных детекторов движения (Elementary Motion Detectors, EMD).
Каждый такой детектор состоит из соседних светочувствительных клеток и промежуточного нейрона, который сопоставляет изменения освещенности между ними с небольшой временной задержкой. Если светлый край рисунка сместился от первой точки ко второй за расчетное время, детектор отправляет в зрительные центры сигнал о движении в конкретном направлении.
Миллионы таких сигналов по всей площади сетчатки складываются в общий показатель, который называют энергией движения. На основе этого суммарного вектора мозг птицы делает вывод: с какой скоростью летит объект и где он окажется через десятую долю секунды, когда клюв достигнет цели.
Исследователи установили, что чередование темных и светлых полос на подвижном крыле подает на детекторы движения ложные сигналы. Ученые разделили эти искажения на два типа:
- Продольная ошибка восприятия (forwards confusion). Это математическое соотношение между сигналами, указывающими на движение вперед, и сигналами, указывающими на движение назад. Контрастный рисунок устроен так, что в процессе взмаха детекторы сетчатки фиксируют мощные всплески движения назад, хотя само насекомое летит вперед. Из-за этого зрительная система птицы занижает реальную скорость бабочки: хищнику кажется, что добыча замедлилась или сместилась назад по ходу движения.
- Боковая ошибка восприятия (sideways confusion). Это соотношение между сигналами движения вправо-влево и сигналами движения вперед. В этом случае узор заставляет детекторы фиксировать резкое смещение в сторону, искажая представление о реальном угле полета.
Анализ живых бабочек на скорости 1000 кадров в секунду
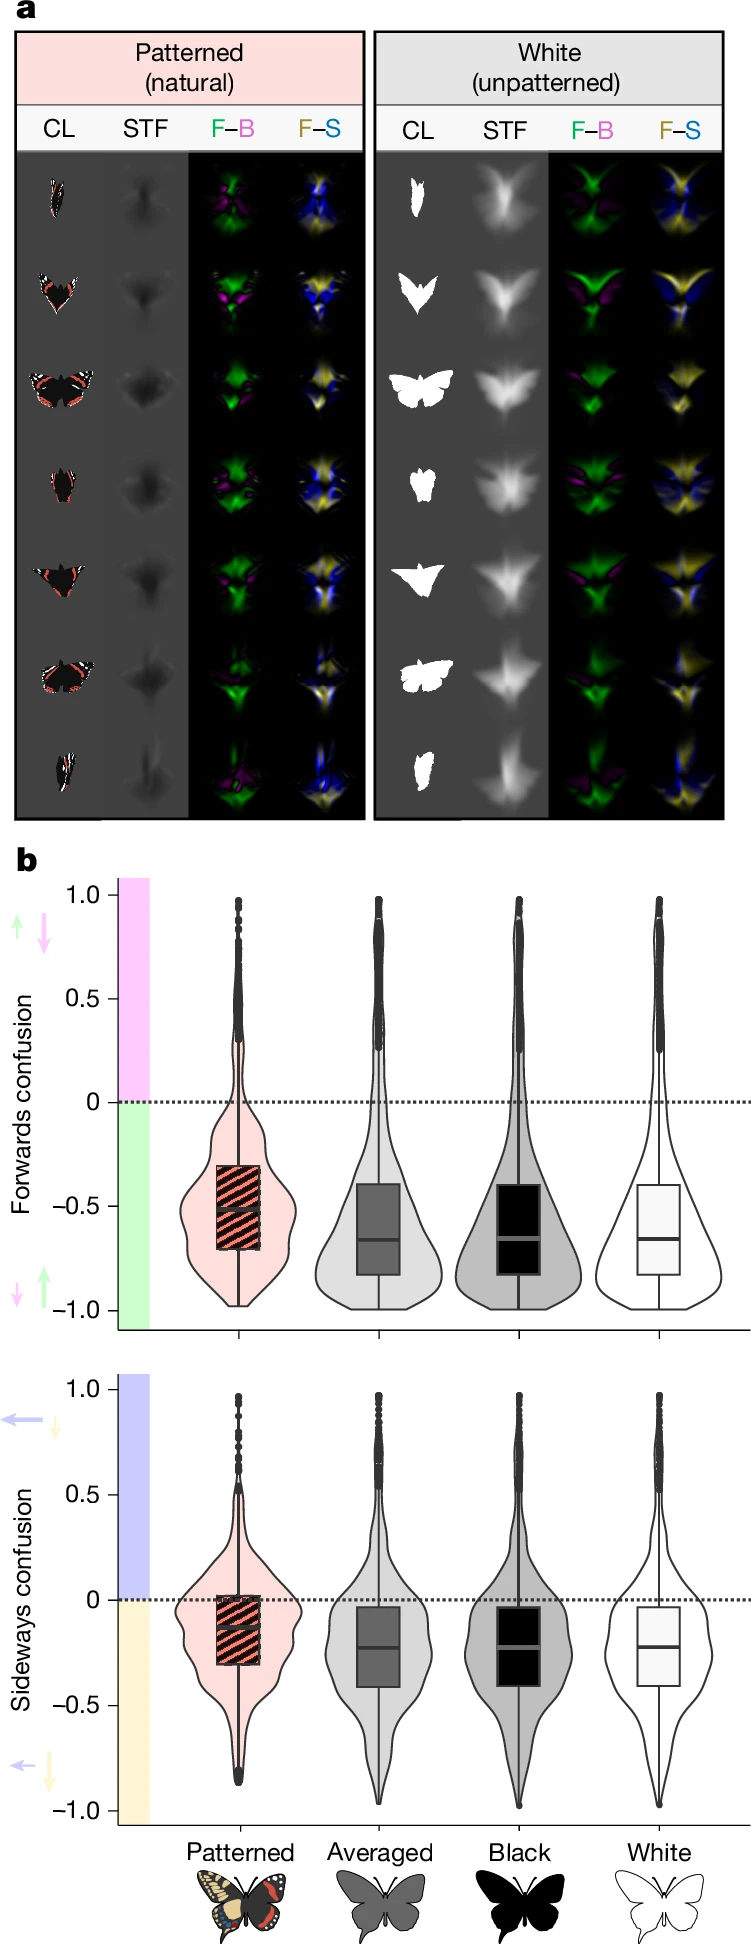
Первым этапом работы стала проверка гипотезы на реальных насекомых. Биологи отловили в естественной среде обитания представителей пяти видов бабочек из Европы и Африки, включая такие известные виды, как махаон (Papilio machaon), адмирал (Vanessa atalanta) и зорька (Anthocharis cardamines). С учетом различий в окраске самцов и самок ученые получили семь различных типов рисунка крыльев.
Взлет каждого насекомого снимали на высокоскоростную камеру с частотой 1057 кадров в секунду на фоне однородного зеленого экрана. Затем отснятый материал обработали с помощью специальных программных фильтров. Видеозаписи перевели в оптический диапазон, соответствующий зрению лесных насекомоядных птиц — в частности, лазоревки, чьи сдвоенные колбочки сетчатки отвечают за обнаружение перемещения объектов.
Ученые учли два важнейших физиологических параметра птичьего глаза: предельное пространственное разрешение (способность различать мелкие детали на определенном расстоянии) и критическую частоту слияния мельканий, которая у мелких воробьинообразных составляет около 100 герц. Все зрительные сигналы, которые птица физически не способна воспринять, были удалены из видеоряда путем математического размытия.
После этого исследователи создали контрольные версии тех же самых видеозаписей. С помощью алгоритмов сегментации естественный полосатый рисунок бабочек стерли, заменив его на полностью однотонные текстуры: равномерно серую, чисто белую и чисто черную. Форма крыльев и траектория взмахов при этом остались абсолютно одинаковыми.
Затем все видеозаписи пропустили через математическую модель элементарных детекторов движения. Результаты показали статистически достоверную разницу: бабочки с естественным рисунком крыльев вызывали существенно более сильную продольную и боковую дезориентацию детекторов, чем особи с однотонными крыльями. Наличие чередующихся полос уменьшало долю сигналов движения вперед и резко увеличивало долю противоположных векторов.
Трехмерное моделирование 757 видов европейских бабочек
Эксперимент с живыми насекомыми доказал работоспособность механизма, но выборка из пяти видов была слишком мала, чтобы делать выводы об эволюционном масштабе явления. Поэтому исследователи перешли к масштабному математическому моделированию.
Они оцифровали иллюстрации из фундаментального полевого определителя бабочек Европы, получив точные изображения верхней стороны крыльев для 397 видов, что с учетом половых различий и подвидов составило 757 уникальных вариантов окраски. Европейская фауна удобна тем, что среди этих видов практически нет ядовитых форм, копирующих окраску друг друга, однако почти все они обладают выразительными контрастными узорами.
Для каждого вида ученые создали детальную цифровую трехмерную модель в пакете Blender. Полет анимировали со скоростью 2000 кадров в секунду. Программа воспроизводила естественную аэродинамику: крылья не просто двигались вверх и вниз по фиксированной оси, а изгибались, хлопали в верхней точке и разворачивались под углом, повторяя движения живого насекомого.
Частоту взмахов рассчитывали строго индивидуально для каждого вида, исходя из известной биомеханической зависимости между массой тела, площадью крыла и скоростью его движения. Более мелкие бабочки с небольшой площадью крыла махали чаще, крупные виды — реже.
Каждую из 757 моделей протестировали в шести вариантах:
- с естественным природным рисунком;
- с однородной серой окраской;
- с чисто белой окраской;
- в активном машущем полете;
- в режиме планирования (без взмахов).
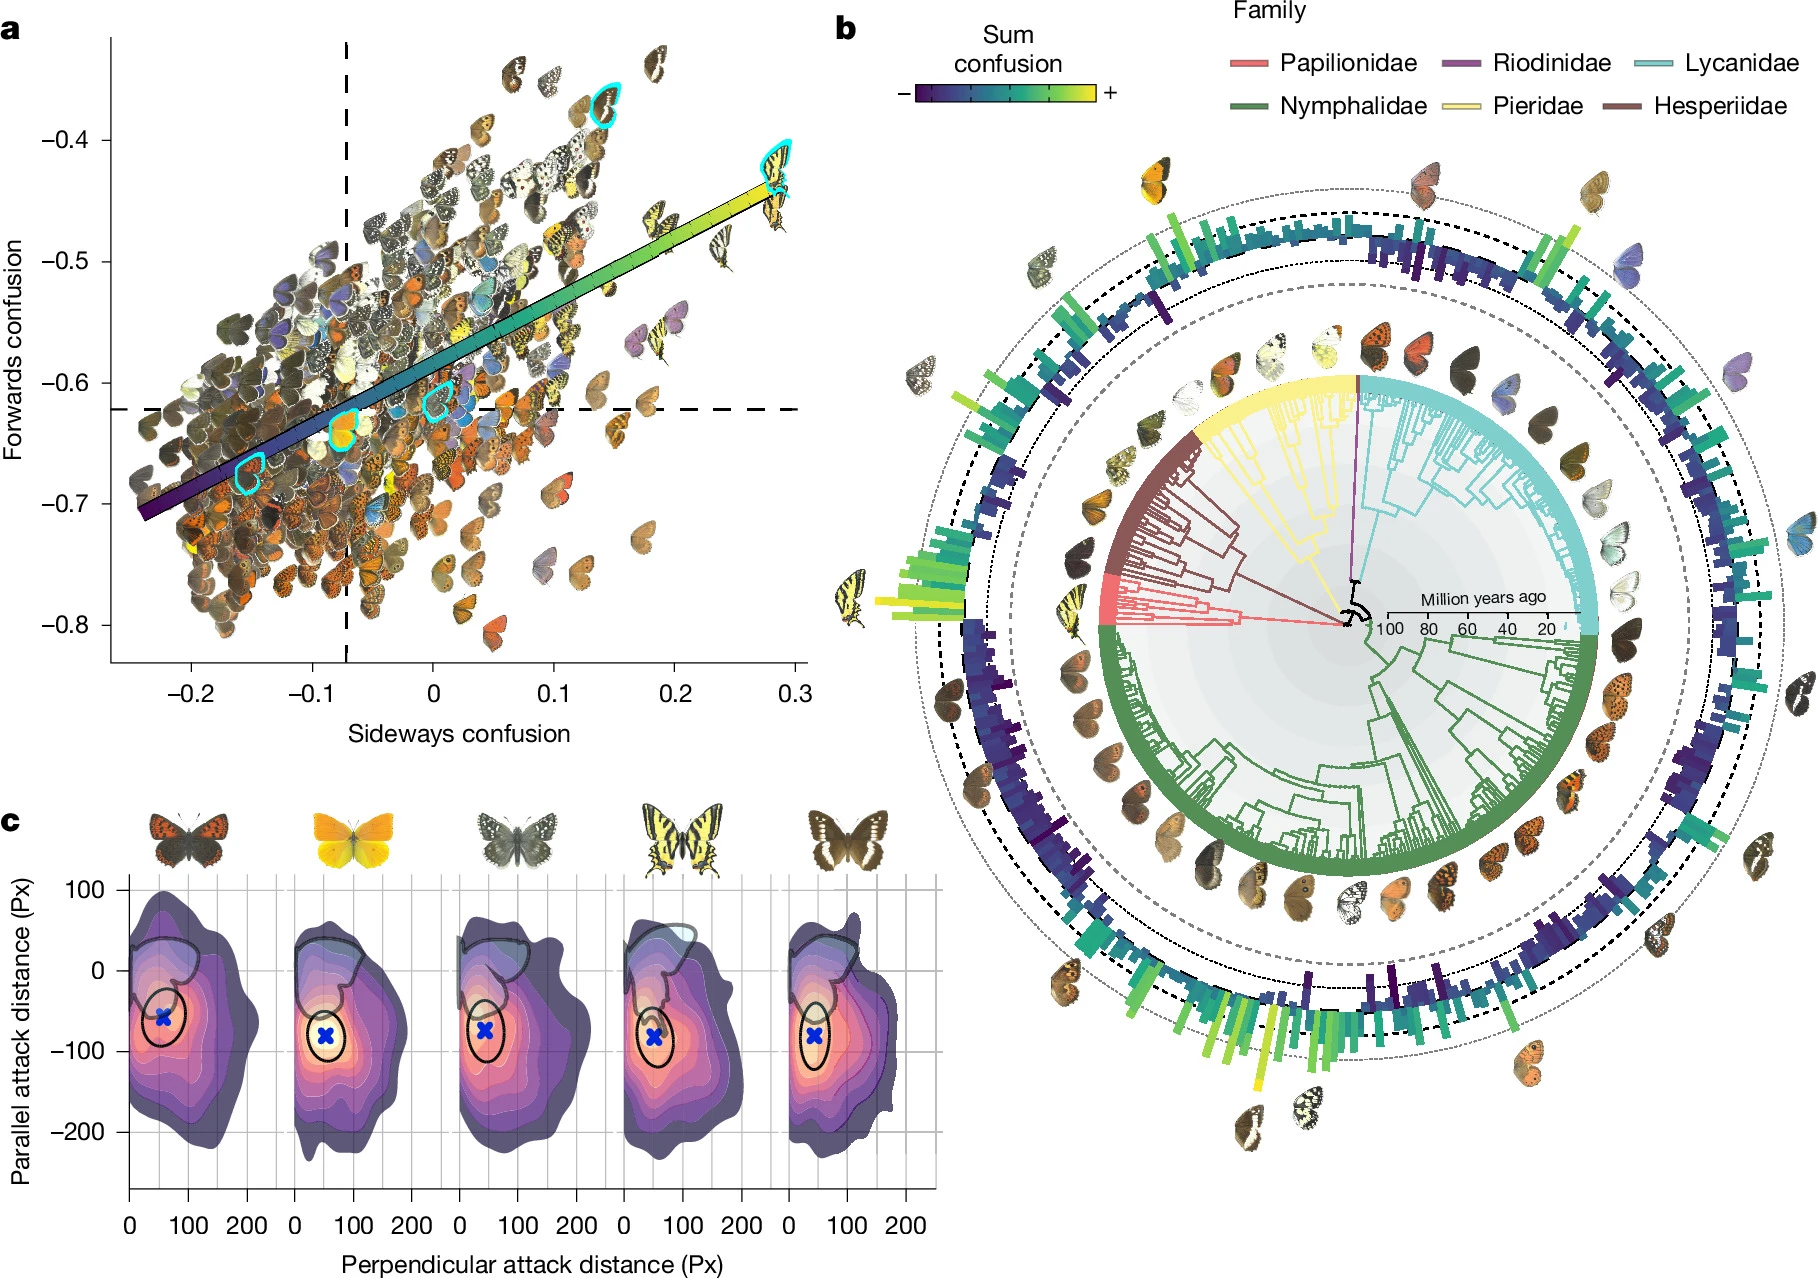
Для обработки гигантского массива данных применили алгоритм машинного обучения — метод случайного леса (Random Forest). Программа проанализировала 73 различных признака каждого вида, включая параметры формы крыла, размеры тела, контрастность, направление полос и степень эволюционного родства между семействами.
Анализ показал четкие закономерности. Максимальную ошибку восприятия скорости (продольное искажение) вызывали следующие элементы:
- высокий контраст элементов переднего крыла;
- наличие четких вертикальных полос на заднем крыле;
- неравномерное распределение полос — чаще всего одна широкая полоса по центру крыла или контрастная окантовка по его краю;
- волнистая, сложная форма края заднего крыла.
Боковое искажение траектории сильнее всего зависело от общих размеров тела, вертикальной направленности полос и наличия выростов («хвостиков») на задних крыльях.
Кроме того, выяснилась принципиальная разница между машущим полетом и планированием. Продольная ошибка восприятия скорости может возникать исключительно тогда, когда крылья активно двигаются. Если бабочка переходит на планирование, продольный обман зрения полностью исчезает. Однако боковой обман направления сохраняется даже при неподвижных крыльях.
Это объясняет особенности семейства парусников (Papilionidae), к которому относится махаон. Эти крупные бабочки часто используют планирующий полет. Моделирование показало, что их узоры и форма крыльев сбалансированы таким образом, чтобы одновременно максимизировать как продольное, так и боковое искажение. Другие группы, например семейство нимфалид (Nymphalidae), почти не планируют, поэтому их рисунок оптимизирован под создание максимальной продольной ошибки во время непрерывного махания.
Компьютерная эволюция: воспроизведение природных полос с нуля
Один из главных вопросов любого эволюционного исследования звучит так: действительно ли эти рисунки развились под давлением отбора ради обмана хищников, или же они возникли случайно в силу особенностей развития пигментов?
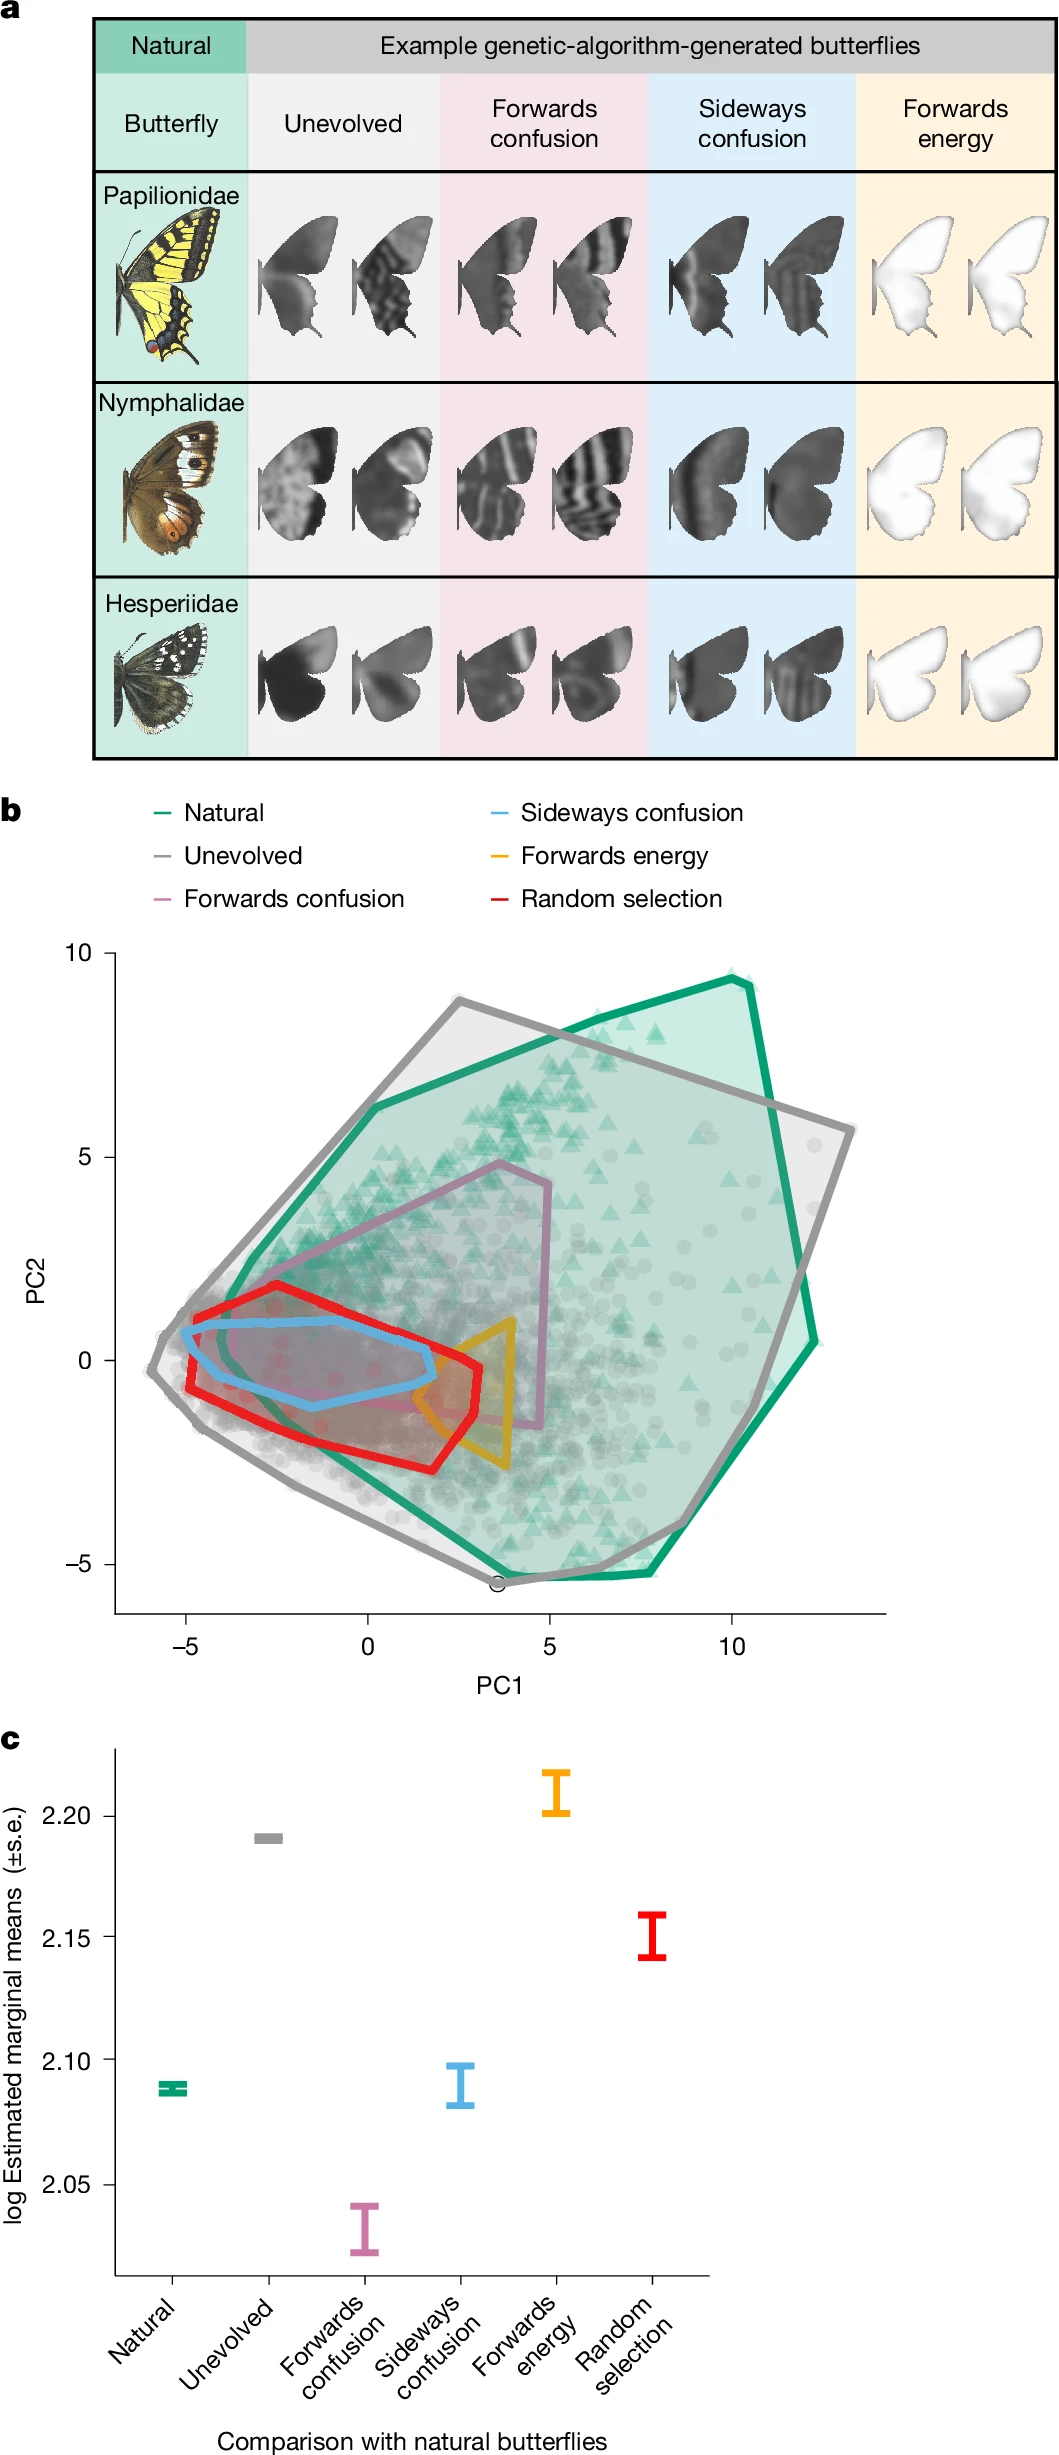
Чтобы получить ответ, авторы применили генетический алгоритм. Они создали виртуальную среду, в которой компьютерная программа моделировала эволюцию узоров на протяжении 20 поколений. Всего за время симуляции было создано 57 600 уникальных вариантов рисунка крыльев.
В начале эксперимента программа создавала случайные текстуры с помощью математических уравнений реакции-диффузии. Это были беспорядочные пятна и шумы, не имеющие ничего общего с крыльями реальных бабочек. Затем алгоритм помещал эти текстуры на трехмерные модели крыльев и запускал симуляцию полета через модель зрительных детекторов птицы.
Отбор шел по строго заданным критериям:
- в первой группе особей отбирали исключительно по способности создавать максимальную ошибку восприятия скорости (продольное искажение);
- во второй группе — по способности создавать боковое искажение;
- в третьей группе — по величине суммарной прямой энергии движения вперед;
- четвертая группа служила контролем: выживание в ней определялось случайным образом, имитируя генетический дрейф без давления отбора.
В каждом поколении восемь лучших особей оставляли виртуальное потомство с небольшими случайными мутациями, а остальные отбраковывались.
Результаты эксперимента подтвердили эволюционную гипотезу. Цифровые узоры из группы, где отбор шел на максимальное искажение скорости, спустя 20 поколений самостоятельно трансформировались в четкие вертикальные полосы и широкие контрастные перевязи. Статистический анализ показал, что эти искусственно выведенные изображения по своим математическим характеристикам вплотную приблизились к рисункам настоящих европейских видов бабочек. Случайные текстуры из контрольной группы такого сходства не показали.
Особый результат дала селекция на максимальную энергию движения вперед. Особи этой группы постепенно потеряли все темные полосы и стали абсолютно белыми. В природе этой схеме в точности соответствуют бабочки-белянки (Pieridae), например капустница.
Если полосатый узор заставляет хищника занижать скорость цели, то равномерный ярко-белый цвет производит противоположный эффект: зрительная система наблюдателя завышает скорость белого объекта на контрастном фоне. В обоих случаях расчет траектории оказывается неверным: в первом случае птица атакует с отставанием, а во втором — берет слишком большое упреждение и промахивается вперед.
Эксперимент с участием людей: подтверждение промаха
Теоретические расчеты и компьютерные модели требовали практического подтверждения на живых существах. Для этого ученые организовали масштабный поведенческий эксперимент, в котором роль атакующих хищников сыграли 100 добровольцев.
Экспериментальная установка представляла собой монитор с частотой обновления 240 герц, оснащенный инфракрасной рамкой, регистрирующей прикосновения пальца без задержек. Участникам предлагалась задача: как можно быстрее коснуться пальцем виртуальной бабочки, которая появлялась в одном из углов экрана и перелетала через поле по нелинейной, волнообразной траектории.
Физические параметры движения на экране точно откалибровали. Поскольку человек реагирует и видит медленнее, чем птица, бабочки двигались со скоростью 40 сантиметров в секунду. Однако визуальное размытие и частота взмахов на экране соответствовали реальному полету на скорости 80 сантиметров в секунду, чтобы создать нагрузку на детекторы движения, эквивалентную той, с которой сталкивается птица в дикой природе.
Всего добровольцы выполнили 3000 попыток перехвата пяти выбранных видов бабочек, различающихся по силе создаваемого оптического обмана. Компьютер фиксировал точные координаты каждого касания относительно центра тела насекомого.
Результаты полностью совпали с расчетами математической модели:
- Рисунок крыльев оказывал прямое и измеримое влияние на то, куда именно приходился удар.
- При попытке поймать виды с высоким показателем искажения скорости (например, бархатницу Цирцею или парусника Алексанора) люди систематически нажимали на экран позади летящего насекомого.
- Статистический анализ плотности касаний показал, что средняя точка удара по видам с максимальным оптическим эффектом смещалась назад относительно видов со слабым эффектом на расстояние, равное примерно 38 процентам длины тела бабочки.
В реальных условиях охоты промах на треть длины корпуса решает исход нападения. Птица, летящая с раскрытым клювом, либо полностью промахивается мимо цели, либо задевает самый край заднего крыла. Насекомое при этом теряет часть чешуек или фрагмент крыла, но сохраняет жизнеспособность и успевает скрыться в растительности.
Выводы и практическое значение исследования
Данная работа меняет научное представление о функциях внешнего облика животных. На протяжении десятилетий биологи изучали окраску чешуекрылых по засушенным коллекциям в музеях, где крылья неподвижно расправлены. Однако исследование ученых из Эксетера и Эссекса показывает, что окраска многих живых организмов представляет собой динамическую структуру, смысл которой раскрывается только в процессе движения.
Этот вывод выходит за рамки энтомологии. Подобные оптические механизмы теперь предстоит исследовать у других представителей животного мира, чьи движения носят ритмический и колебательный характер. К ним относятся полосатые перья на машущих крыльях многих околоводных птиц, контрастные хвосты ящериц, которыми они совершают резкие волнообразные движения при беге, а также плавники рифовых рыб.
Второе важное следствие этой работы лежит в инженерно-технической плоскости. Системы машинного зрения, автоматического слежения и оптического перехвата быстродвижущихся объектов работают на тех же базовых алгоритмах обнаружения оптического потока, что и природные элементарные детекторы движения EMD.
Понимание того, как простые чередующиеся полосы нарушают математику вычисления скорости внутри этих алгоритмов, открывает путь к созданию методов пассивной маскировки для подвижных механизмов. Нанесение специализированных геометрических узоров на вращающиеся или колеблющиеся детали — например, на лопасти дронов или подвижные элементы роботизированных платформ — позволяет снизить вероятность их успешного автоматического захвата оптическими сенсорами без применения сложных электронных систем подавления.
Источник: Nature
1 комментарий
Добавить комментарий