Белки возрастом 160 млн лет уничтожают современные супербактерии: как одна ошибка создала природный антибиотик
В организме млекопитающих защиту от инфекций обеспечивают сотни различных соединений. Одно из самых распространенных среди них — белок лактоферрин. Он присутствует в материнском молоке, слюне, слезах и во внутренних гранулах иммунных клеток — нейтрофилов. Долгое время биологи рассматривали лактоферрин исключительно как белок, связывающий железо. Свободное железо необходимо большинству бактерий для деления. Лактоферрин прочно захватывает ионы этого металла, лишая патогены ресурса для размножения. В биологии этот механизм называют пищевым, или нутритивным, иммунитетом.
Позже исследователи выяснили, что у лактоферрина есть еще одна функция, напрямую не связанная с захватом железа. Когда этот белок попадает в пищеварительный тракт или очаг воспаления, ферменты расщепляют его на части. Один из образующихся фрагментов представляет собой короткую цепочку из двадцати пяти аминокислот. Этот участок назвали лактоферрицином.
В свободном виде лактоферрицин действует независимо от основной молекулы. Он связывается с внешней оболочкой бактериальной клетки и нарушает ее целостность, приводя к физической гибели микроорганизма.
Такие участки называют скрытыми антимикробными пептидами. Они находятся внутри более крупных белков, которые изначально выполняют нейтральные физиологические задачи, и активируются только после расщепления ферментами.
Возник важный фундаментальный вопрос: каким образом белок, отвечавший лишь за перемещение железа, развил способность разрушать клеточные стенки бактерий? Чтобы выяснить это, группа биологов из Орегонского университета реконструировала исходные формы лактоферрина, существовавшие у общих предков современных млекопитающих более 160 миллионов лет назад. Результаты этой работы были опубликованы в научном журнале PLOS Biology.
Содержание
- Разделение генов в эпоху мезозоя
- Метод реконструкции вымерших белков
- Физический механизм разрушения бактериальных оболочек
- Проверка на бактериях: от обратимого повреждения к гибели
- Мутация в восьмой позиции как поворотный момент
- Парадокс человеческого пептида
- Причины снижения бактерицидности у человека
- Итоги и прикладное значение
Разделение генов в эпоху мезозоя
Предком лактоферрина был трансферрин — древний транспортный белок, который до сих пор работает в кровеносной системе всех позвоночных животных. Трансферрин переносит железо между тканями через кровоток и не имеет антимикробных пептидов внутри своей структуры.
Примерно 160 миллионов лет назад в геноме общего предка плацентарных млекопитающих произошла ошибка копирования — дупликация гена трансферрина. В ДНК появилась вторая копия того же самого гена.
В эволюции появление дубликата освобождает одну из копий от жесткого контроля естественного отбора. Исходный ген трансферрина продолжил обеспечивать транспорт железа в крови: любые серьезные мутации в нем приводили к гибели организма, поэтому его структура оставалась стабильной. Вторая копия получила возможность меняться, накапливая случайные мутации.
Со временем эта вторая копия превратилась в ген лактоферрина. Белок изменил места своего синтеза: если трансферрин вырабатывается в основном печенью для работы в сосудистом русле, то лактоферрин стал вырабатываться эпителиальными клетками слизистых оболочек и молочных желез. На этих внешних границах организм постоянно контактирует с бактериями из окружающей среды. Ограничения доступа к железу здесь было недостаточно, требовалось прямое уничтожение микробов до того, как они проникнут в ткани.
Метод реконструкции вымерших белков
Чтобы изучить свойства белков, существовавших десятки миллионов лет назад, исследователи не могут использовать ископаемые остатки: органические цепочки в окаменелостях полностью разрушаются. Поэтому биологи применили метод реконструкции предковых последовательностей (Ancestral Sequence Reconstruction).
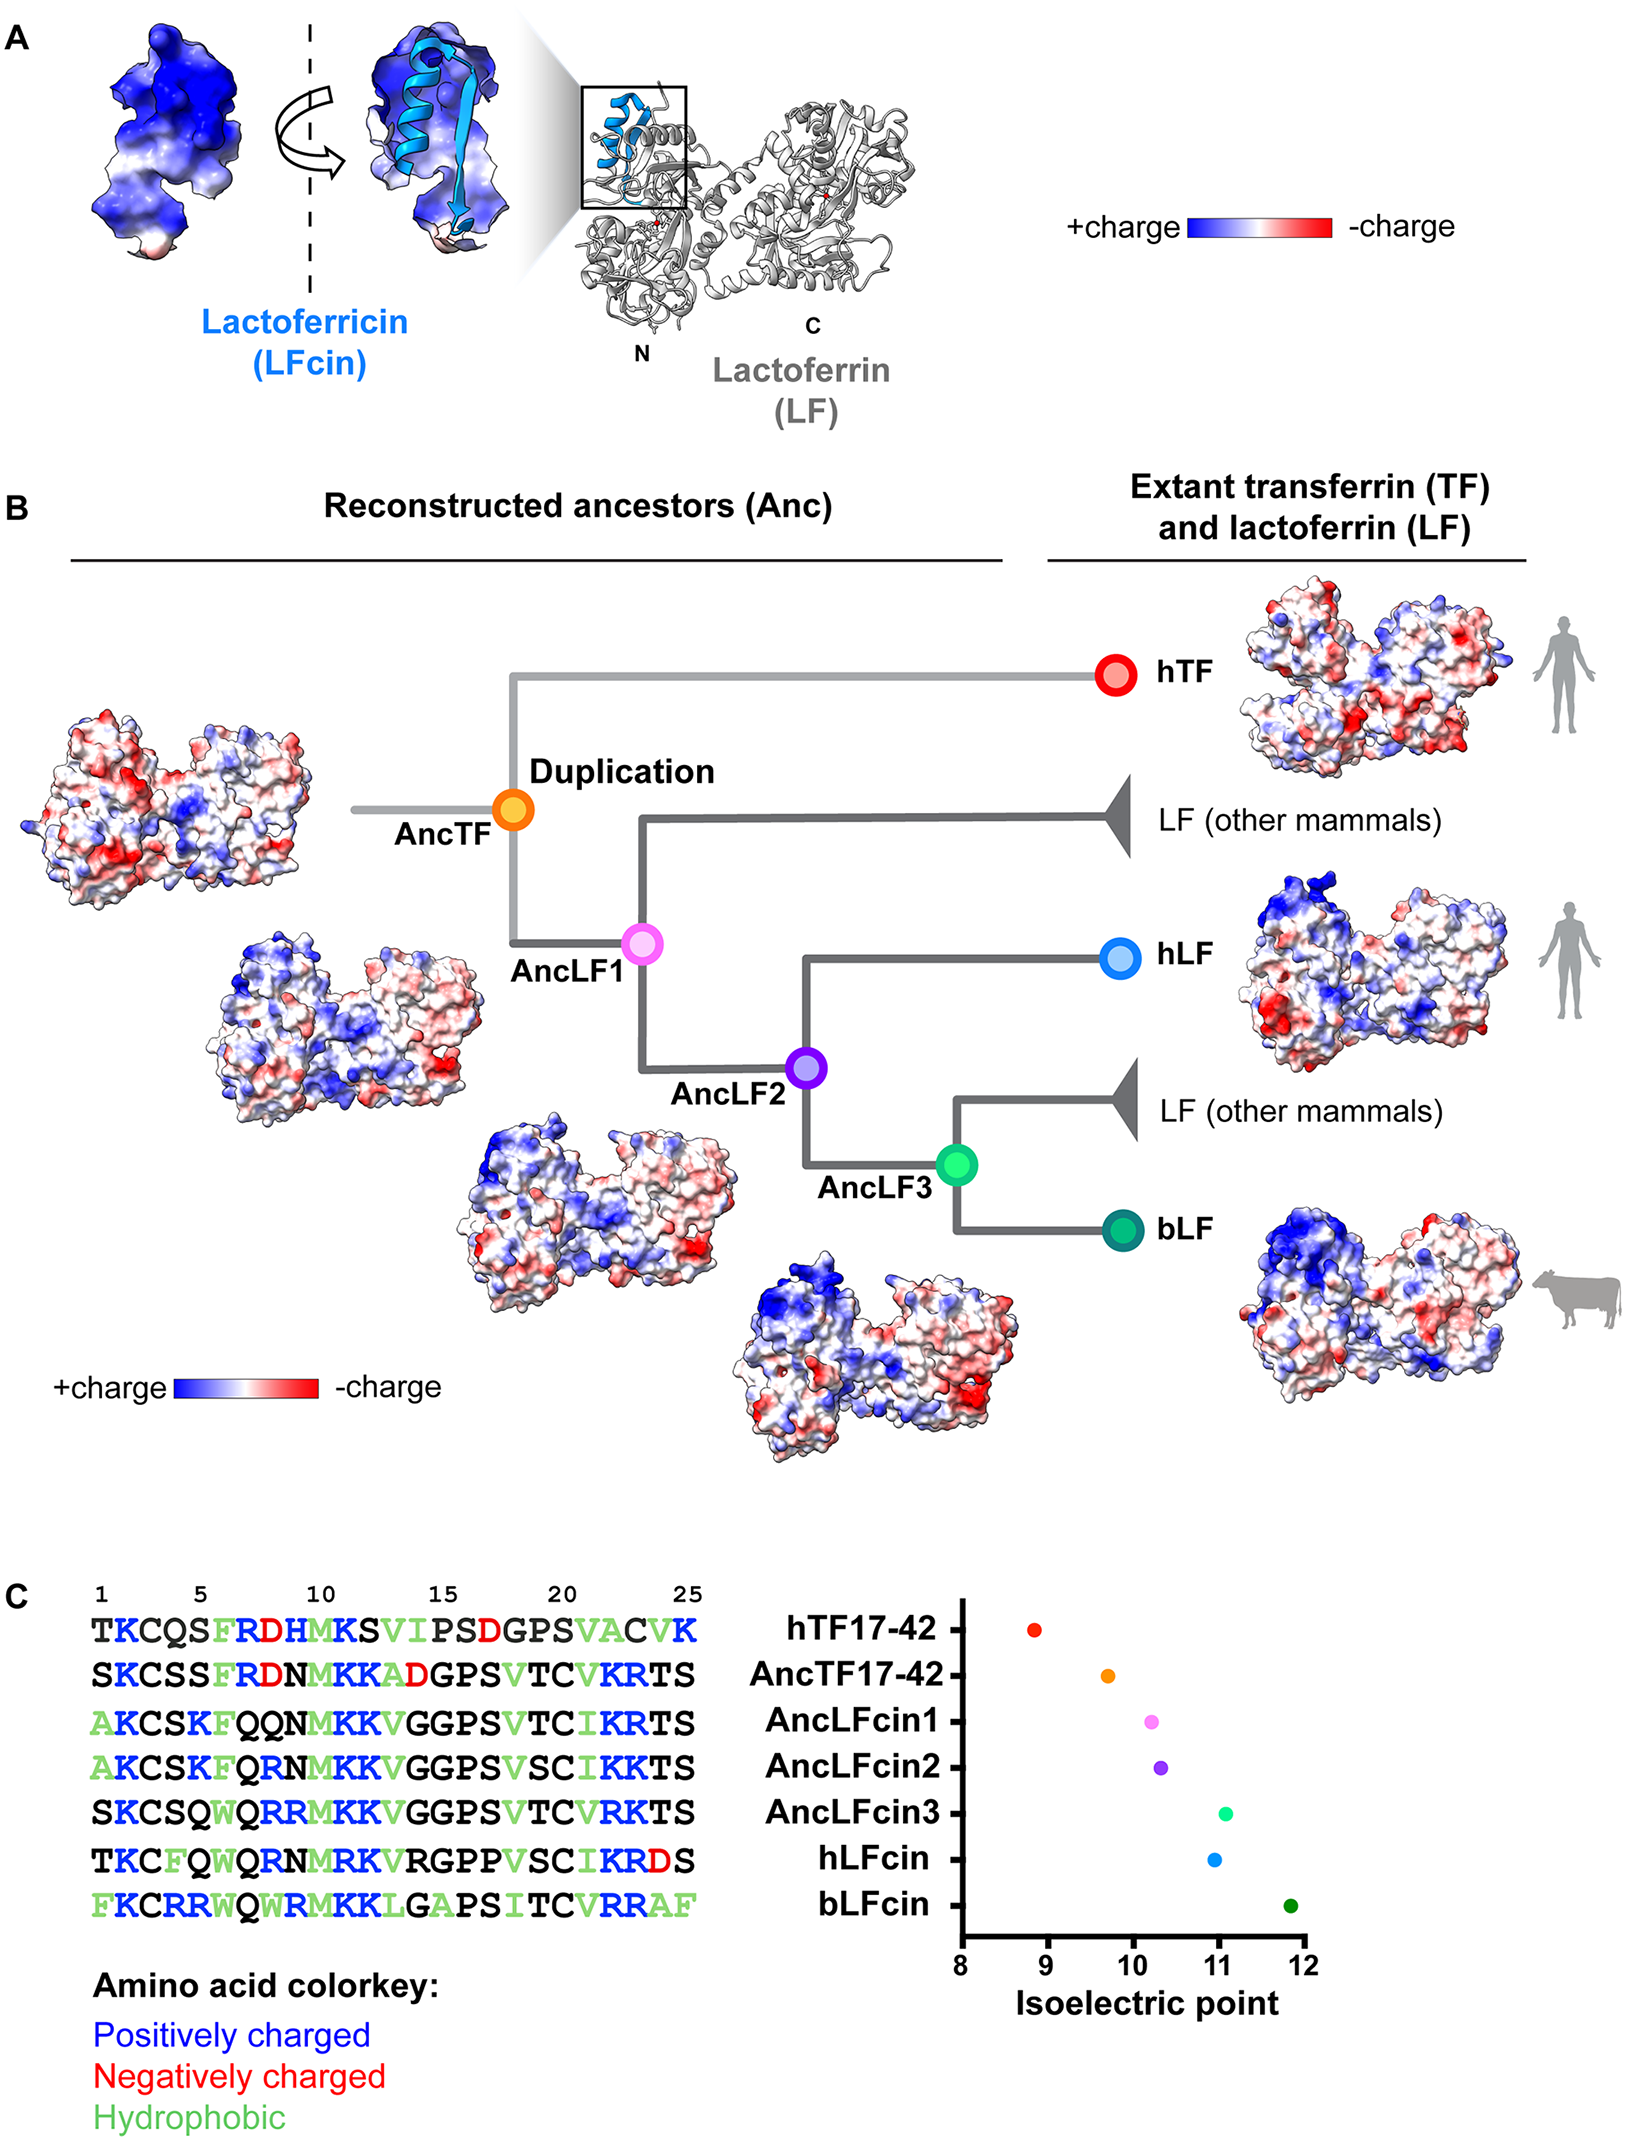
Этот подход основан на математическом сравнении аминокислотных последовательностей современных белков. Ученые собрали данные о строении 376 белков семейства трансферринов у современных животных — рыб, птиц, сумчатых и плацентарных млекопитающих. С помощью программного пакета Topiary они построили генетическое дерево и рассчитали, какие именно аминокислоты находились в каждом положении молекулы в узловых точках эволюции.
Исследователи определили последовательности для четырех ключевых предков:
- AncTF — общий предок трансферрина и лактоферрина, существовавший до удвоения гена.
- AncLF1 — самая первая версия лактоферрина, возникшая сразу после дупликации у ранних млекопитающих.
- AncLF2 — общий предок лактоферрина современных хищников, копытных и приматов.
- AncLF3 — предок лактоферрина, характерный для линии жвачных парнокопытных.
Используя алгоритм ColabFold на базе нейросети AlphaFold2, ученые спрогнозировали трехмерное пространственное строение этих молекул. Затем они заказали химический синтез самих пептидов лактоферрицина в лаборатории, чтобы проверить их действие на живых микроорганизмах.
Физический механизм разрушения бактериальных оболочек
Чтобы понять, как менялся пептид, необходимо рассмотреть устройство бактериальных мембран.
Клеточные оболочки бактерий состоят из липидов, к которым присоединены отрицательно заряженные химические группы. У грамотрицательных бактерий (таких как кишечная или синегнойная палочки) снаружи находится слой липополисахаридов, несущих сильный отрицательный заряд. У грамположительных бактерий (таких как стафилококки и стрептококки) толстая стенка пронизана отрицательно заряженными тейхоевыми кислотами. В отличие от них, внешняя поверхность клеток млекопитающих в норме электрически нейтральна.
Антимикробные пептиды используют эту разницу. Чтобы атаковать бактерию, пептид должен обладать двумя физико-химическими свойствами:
- Иметь положительный электрический заряд, чтобы притягиваться к отрицательно заряженной оболочке микроба. Положительный заряд белкам обеспечивают катионные аминокислоты — аргинин, лизин и гистидин.
- Иметь участки, растворимые в жирах (гидрофобные), чтобы внедряться внутрь липидного слоя мембраны. Это свойство дают ароматические аминокислоты — фенилаланин, тирозин и триптофан.
Анализ реконструированных предков показал, как именно менялся N-концевой участок лактоферрина. Исходный участок трансферрина (AncTF) обладал нейтральным или даже слабым отрицательным зарядом и не взаимодействовал с бактериями.
После удвоения гена в лактоферрицине начал расти суммарный положительный заряд. Изоэлектрическая точка пептида (показатель, отражающий плотность положительных зарядов) непрерывно увеличивалась от предка трансферрина к современным формам. В структуре пептида стали появляться катионные аминокислоты: сначала лизин в пятой позиции у AncLF1, затем аргинин в восьмой позиции у AncLF2 и аргинин в девятой позиции у AncLF3.
Одновременно с этим рядом с положительно заряженными остатками закрепились гидрофобные аминокислоты. Образовалась структура, где положительные заряды обеспечивали первичное сцепление с поверхностью микроба, а гидрофобные участки нарушали порядок укладки липидов внутри бактериальной мембраны.
Проверка на бактериях: от обратимого повреждения к гибели
Синтезировав предковые и современные пептиды, ученые провели серию экспериментов на культуре синегнойной палочки (Pseudomonas aeruginosa), кишечной палочки (Escherichia coli), золотистого стафилококка (Staphylococcus aureus) и стрептококка (Streptococcus agalactiae).
Для оценки повреждений использовались три независимых метода:
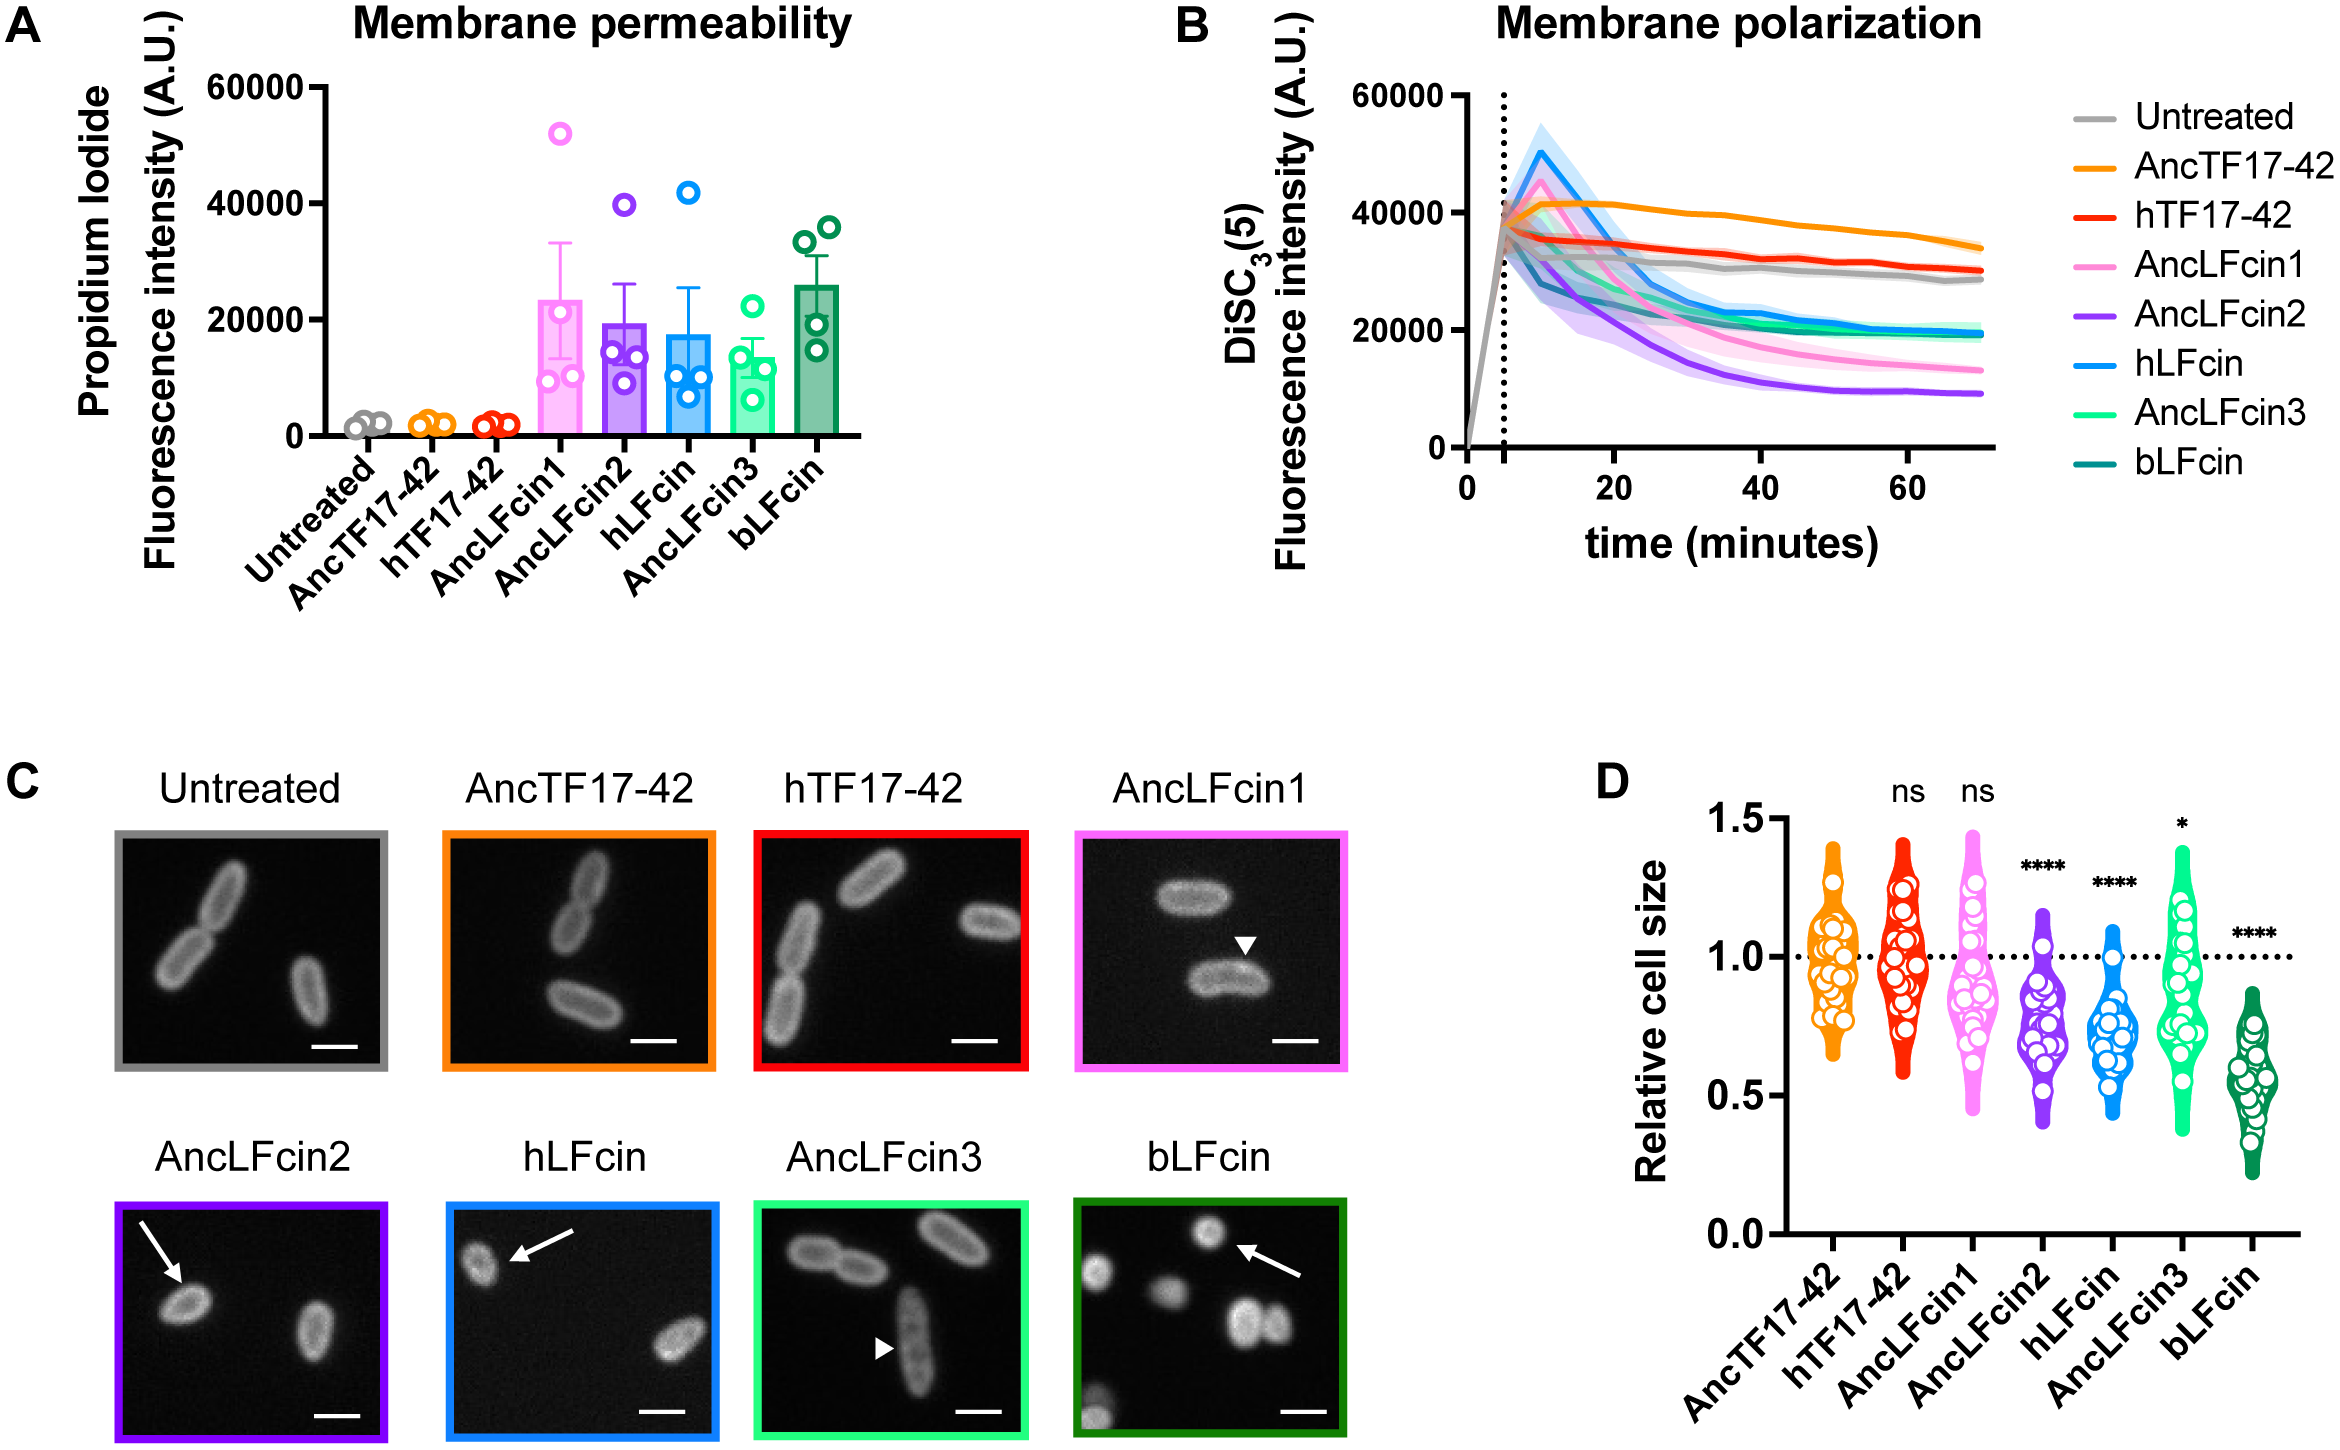
- Окрашивание пропидием иодидом. Этот краситель не способен пройти через здоровую клеточную мембрану. Он проникает внутрь бактерии и связывается с ее ДНК только в том случае, если в оболочке образовались сквозные отверстия.
- Измерение мембранного потенциала с помощью красителя DiSC3(5). Этот маркер реагирует на изменение разности электрических потенциалов между внутренней и внешней стороной бактериальной мембраны.
- Конфокальная микроскопия высокого разрешения с окрашиванием липидного слоя красителем Nile Red. Этот метод позволяет видеть физические изменения формы и размеров отдельных бактериальных клеток.
Эксперименты показали, что исходный фрагмент трансферрина (как предковый AncTF, так и современный человеческий hTF) не оказывал на бактерии никакого действия: клетки продолжали делиться, их мембраны оставались целыми.
Самый древний вариант лактоферрицина, AncLFcin1, показал промежуточные свойства. Он уже умел связываться с мембраной синегнойной палочки и увеличивал ее проницаемость для пропидия иодида в первые тридцать минут. Краситель DiSC3(5) зафиксировал гиперполяризацию мембраны, свидетельствующую о нарушении баланса ионов.
Однако бактерицидная сила этого предка была очень слабой. При концентрациях пептида до 400 микрограммов на миллилитр синегнойная палочка и кишечная палочка сохраняли жизнеспособность. Повреждения мембраны были временными: бактерии запускали защитные молекулярные механизмы, закрывали бреши в оболочке и восстанавливали популяцию. Более того, при низких дозах AncLFcin1 бактерии использовали аминокислоты пептида для собственного питания.
Качественный перелом произошел на этапе AncLFcin2 — общего предка копытных и приматов. Этот пептид действовал необратимо. При концентрации 100 микрограммов на миллилитр число живых бактерий P. aeruginosa за 24 часа сокращалось в тысячу раз. В опытах с золотистым стафилококком жизнеспособность бактериальной культуры снижалась в сто тысяч раз.
На микроскопических снимках было зафиксировано, что под воздействием AncLFcin2 и современных пептидов бактериальные клетки резко уменьшались в размерах, теряли форму палочек и сморщивались из-за неконтролируемой потери внутреннего содержимого цитоплазмы.
Мутация в восьмой позиции как поворотный момент
Последовательности первого слабого пептида AncLFcin1 и активного пептида AncLFcin2 различаются всего в трех позициях. Биологи решили проверить, какая именно замена обеспечила резкий рост эффективности.
Главным кандидатом стала восьмая позиция. У слабого предка AncLFcin1 на этом месте находился глутамин — полярная, но электрически нейтральная аминокислота. У летального предка AncLFcin2 там появился аргинин, обладающий сильным положительным зарядом.
Исследователи провели встречный эксперимент. Они искусственно создали два мутантных пептида:
- В древний пептид AncLFcin1 внедрили аргинин вместо глутамина (вариант AncLFcin1Q8R).
- Из продвинутого пептида AncLFcin2 убрали аргинин, вернув на его место глутамин (вариант AncLFcin2R8Q).
Тесты на культуре Pseudomonas aeruginosa дали однозначный результат:
- Замена нейтрального глутамина на положительно заряженный аргинин в древнем пептиде AncLFcin1 полностью изменила его свойства. Он приобрел высокую летальность и начал подавлять бактерии так же эффективно, как и более поздние формы.
- Обратная замена в AncLFcin2 (удаление аргинина) привела к резкой потере активности против синегнойной палочки: бактерии перестали погибать и смогли расти в присутствии пептида.
Таким образом, появление всего одного атома с положительным зарядом в строго определенной точке молекулы превратило лактоферрицин из вещества, вызывавшего временное раздражение мембраны, в фактор, вызывающий гибель бактериальной клетки.
При этом в отношении золотистого стафилококка одиночной мутации Q8R оказалось недостаточно для полного усиления AncLFcin1. Это показало, что устойчивость грамположительных бактерий с их толстой пептидогликановой стенкой требует согласованного действия сразу нескольких аминокислотных замен.
Парадокс человеческого пептида
Логично было бы предположить, что в ходе дальнейшей эволюции эффективность лактоферрицина продолжала непрерывно расти. Однако прямое сравнение современных белков опровергло эту гипотезу.
Наиболее активным среди изученных вариантов оказался лактоферрицин коровы (bLFcin). Он полностью уничтожал бактериальные колонии синегнойной палочки и стафилококка всего за два часа инкубации при минимальной концентрации в 50 микрограммов на миллилитр. Структурный анализ показал, что в коровьем пептиде присутствуют сразу три пары «положительный заряд — ароматическая аминокислота»: фенилаланин-лизин, аргинин-триптофан и триптофан-аргинин.
Человеческий же лактоферрицин (hLFcin) оказался значительно менее эффективным. Он справляется с грамотрицательными бактериями, но против стафилококков работает слабо: для заметного снижения численности S. aureus требуются дозировки выше 200-400 микрограммов на миллилитр. По своей бактерицидной силе против стафилококков современный человек уступает собственным древним предкам, жившим миллионы лет назад.
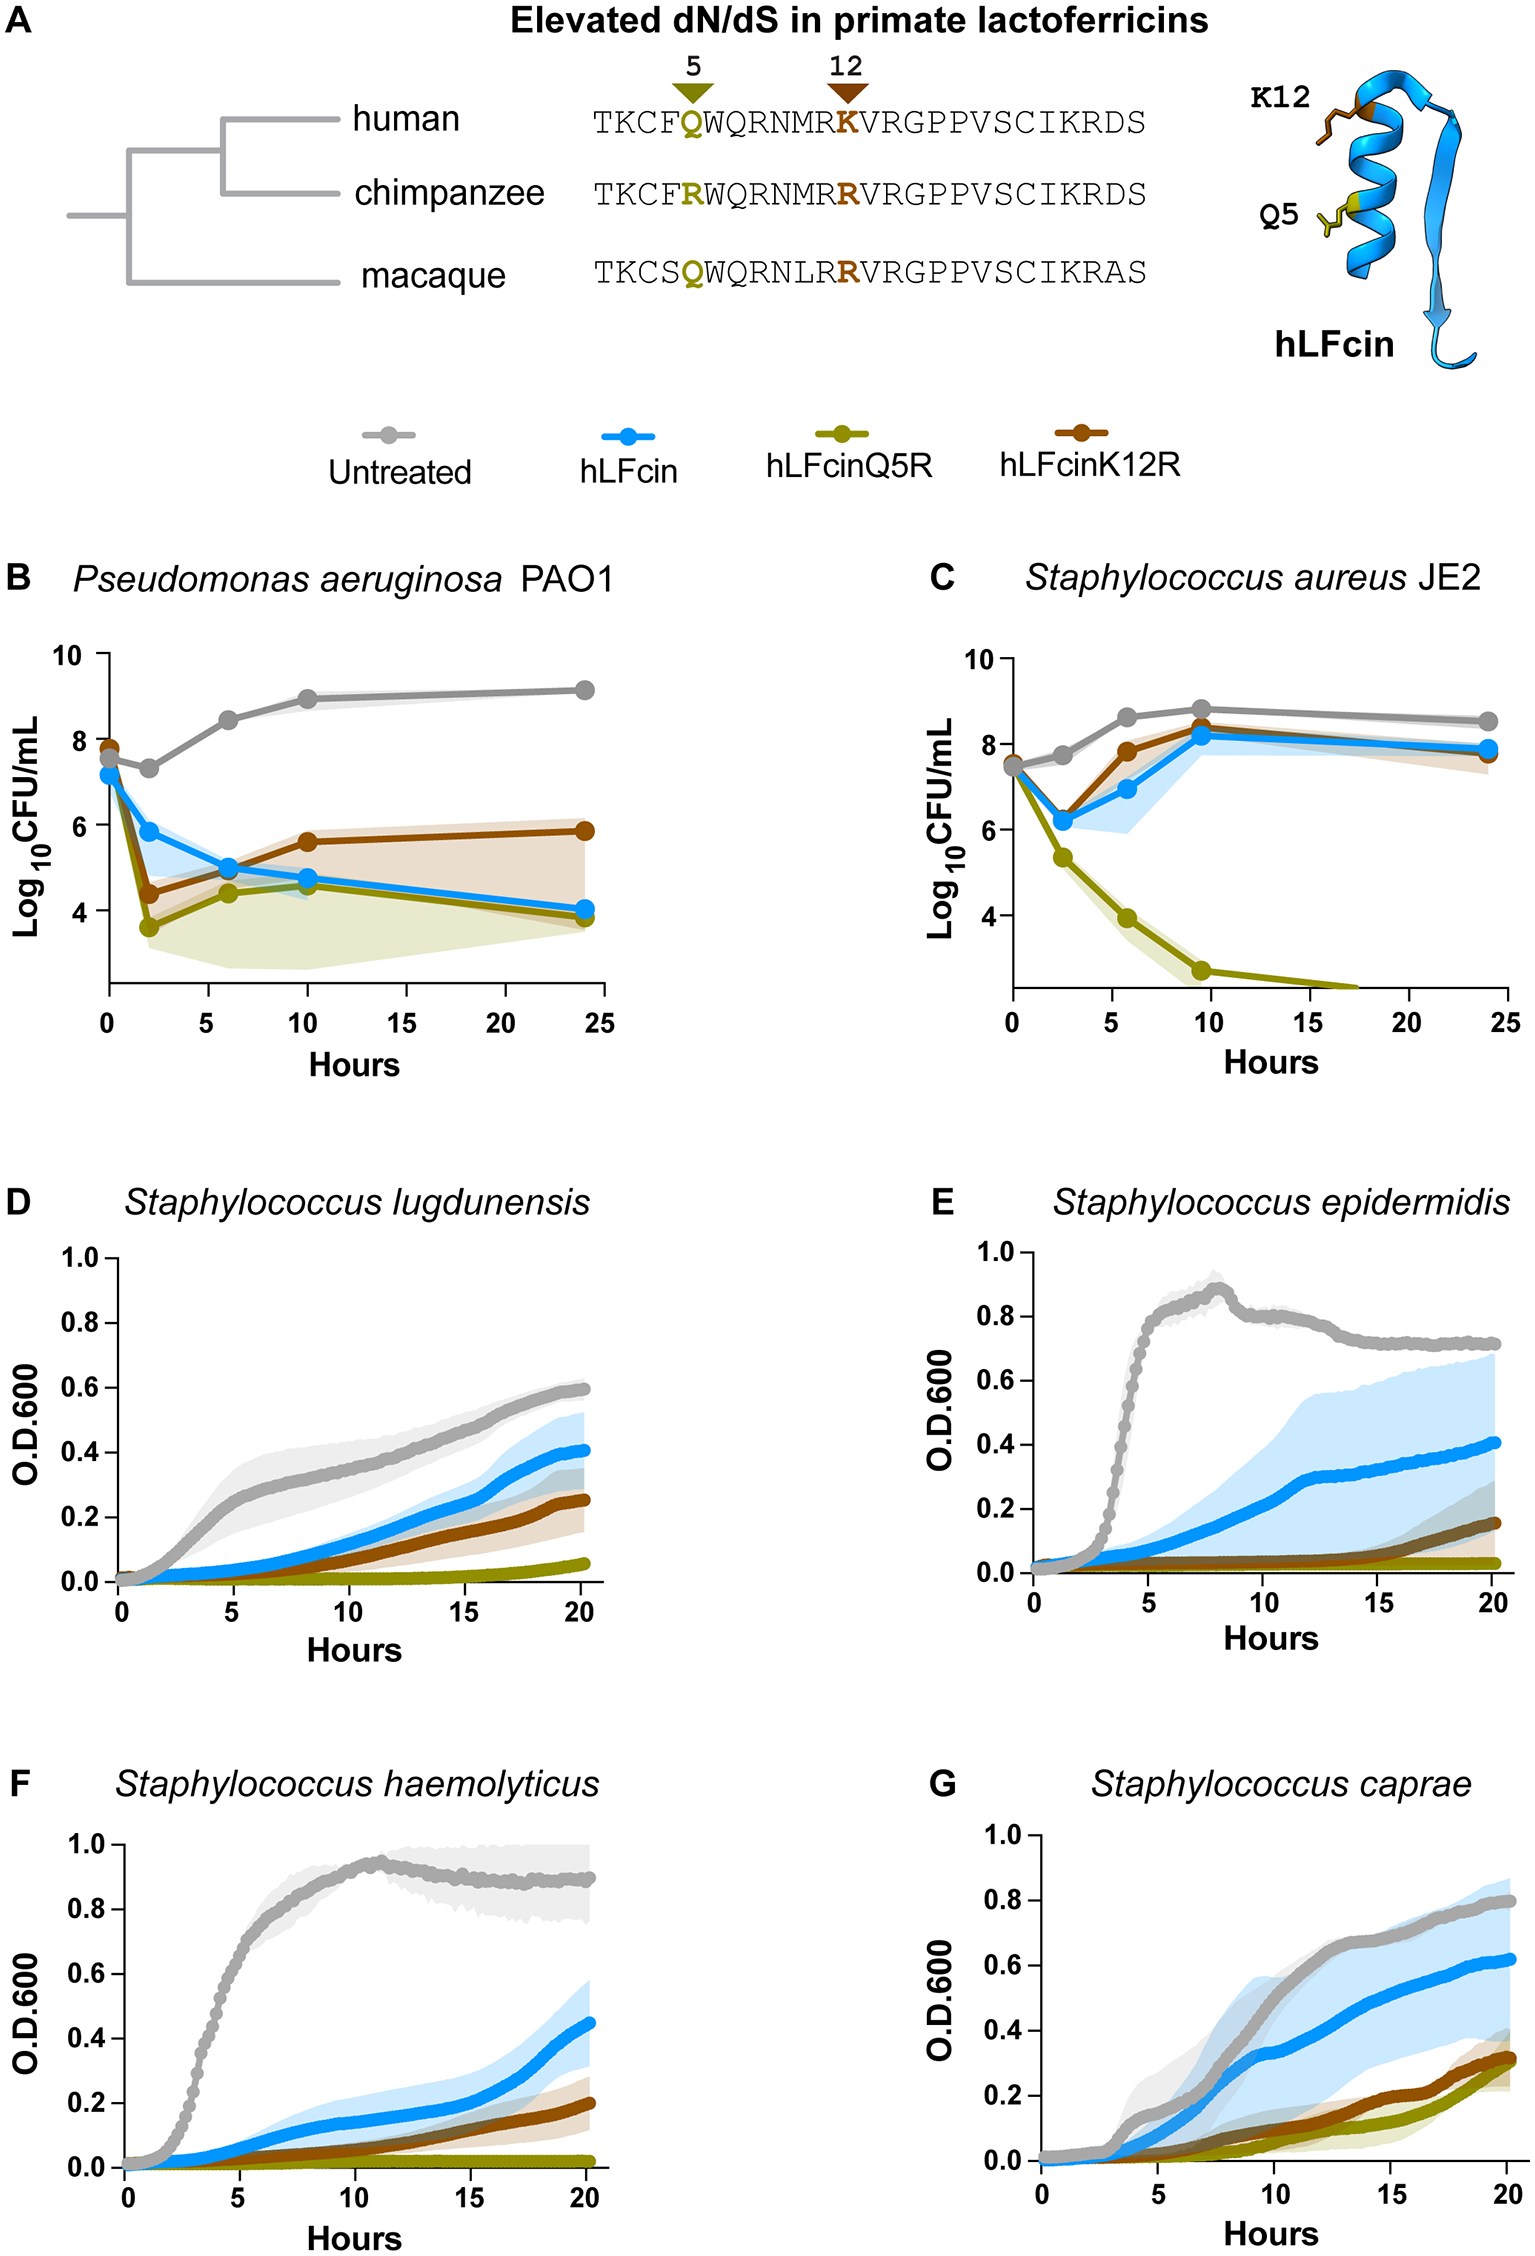
Чтобы понять причину этой слабости, авторы проанализировали эволюцию лактоферрина у приматов. Они рассчитали показатель dN/dS — отношение частоты мутаций, меняющих структуру белка, к частоте нейтральных мутаций. Высокое значение этого параметра указывает на действие естественного отбора: ген целенаправленно менялся под внешним давлением.
Выяснилось, что активный отбор шел в пятой позиции лактоферрицина. У всех человекообразных обезьян (шимпанзе, горилл, орангутанов) на пятом месте находится положительно заряженный аргинин, рядом с которым расположен гидрофобный триптофан в шестой позиции.
Но в эволюционной ветви человека произошла мутация: аргинин заменился на нейтральный глутамин.
Исследователи синтезировали вариант человеческого лактоферрицина с восстановленной предковой аминокислотой — hLFcinQ5R. Результаты подтвердили гипотезу: добавление аргинина вернуло пептиду способность эффективно уничтожать грамположительные патогены.
Модифицированный пептид протестировали на нескольких видах стафилококков: Staphylococcus aureus (возбудитель внутрибольничных инфекций), Staphylococcus epidermidis (основная причина заражения медицинских имплантов), Staphylococcus lugdunensis и Staphylococcus caprae. Во всех случаях пептид с заменой Q5R подавлял рост бактерий существенно сильнее, чем стандартный человеческий пептид.
Причины снижения бактерицидности у человека
Зачем организму человека понадобилось снижать эффективность собственной защиты? В эволюционной биологии любое функциональное изменение связано с компромиссами между пользой и сопутствующими затратами.
Первой гипотезой была токсичность. Слишком активный антимикробный пептид мог повреждать не только бактерии, но и собственные клетки организма. Исследователи провели тест на гемолиз: смешали эритроциты крупного рогатого скота с высокими концентрациями предковых, коровьих и человеческих пептидов (до одного миллиграмма на миллилитр). Ни один из вариантов лактоферрицина не разрушил эритроциты. Токсичность для собственных тканей была исключена.
Биологи выделили три другие вероятные причины, по которым отбор закрепил ослабление пептида у человека:
- Сохранение микробиоты. Лактоферрин постоянно присутствует в больших количествах в грудном молоке и на слизистых оболочках. У новорожденных детей в кишечнике формируется сообщество полезных микроорганизмов, включая грамположительные бактерии (например, бифидобактерии). Избыточно агрессивный пептид уничтожал бы нормальную микробиоту ребенка на этапе ее первичного заселения.
- Ограничения ферментативного расщепления. Чтобы лактоферрицин отделился от основного белка, ферменты желудочного сока (пепсин) или поджелудочной железы (трипсин и химотрипсин) должны разрезать белковую цепь в строго определенных местах. Мутации в N-концевой области могли повлиять на скорость и правильность этого расщепления.
- Стабильность связывания железа. N-концевой домен лактоферрина структурно связан с центром, удерживающим ион железа. Накопление слишком большого числа заряженных аминокислот могло вызвать конформационные изменения в белке и нарушить его исходную способность удерживать металл.
Итоги и прикладное значение
Проведенная работа раскрывает конкретную схему того, как в живой природе возникают новые молекулярные механизмы:
- Происходит случайное удвоение гена транспортного белка.
- На внешней поверхности одной из копий постепенно накапливаются положительно заряженные и гидрофобные аминокислоты.
- Достижение критической плотности заряда (в данном случае — появление одного аргинина в восьмой позиции) переводит пептид в новое функциональное состояние: от слабого взаимодействия с мембраной к ее необратимому разрушению.
- В дальнейшем естественный отбор регулирует силу пептида в зависимости от экологической ниши вида, иногда намеренно снижая его летальность для сохранения баланса с внутренней микрофлорой.
Исследование имеет прямое значение для современной фармакологии. Из-за широкого применения классических антибиотиков патогенные бактерии выработали к ним множественную устойчивость. В отличие от антибиотиков, которые обычно блокируют конкретные бактериальные ферменты, антимикробные пептиды разрушают физическую структуру мембраны. Бактериям крайне трудно выработать устойчивость к такому механизму, поскольку для этого требуется полностью перестроить состав и заряд липидного слоя клетки.
Реконструкция предковых белков позволяет находить высокоактивные природные последовательности, которые уже были протестированы естественным отбором на миллионах поколений животных. Возвращение единичных предковых мутаций в человеческие пептиды (таких как замена Q5R) дает возможность создавать направленные противомикробные препараты для борьбы со стафилококковыми инфекциями без риска повреждения клеток самого пациента.
Источник: PLOS Biology
1 комментарий
Добавить комментарий