Жизнь началась в каплях: как один лишний атом в РНК создал первые клетки на Земле
Внутри живой клетки непрерывно происходят процессы разделения жидких фаз. Белки и нуклеиновые кислоты способны самопроизвольно концентрироваться в растворе, формируя микроскопические капли без использования липидных мембран. Эти структуры, называемые биомолекулярными конденсатами, обеспечивают протекание ключевых биохимических реакций: от считывания генетической информации до сборки клеточных органелл.
Долгое время физические механизмы фазового расслоения изучали преимущественно на примере белков. Однако нуклеиновые кислоты — РНК и ДНК — не просто присутствуют в этих каплях, а во многих случаях определяют их внутреннюю структуру и физические свойства.
С химической точки зрения рибонуклеиновая кислота (РНК) и одноцепочечная дезоксирибонуклеиновая кислота (ssDNA) почти неотличимы. Разница заключается в строении углеводного кольца: у рибозы во втором положении находится гидроксильная группа (2'-OH), а у дезоксирибозы — атом водорода (2'-H). Разница в молекулярной массе составляет всего 16 дальтон на каждое звено полимерной цепи.
Группа биофизиков и инженеров из Принстонского университета, Университета Буффало и Рочестерского технологического института провела масштабное исследование, результаты которого опубликованы в журнале Nature Communications. Авторы доказали, что наличие этой единственной 2'-OH группы полностью меняет термодинамику фазового поведения нуклеиновых кислот, определяя их способность формировать жидкие капли, переходить в состояние нерастворимого геля или сохранять подвижность.
Содержание
Термодинамика десольватации и нарушение полимерных правил
Фазовое поведение полимеров в растворах обычно подчиняется одному из двух сценариев:
- Фазовое расслоение с верхней критической температурой растворения (UCST): система разделяется на фазы при охлаждении, поскольку при низких температурах преобладают силы межмолекулярного притяжения (энтальпийный фактор). Большинство исследованных белков ведут себя именно так.
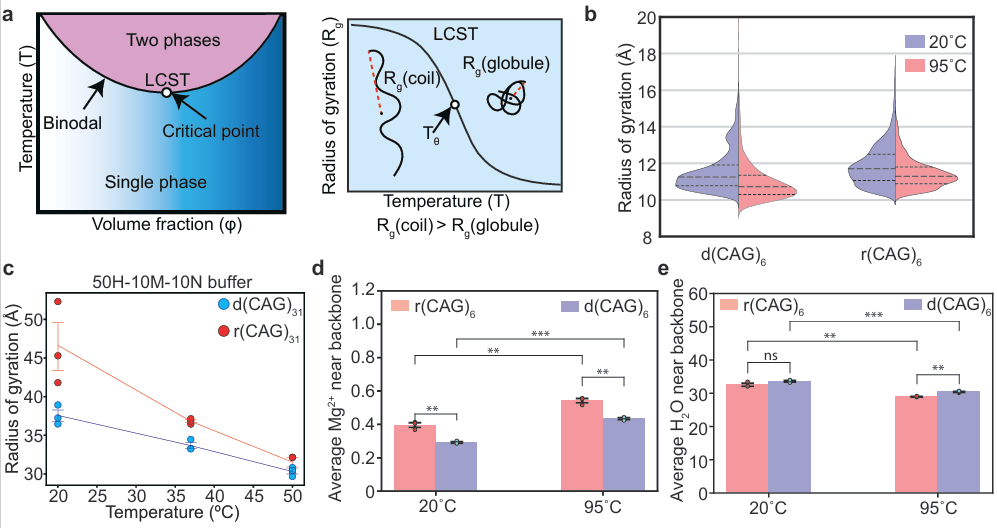
- Фазовое расслоение с нижней критической температурой растворения (LCST): система однородна при низкой температуре, но разделяется на две фазы при нагревании. Этот процесс контролируется энтропийным фактором.
Нуклеиновые кислоты в присутствии двухвалентных катионов (например, магния Mg²⁺) демонстрируют именно LCST-поведение. При повышении температуры раствор, содержащий РНК или ДНК, разделяется на две фазы: разбавленную и сверхконцентрированную.
В биофизике неупорядоченных белков долгое время считалось аксиомой: чем сильнее отдельная молекула сворачивается в плотный клубок в разбавленном растворе, тем выше ее склонность к межмолекулярному фазовому расслоению при росте концентрации. Компактность отдельной цепи служила прямым маркером того, насколько прочно молекулы этого типа будут связываться друг с другом.
Эксперименты с применением малоуглового рентгеновского рассеяния (SAXS) и полноатомного молекулярно-динамического моделирования показали, что для нуклеиновых кислот эта закономерность не работает.
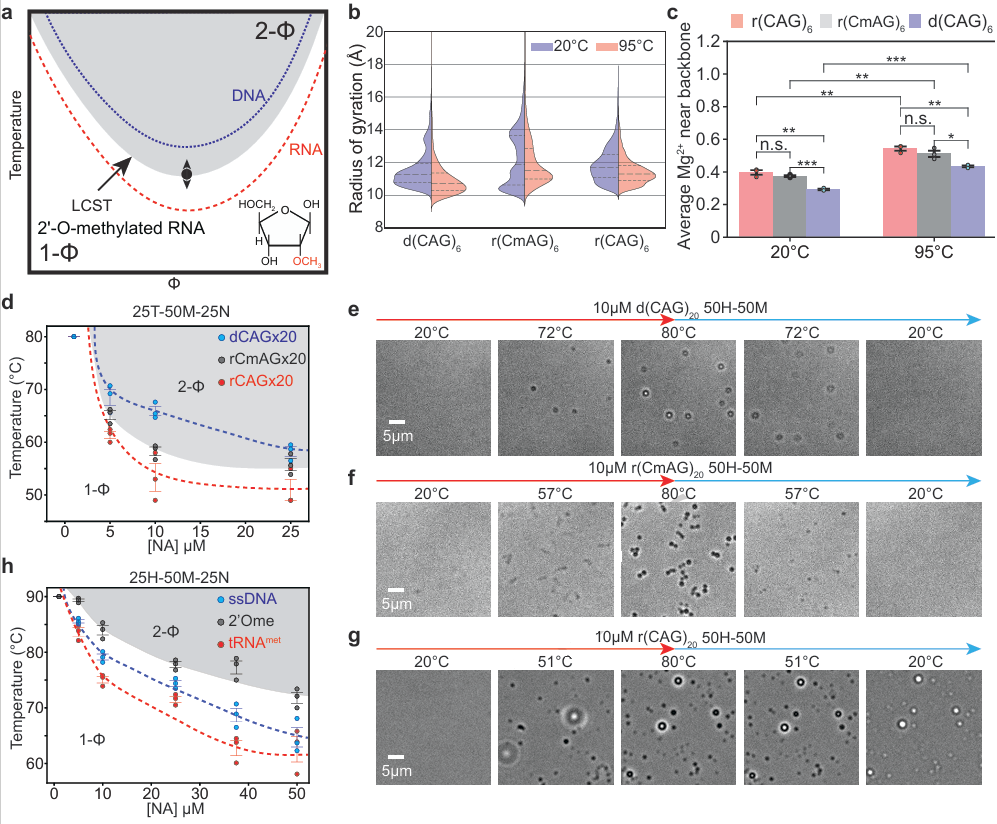
Измерения радиуса гирации (Rg) — параметра, описывающего пространственный размер полимерного клубка, — показали, что одноцепочечная ДНК в растворе свернута значительно компактнее, чем молекула РНК с точно такой же последовательностью оснований. Согласно белковым моделям, ДНК должна была бы легче выпадать в конденсат. На практике наблюдается обратная картина: РНК начинает формировать капли при температурах на 10-15 °C ниже, чем ДНК при тех же концентрациях солей.
Причина этого явления кроется во взаимодействии молекул с растворителем — водой:
- Молекулы ДНК удерживают вокруг своего остова прочный слой гидратной воды, который препятствует прямому контакту между соседними цепями.
- Молекулы РНК из-за наличия 2'-OH группы и другой конформации рибозного кольца удерживают воду менее прочно.
При нагревании РНК легко сбрасывает молекулы воды из своего первого сольватного слоя. Высвобождение сотен молекул воды в свободный объем приводит к резкому росту энтропии всей системы. Этот энтропийный выигрыш перекрывает энергетические затраты на разделение фаз, обеспечивая РНК высокую склонность к конденсации.
Механизмы связывания ионов и жесткость цепи
Для преодоления электростатического отталкивания отрицательно заряженных фосфатных групп нуклеиновым кислотам требуются положительно заряженные ионы. В клетке эту функцию выполняют двухвалентные катионы магния (Mg²⁺) и кальция (Ca²⁺).
Моделирование методом молекулярной динамики выявило принципиальную разницу в том, как ионы металлов взаимодействуют с РНК и ДНК:
- В РНК: кислород гидроксильной группы 2'-OH выступает прямым координационным центром для катиона. Ион магния входит непосредственно в первый координационный слой молекулы, одновременно связывая 2'-OH группу одного нуклеотида и фосфатную группу соседней цепи. Формируется прямой межмолекулярный ионный мостик.
- В ssDNA: дезоксирибоза лишена кислорода во втором положении. Катионы магния связываются с ДНК преимущественно через промежуточные молекулы воды (во второй координационной сфере). Такие контакты термодинамически слабее и менее стабильны.
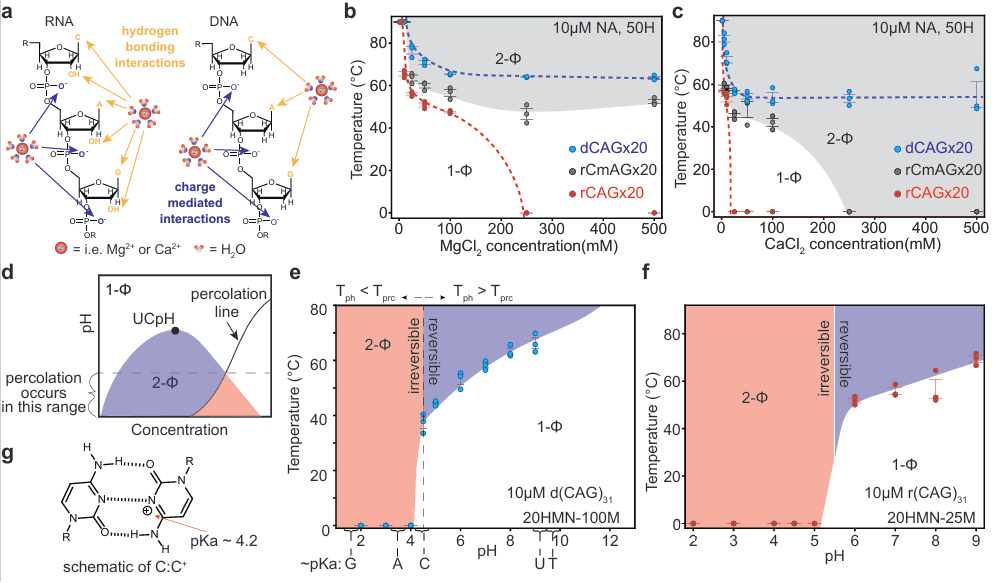
Чтобы подтвердить этот механизм, ученые заменили ионы магния на ионы кальция (Ca²⁺). Кальций обладает большим ионным радиусом и удерживает собственную водную оболочку слабее, чем магний. В результате кальций взаимодействует с 2'-OH группами РНК значительно активнее: концентрация соли, необходимая для фазового перехода РНК, снизилась почти на порядок. При этом на фазовое поведение ssDNA замена иона практически не повлияла.
Дополнительную роль играет механическая жесткость полимера. Эксперименты показали, что персистентная длина цепи (мера сопротивления изгибу) у РНК выше, чем у одноцепочечной ДНК. Теоретическое моделирование полимеров разной жесткости показало: чем жестче цепь, тем быстрее при фазовом расслоении формируется непрерывная трехмерная сетка контактов между отдельными нитями.
Фазовое расслоение против перколяции: потеря жидкостных свойств
Один из главных выводов работы — необходимость строгого разделения двух физических процессов: фазового расслоения и перколяции.
- Фазовое расслоение (ликвидус / граница бинодали): термодинамический процесс, в ходе которого гомогенный раствор делится на две жидкие фазы: капли высокой плотности и окружающий разбавленный раствор. Внутри капель молекулы сохраняют диффузионную подвижность, а сами капли могут сливаться и распадаться при изменении температуры.
- Перколяция: геометрический переход связности, при котором число межмолекулярных связей в объеме превышает критическое значение. В результате образуется непрерывная макроскопическая сеть контактов, охватывающая всю каплю.
Когда перколяция происходит внутри капли высокой плотности, наступает динамический арест. Молекулы полимера теряют возможность свободно перемещаться относительно друг друга. Капля перестает быть жидкостью и переходит в состояние твердоподобного геля или аморфного агрегата.
У одноцепочечной ДНК линии фазового расслоения и перколяции в пространстве параметров (температура, концентрация соли, концентрация полимера) четко разделены. Капли ssDNA образуются при нагреве, но не застывают: при снижении температуры они легко растворяются обратно. Это полностью обратимый процесс.
У РНК граница перколяции практически совпадает с границей фазового расслоения. Как только молекулы РНК собираются в каплю, плотность связей между жесткими цепями мгновенно превышает порог перколяции. В каплях возникает прочная сеть водородных и ионных связей. Образуется гель, который сохраняет свою структуру даже при охлаждении раствора значительно ниже исходной точки помутнения.
Исключением среди ДНК являются лишь специфические последовательности, обогащенные гуанином (G), которые способны складываться в четырехцепочечные структуры — G-квадруплексы. За счет прямого наложения плоскостей гуанинов (стэкинга) такие ДНК также могут подвергаться перколяции. Однако РНК аналогичного состава (например, теломерная некодирующая РНК TERRA) образует перколированные гели при концентрациях магния в десять раз меньших, чем человеческая теломерная ДНК.
Химическая регуляция: роль метилирования сахаров
Склонность РНК к необратимому гелеобразованию создает серьезную проблему для нормального функционирования клетки. Если бы этот процесс не контролировался, функциональные РНК-содержащие структуры в ядре и цитоплазме неизбежно застывали бы в неактивные агрегаты.
Клетка решает эту задачу с помощью ферментативной модификации нуклеотидов. Наиболее распространенная модификация сахарофосфатного остова — 2'-O-метилирование (2'-O-Me). В ходе этой реакции клеточные ферменты заменяют атом водорода гидроксильной группы на метильную группу (-OCH₃).
Авторы работы синтезировали РНК-последовательности, в которых часть аденинов несла 2'-O-метильную группу, а также протестировали природную транспортную РНК археи Sulfolobus acidocaldarius, содержащую четыре естественных сайта метилирования.
Результаты показали, что метилирование 2'-OH группы радикально меняет фазовую диаграмму:
- Метильная группа блокирует образование водородных связей с участием протона 2'-OH.
- Пространственный объем группы -CH₃ препятствует входу катионов магния в первый координационный слой рибозы.
- Изменяется преимущественная конформация сахарного кольца.
В результате 2'-O-метилированная РНК начинает вести себя как ДНК: температура ее фазового расслоения повышается, а главное — исчезает динамический арест. Капли метилированной РНК остаются жидкими и полностью растворяются при охлаждении.
Этот механизм напрямую задействован в биогенезе рибосом внутри ядрышка — крупнейшего безмембранного конденсата клетки. В ядрышке синтезируются и собираются предшественники рибосомной РНК (пре-рРНК). В процессе созревания молекулы рРНК перемещаются через несколько фазовых зон ядрышка: от плотного фибриллярного компонента к гранулярному.
Это перемещение строго совпадает с нарастанием числа 2'-O-метильных меток, которые наносят специальные ферменты. Метилирование снижает склонность рРНК к неконтролируемой перколяции и межмолекулярному спутыванию, поддерживая необходимую текучесть конденсата и обеспечивая последовательный выход готовых рибосомных субъединиц из ядрышка в цитоплазму.
Роль кислотности среды и связь с патологиями
Фазовое состояние нуклеиновых кислот чувствительно к изменению кислотности (pH) среды. В диапазоне физиологических значений pH ионизации подвергается азотистое основание цитозин (pKa ≈ 4.2).
При снижении pH цитозин присоединяет протон (H⁺), превращаясь в положительно заряженный C⁺. Протонированный цитозин образует прочную пару с нейтральным цитозином (C:C⁺), в результате чего возникают четырехцепочечные структуры — i-мотивы.
Эксперименты с повторами r(CAG) и гомополимером poly(rC) показали: при снижении pH от 7.5 до 5.5 происходит резкий скачок. Капли РНК, которые при нейтральном pH вели себя стабильно, при подкислении раствора мгновенно переходят в необратимое перколированное состояние. Для одноцепочечной ДНК такой переход тоже возможен, но требует более глубокого закисления (pH ниже 4.5).
Этот механизм объясняет поведение клеток при энергетическом голодании. При падении уровня АТФ в цитоплазме дрожжевых клеток происходит естественное закисление среды. Это провоцирует перколяцию клеточных РНК и переход всей цитоплазмы в плотное застеклованное состояние, что останавливает метаболизм и переводит клетку в состояние покоя (дормантность) до восстановления условий.
Физика перколяции РНК также лежит в основе группы тяжелых наследственных заболеваний — болезней экспансии нуклеотидных повторов:
- Болезнь Гентингтона: аномальное удлинение триплетов CAG в гене хантингтина.
- Миотоническая дистрофия: экспансия повторов CUG.
- Боковой амиотрофический склероз и фронтотемпоральная деменция (ген C9ORF72): экспансия гексануклеотидов GGGGCC.
Транскрипты, содержащие десятки и сотни таких повторов, обладают экстремально низким порогом перколяции. Попадая в ядерные конденсаты, эти РНК формируют плотные нерастворимые сети, которые блокируют диффузию белков. В этих гелевых структурах захватываются критически важные регуляторные факторы клетки, что приводит к гибели нейронов.
Значение для науки и биотехнологий
Проведенное исследование переводит описание нуклеиновых кислот из плоскости классической молекулярной биологии в плоскость физики полимеров и коллоидных систем:
- Термодинамическая роль одного атома: разница в один атом кислорода (гидроксил против водорода у второго атома углерода сахара) радикально меняет энергетику взаимодействия макромолекулы с водой и двухвалентными ионами, определяя устойчивость фазовых границ.
- Отказ от белковых аналогий: показано, что принципы ассоциации неупорядоченных белков неприменимы к полинуклеотидам. Компактность отдельной цепи нуклеиновой кислоты не означает ее склонности к конденсации, поскольку процесс определяется энтропией десольватации и локальной жесткостью остова.
- Химическое программирование материалов: возможность переключать фазовое состояние нуклеиновых кислот с помощью точечных химических модификаций (таких как 2'-O-Me), изменения ионного состава или модуляции pH позволяет разрабатывать управляемые функциональные материалы.
Понимание физических законов, управляющих перколяцией и фазовым расслоением РНК, создает базу для создания искусственных биоконденсатов, синтетических бесклеточных реакторов и новых классов терапевтических препаратов, способных предотвращать патологическое гелеобразование нуклеиновых кислот в клетках человека.
Источник: Nature Communications
0 комментариев
Добавить комментарий