Учёные вырастили кору мозга в лаборатории, но клетки внутри неё забыли, в каком порядке развиваться
В течение последнего десятилетия трехмерные органоиды коры головного мозга оставались одной из самых перспективных моделей в нейробиологии. Эти структуры выращивают в лабораториях из эмбриональных или индуцированных плюрипотентных стволовых клеток. В питательной среде клетки способны к самоорганизации: они образуют объемные тела, формируют зоны деления и производят основные типы нейронов и вспомогательных клеток коры.
Долгое время в биомедицине доминировало представление, что генетической программы стволовых клеток достаточно для автономного воспроизведения всех этапов развития мозга. Предполагалось, что клетки в чашке Петри проходят те же стадии деления и созревания с теми же временными интервалами, что и клетки внутри живого эмбриона.
Однако группа ученых из австрийского Института науки и технологий (ISTA) под руководством профессора Саймона Хиппенмейера доказала, что это представление ошибочно. Исследование, опубликованное в журнале Nature, показало: на уровне индивидуальных клеточных линий в органоидах происходит фундаментальный сбой хронологии развития. Клетки-предшественники теряют строгий порядок деления, производят неполный набор нейронов и демонстрируют высокий уровень случайных отклонений.
Как формируется кора головного мозга в живом организме
Все возбуждающие нейроны и клетки макроглии коры происходят от одного типа стволовых клеток — радиальных глиальных предшественников (РГП). В эмбрионе мыши их работа подчинена строгой линейной последовательности, состоящей из трех последовательных этапов.
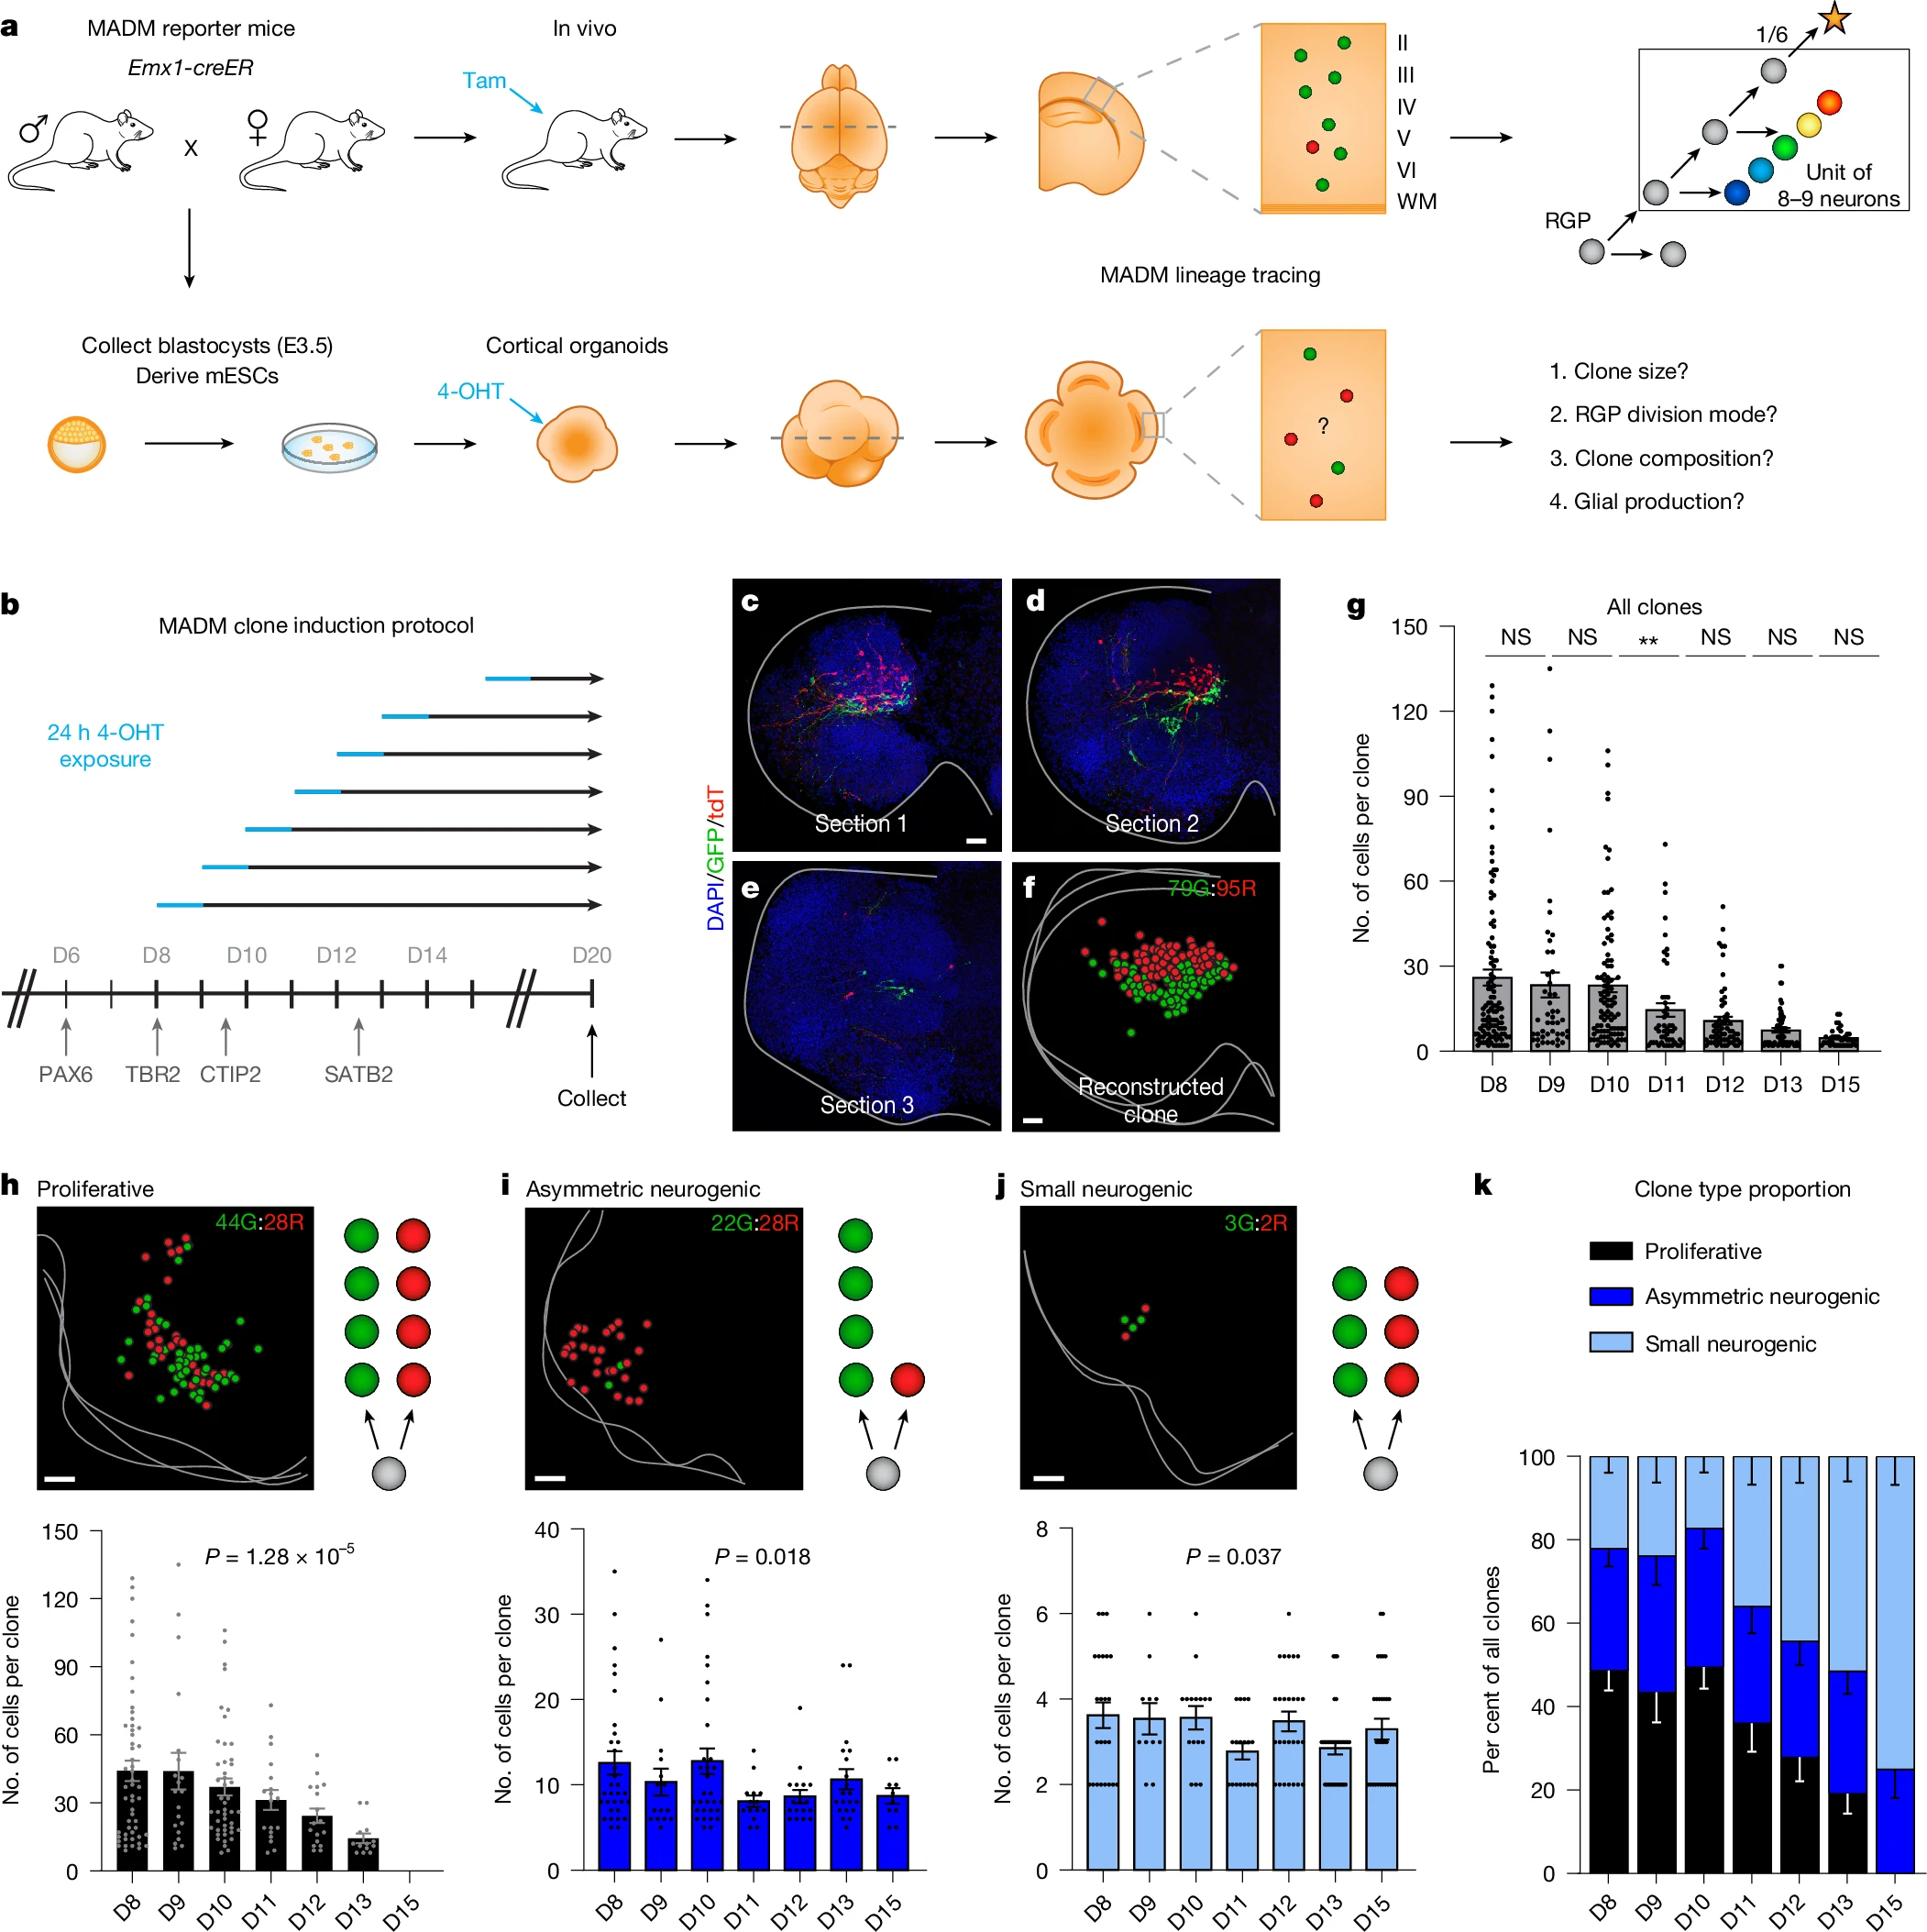
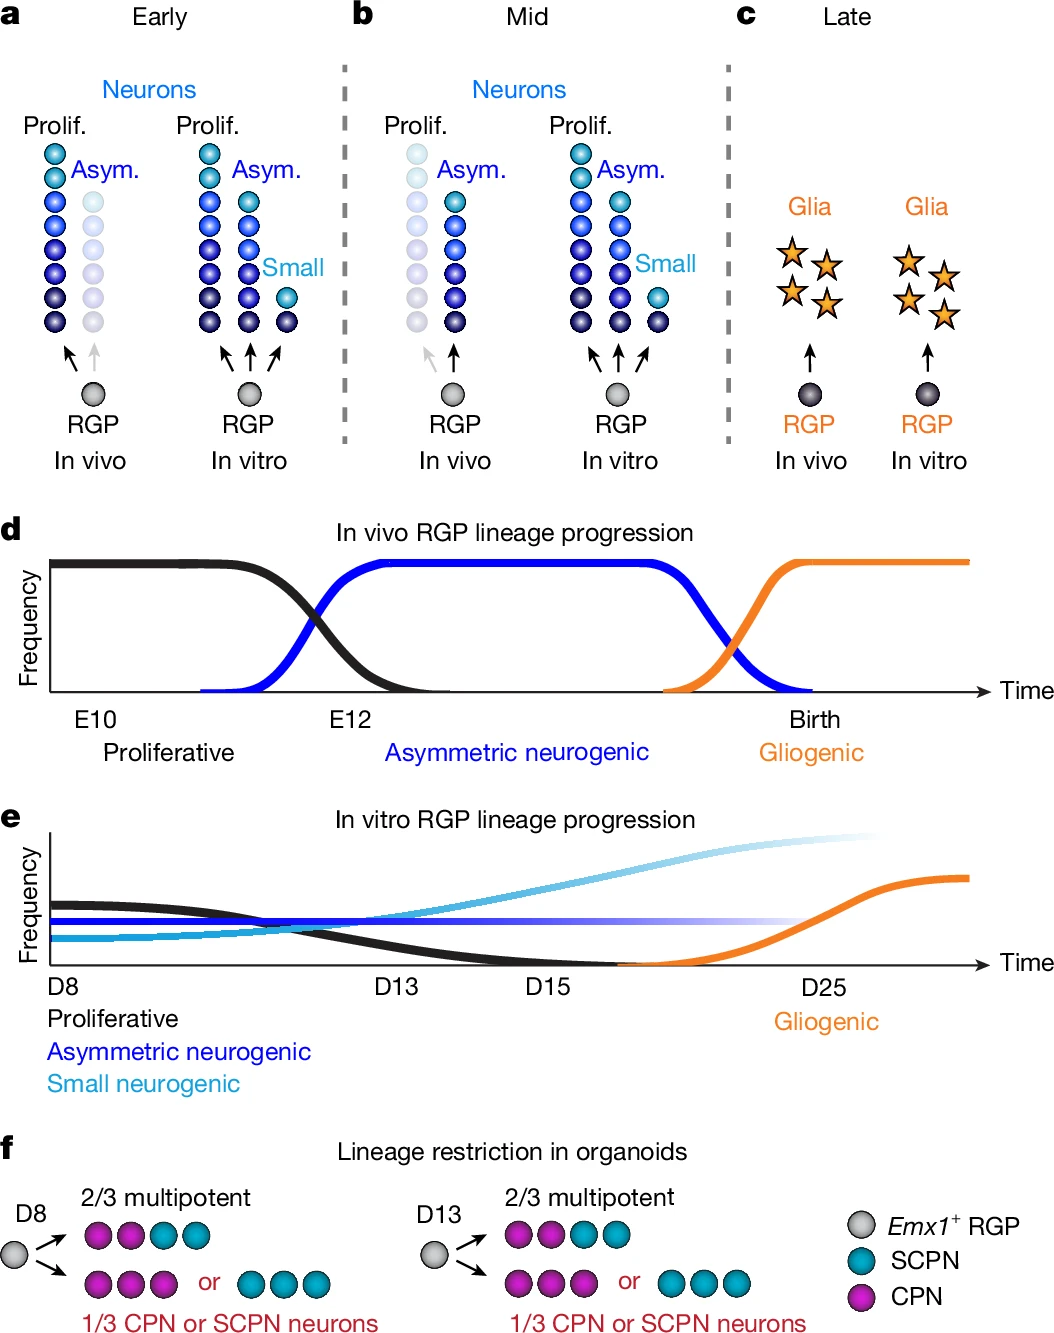
На первом этапе, который у мышей приходится на 10-й день эмбрионального развития (стадия E10), клетки делятся исключительно симметрично. Каждая стволовая клетка при делении дает две такие же стволовые клетки. На этой стадии 96,7% всех клеток заняты только увеличением своего общего числа. Нейроны на данном этапе не образуются.
На втором этапе (начиная со стадии E12) клетки меняют тип деления на асимметричный. Теперь при каждом делении стволовая клетка сохраняет себя и одновременно создает либо один зрелый нейрон, либо промежуточную клетку, которая разделится еще раз. За время нейрогенеза один радиальный предшественник производит строго определенное число потомков — в среднем 8-9 нейронов.
При этом критически важен порядок их появления:
- Сначала рождаются нейроны, предназначенные для глубоких слоев коры (слои 5 и 6). Они содержат специфический регуляторный белок CTIP2 и в будущем будут отправлять сигналы к спинному мозгу и подкорковым структурам.
- Позже рождаются нейроны для верхних слоев (слои 2, 3 и 4). Они содержат белок SATB2 и связывают между собой полушария и разные зоны коры.
Поскольку кора строится изнутри наружу, ранние нейроны остаются внизу, а поздние проходят сквозь них и занимают верхние позиции.
На третьем этапе, который наступает ближе к моменту рождения (стадия P1), клетки окончательно прекращают производство нейронов. Часть из них переключается на глиогенез — создание клеток микроокружения (астроцитов и олигодендроцитов).
В организме эти три фазы строго разделены во времени и практически не накладываются друг на друга.
Метод MADM: как увидеть историю деления отдельной клетки
Обычные методы молекулярного анализа не позволяют увидеть этот процесс детально. Если взять образец ткани и измерить средний уровень активности генов, исследователь получит усредненный показатель для миллионов клеток. В такой массе невозможно определить, сколько именно нейронов произвела конкретная стволовая клетка и какие типы клеток вышли из одного деления.
Чтобы преодолеть это ограничение, исследователи применили технологию MADM (Mosaic Analysis with Double Markers — мозаичный анализ с двойными маркерами).
Суть метода заключается в следующем:
- В ДНК стволовых клеток на парных хромосомах размещают разделенные фрагменты двух генов флуоресцентных белков: зеленого (GFP) и красного (tdTomato). По отдельности эти фрагменты не работают и не светятся.
- В процессе клеточного деления, на этапе удвоения ДНК, под действием введенного химического стимулятора активируется фермент Cre-рекомбиназа. Фермент меняет местами участки хромосом.
- В результате одна из дочерних клеток восстанавливает рабочий ген зеленого белка, а вторая — красного.
- Все последующие поколения этих двух клеток сохраняют соответствующий цвет.
Используя микроскоп, исследователи получают возможность посчитать точное количество потомков каждой из двух клеток-сестер, определить их тип с помощью антител к белкам CTIP2 и SATB2 и полностью восстановить геометрию всех делений одной исходной клетки.
Кроме того, ученые объединили этот подход с методом MADM-CloneSeq: с помощью стеклянной микропипетки они физически извлекали отдельные светящиеся клетки прямо из срезов ткани органоидов и проводили полное секвенирование их индивидуальной РНК.
Что происходит внутри органоидов: результаты исследования
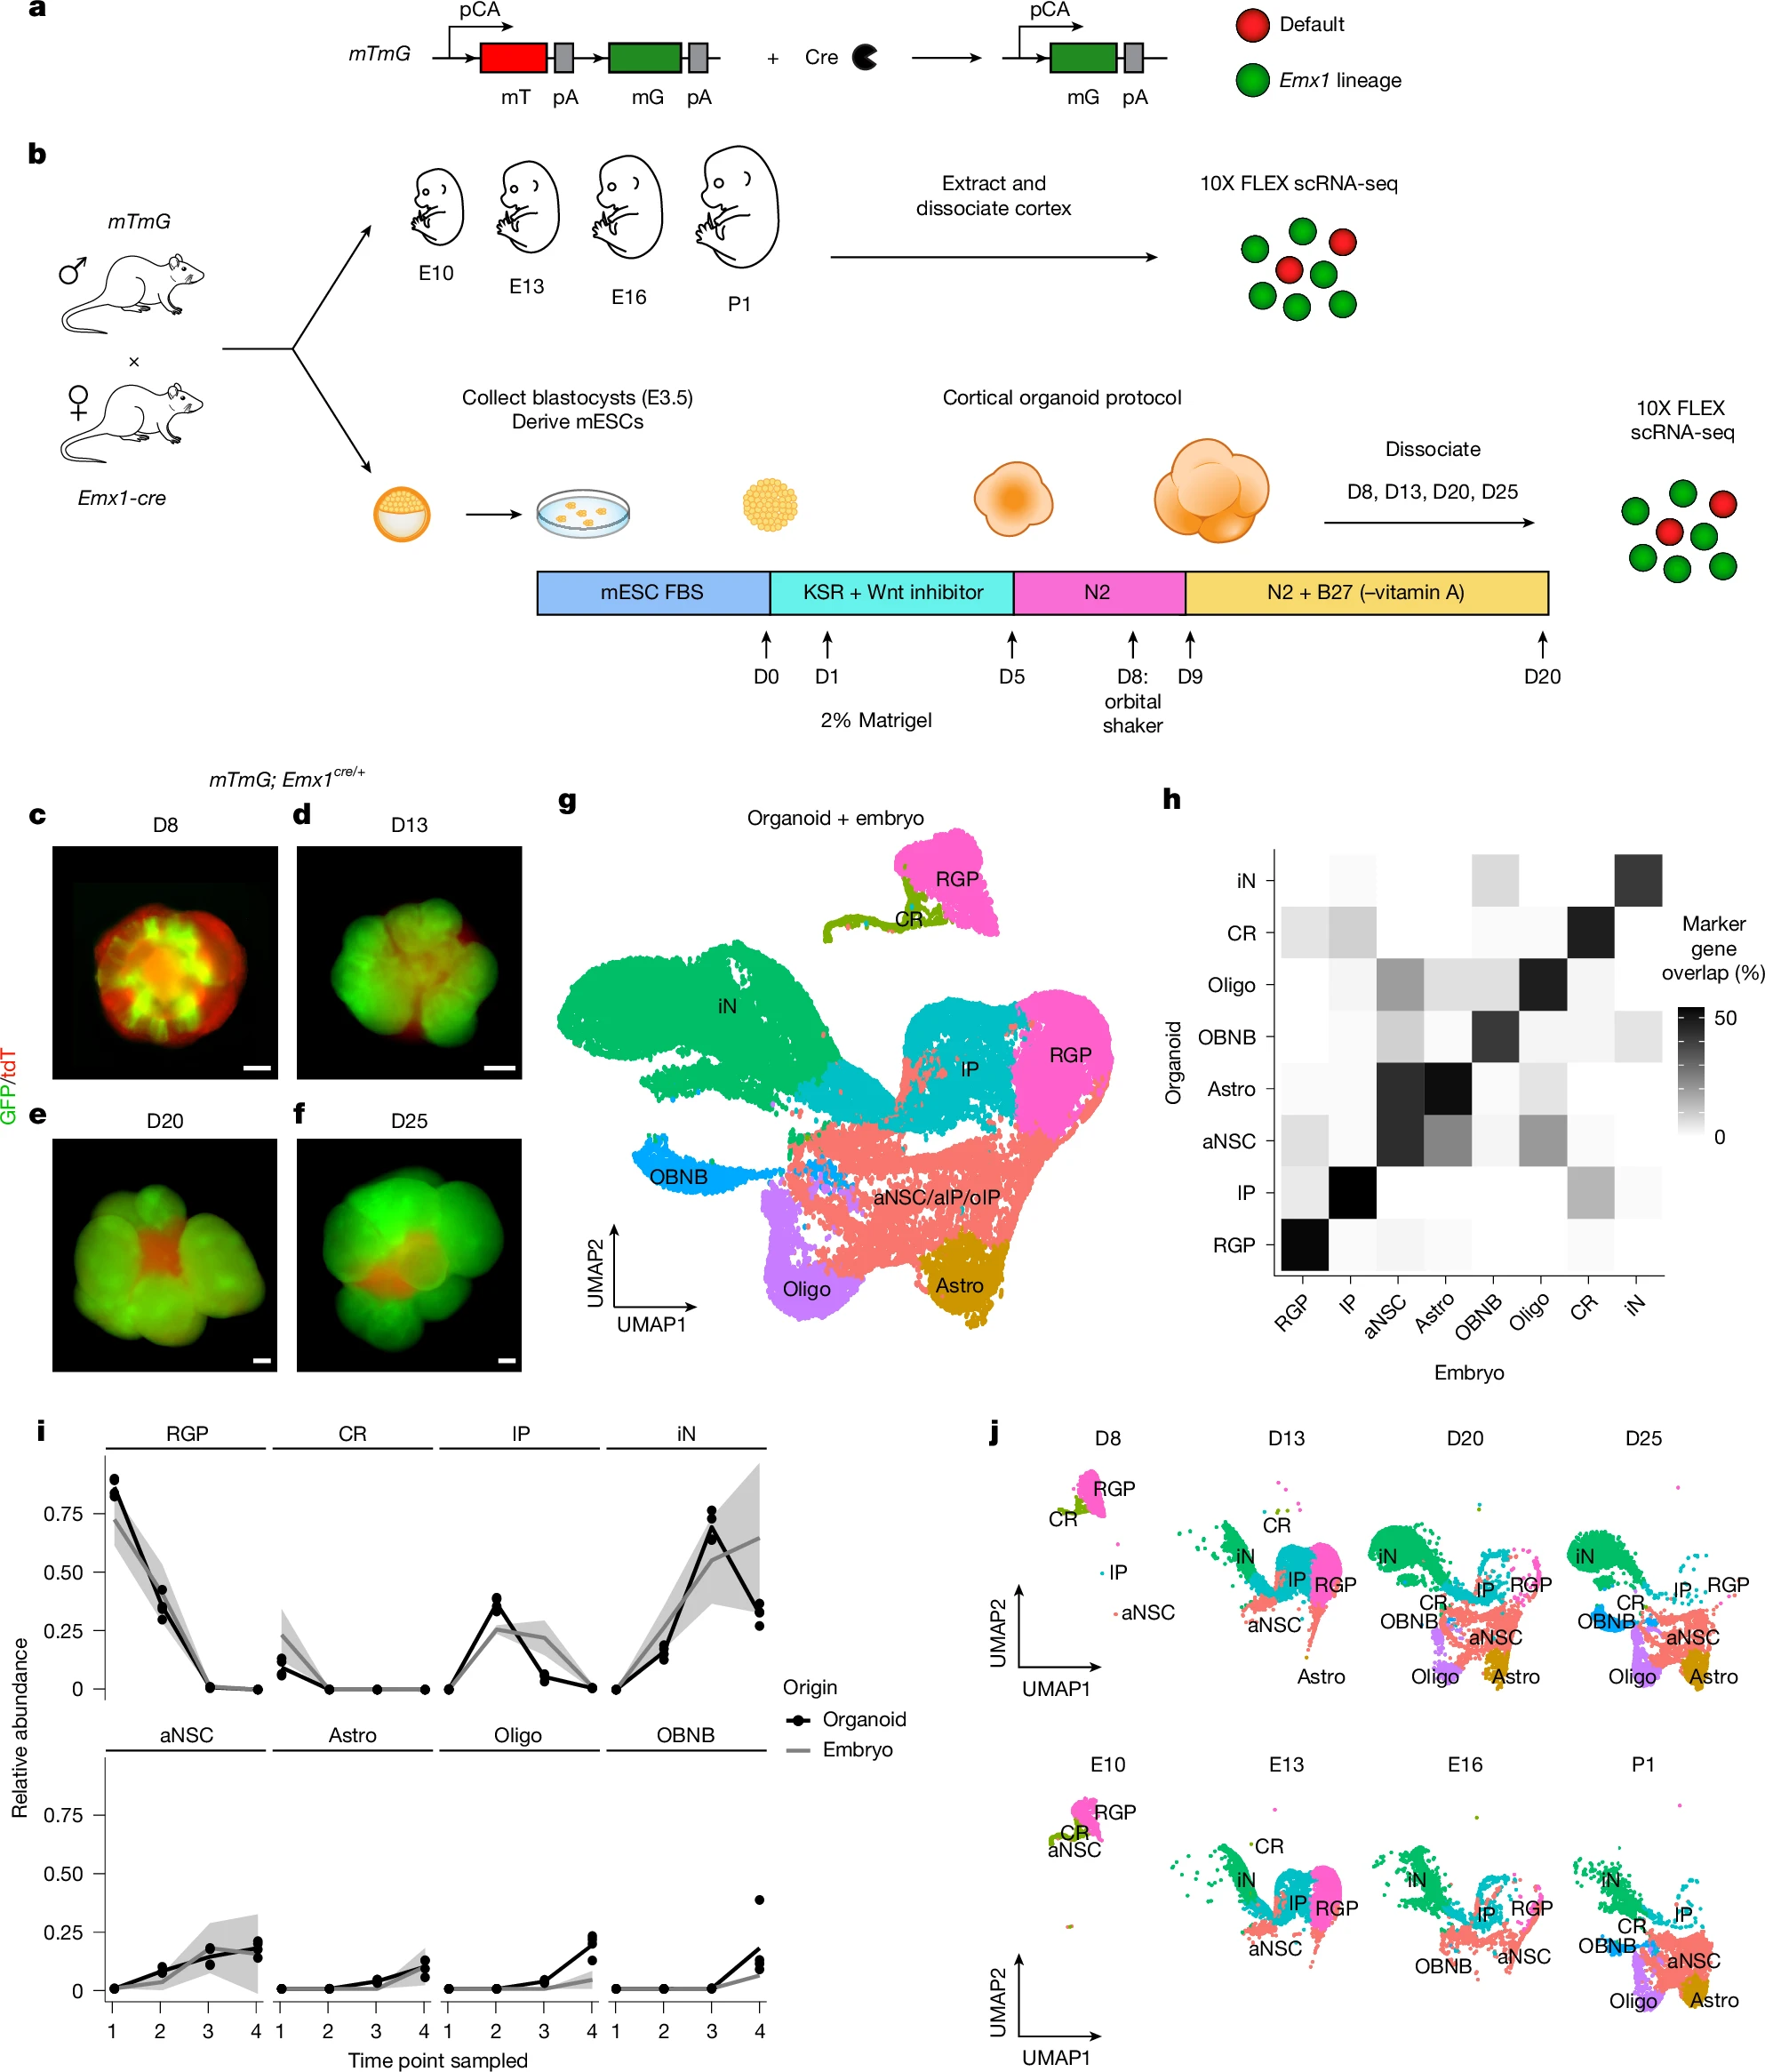
Для эксперимента исследователи вырастили органоиды коры из мышиных стволовых клеток и провели серию измерений на 8-й, 13-й, 20-й и 25-й дни развития ткани (дни D8, D13, D20 и D25). По уровню общей экспрессии генов эти временные точки точно соответствовали эмбриональным дням E10, E13, E16 и суткам после рождения P1.
Однако детальный анализ отдельных клеточных клонов показал три ключевых отклонения от нормального развития.
1. Полная потеря временного разделения делений
В эмбрионе клетки сначала только увеличивают свою численность, а затем согласованно начинают производить нейроны. В органоидах этого разделения нет.
Начиная с 8-го дня и вплоть до 15-го дня в органоидах одновременно происходят все варианты делений. Часть стволовых клеток делится симметрично, часть — асимметрично, производя нормальные цепочки нейронов, а значительная часть клеток преждевременно прекращает делиться, образуя аномальные «малые клоны» размером всего в 1-3 нейрона.
В живом мозге малых клонов на ранних этапах нет вовсе. В органоидах они составляют стабильную фракцию на всех стадиях развития.
2. Резкое падение разнообразия нейронов внутри одного клона
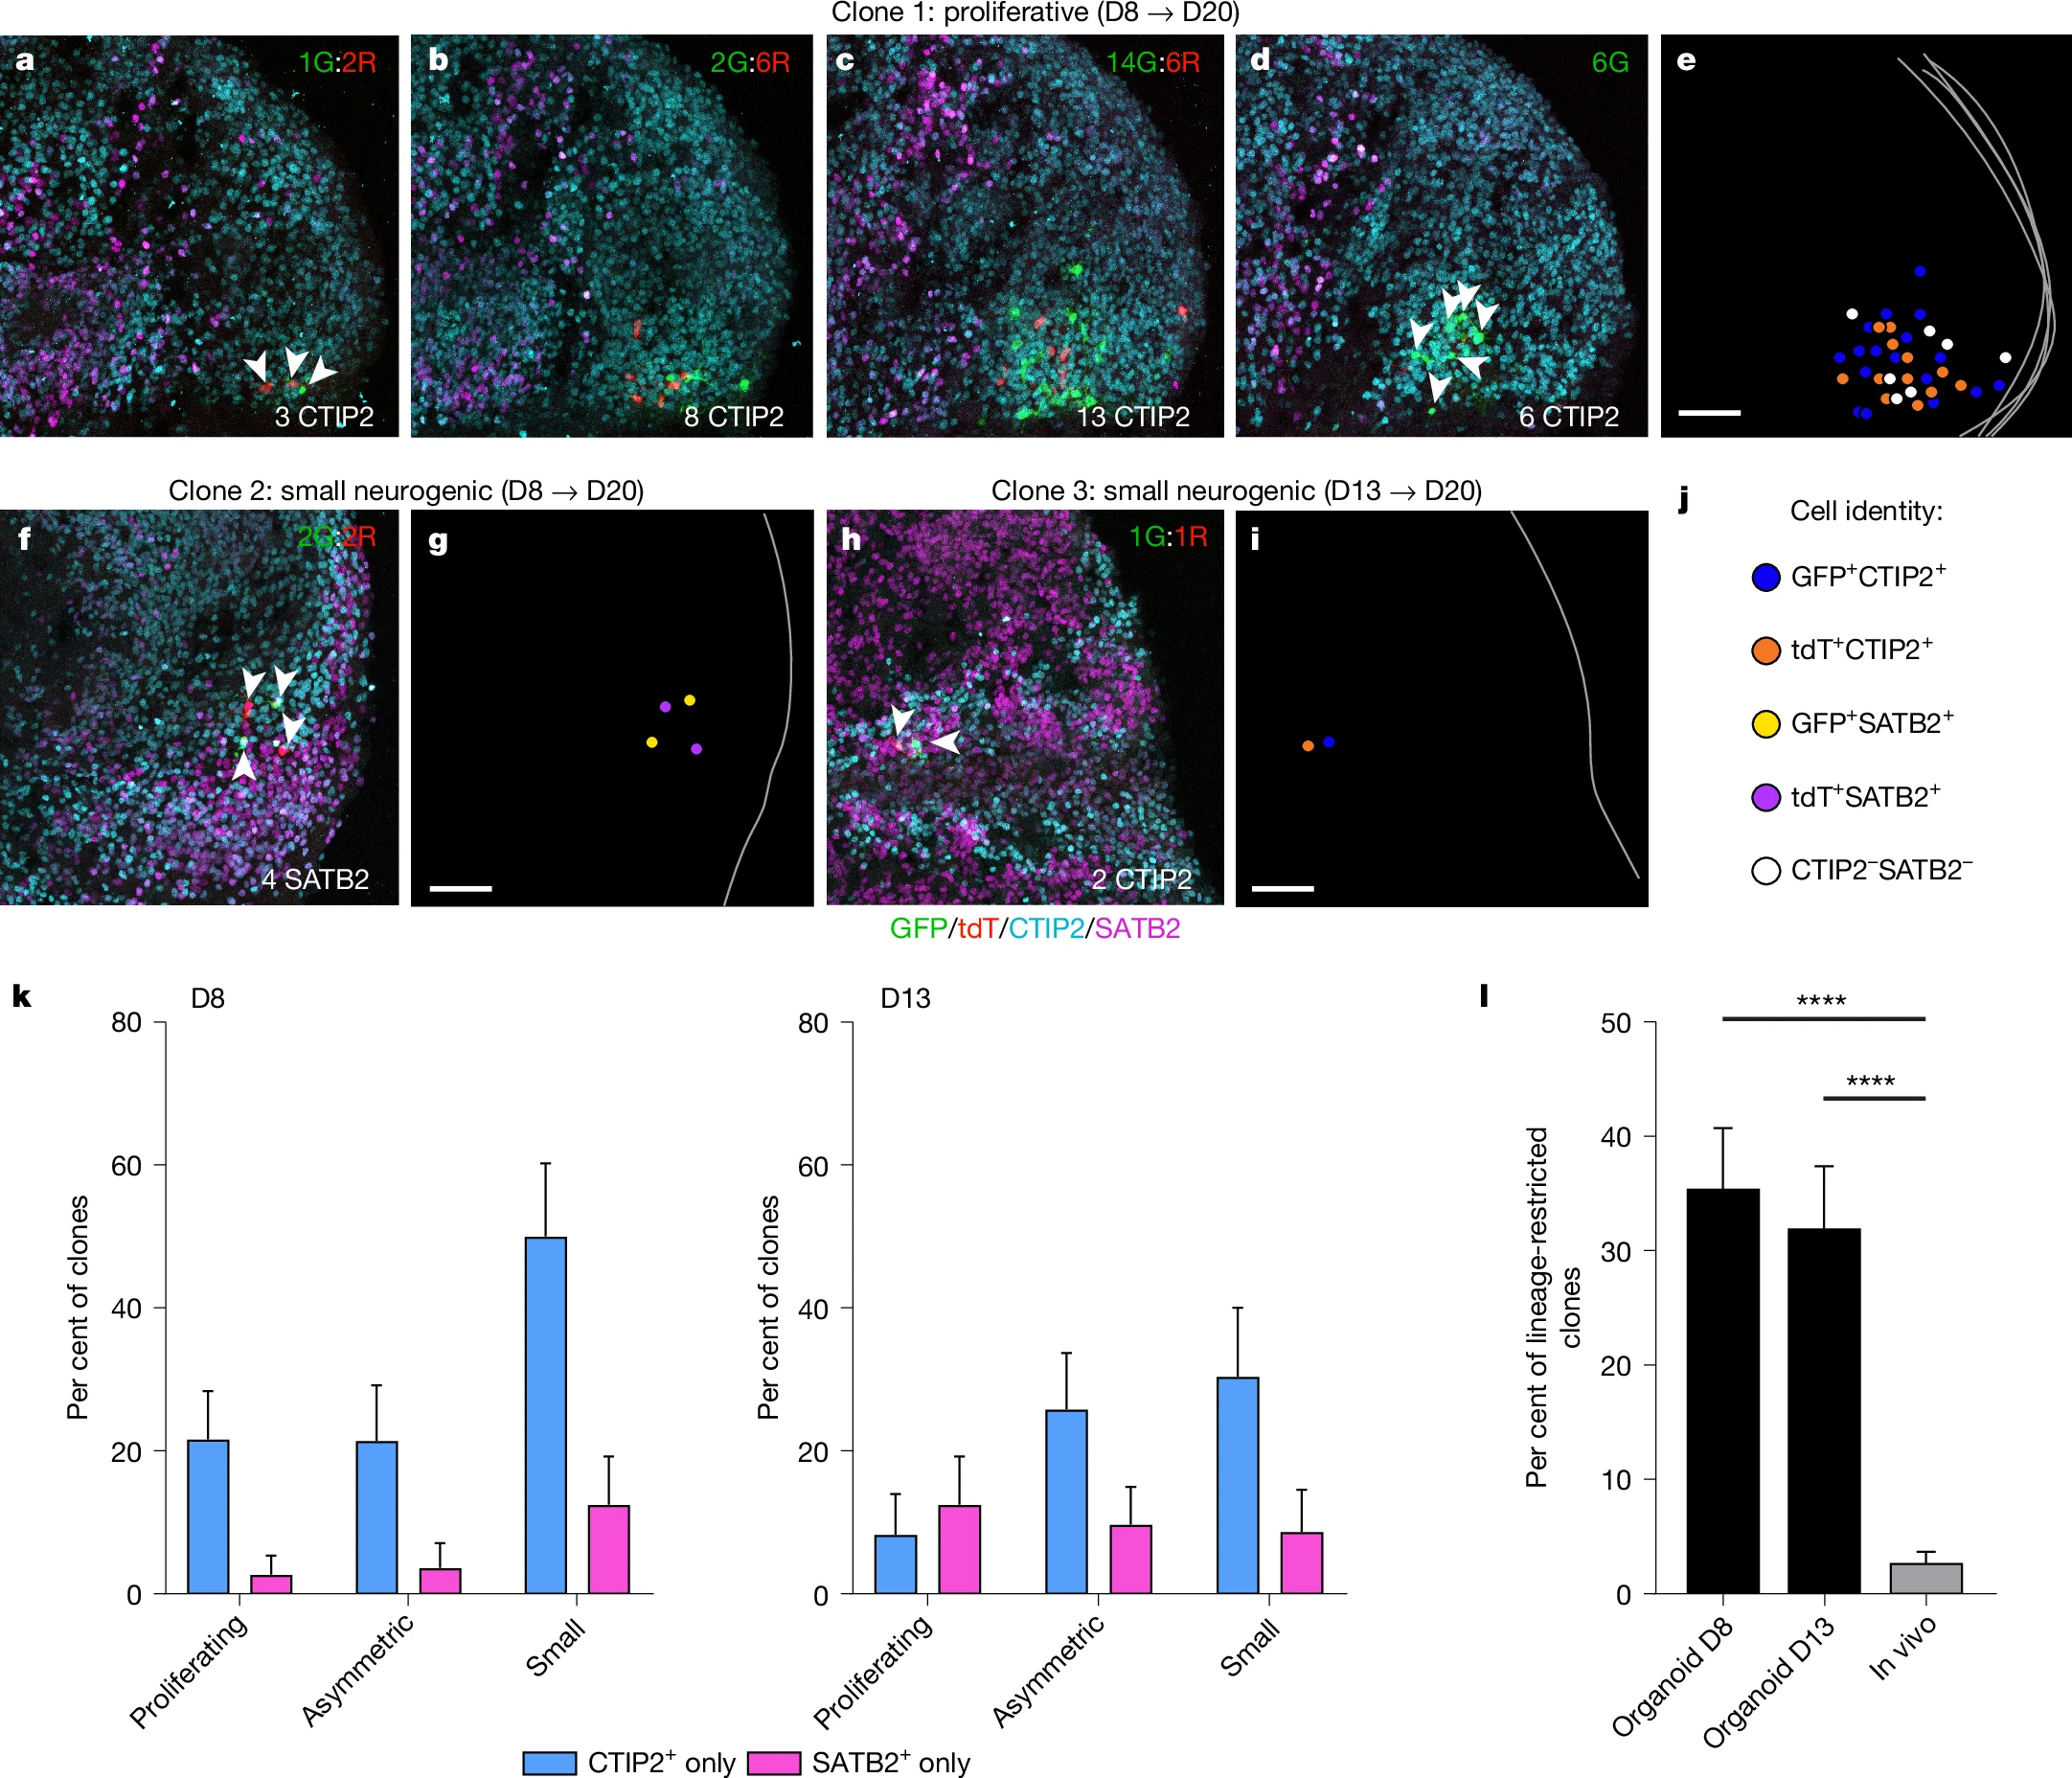
В норме один радиальный предшественник универсален: он производит сначала глубокие нейроны (CTIP2), а затем верхние нейроны (SATB2). Случаи, когда клетка производит только один тип нейронов, в эмбрионе крайне редки и составляют менее 3%.
В органоидах уровень такого ограничения составил 35,6% на ранней стадии (D8) и 32,1% на поздней стадии (D13). Более трети всех стволовых клеток оказались неспособны произвести полный набор нейронов: они генерировали либо только клетки глубоких слоев, либо сразу перескакивали к формированию верхних слоев.
3. Нарушение равенства сестринских клеток
Когда стволовая клетка в эмбрионе делится симметрично, две ее дочерние клетки получают равный потенциал и в дальнейшем производят сопоставимое количество нейронов (разница между ними редко превышает коэффициент 1,6).
В органоидах этот баланс разрушается: одна дочерняя клетка может дать начало крупному клону из десятков нейронов, тогда как вторая клетка-сестра останавливается в развитии после одного-двух делений.
Почему стандартные тесты не замечали нарушений
Авторы работы зафиксировали важный методологический парадокс.
Когда исследователи применили стандартное одноклеточное РНК-секвенирование (scRNA-seq) ко всей массе клеток органоида, алгоритмы анализа данных показали стандартную траекторию созревания. Экспрессия генов стволовых клеток и промежуточных форм выглядела нормальной. Если оценивать органоид по средним молекулярным характеристикам, он кажется полноценным эквивалентом мозга эмбриона.
Однако эти усредненные данные маскируют дефекты сборки ткани. В органоиде формируются правильные типы молекул и правильные типы зрелых нейронов, но нарушается соотношение и порядок их производства отдельными стволовыми клетками. Система создает нужные компоненты, но делает это хаотично.
Единственным процессом, который сохранил правильную последовательность в органоидах, оказалось переключение на производство глии: образование астроцитов началось строго после завершения основной фазы нейрогенеза (после 20-го дня).
Причины нарушений: отсутствие тканевого окружения
Полученные данные доказывают: внутренней генетической программы стволовой клетки недостаточно для точной сборки коры. Чтобы деления происходили вовремя и в правильном объеме, клеткам необходимы постоянные внешние сигналы от окружающей среды организма — так называемой стволовой ниши.
В культуре органоидов полностью отсутствуют пять ключевых факторов этой ниши:
- Кровеносные сосуды. Эндотелиальные клетки сосудов не только доставляют кислород и глюкозу, но и выделяют специфические сигнальные молекулы (ангиокрины), которые регулируют переход стволовых клеток от пролиферации к дифференцировке. В бессосудистых органоидах этот контроль отсутствует.
- Спинномозговая жидкость. В эмбрионе желудочки мозга заполнены ликвором, который непрерывно омывает апикальные отростки радиальной глии и приносит ростовые факторы.
- Механический каркас. В мозге отростки радиальной глии натянуты между внутренней и внешней поверхностями стенки полушария. Это натяжение задает физическую ориентацию веретена деления при митозе. В сферических органоидах геометрия натяжения нарушена.
- Клетки микроглии. Собственные иммунные клетки мозга регулируют численность нейронов, уничтожая избыточные предшественники и выделяя цитокины дифференцировки.
- Входящие нервные волокна. Сигналы от аксонов, приходящих из других развивающихся областей нервной системы, служат обратной связью, информирующей клетки о завершении очередного этапа строительства ткани.
Лишенные этих внешних ограничений, стволовые клетки в органоидах переходят в вероятностный режим работы: они сохраняют способность создавать нейроны, но момент деления и выбор судьбы потомков становятся случайными.
Значение открытия для медицины и биологии
Выводы группы Хиппенмейера имеют прямое практическое значение для биомедицинских исследований:
- Коррекция моделей заболеваний. Органоиды часто используют для изучения аутизма, микроцефалии или шизофрении. В таких работах уменьшение размера органоида или изменение толщины слоев нейронов нередко связывали с действием изучаемой генетической мутации. Новые данные показывают, что подобные количественные сдвиги могут быть вызваны внутренним стохастическим шумом самой системы культивирования.
- Необходимость клонального контроля. Для подтверждения адекватности новых протоколов выращивания тканей больше нельзя ограничиваться анализом средних показателей экспрессии генов. Необходима прямая проверка истории деления отдельных клеток методами, аналогичными MADM.
- Новые требования к биотехнологии. Для создания функционально точных моделей коры исследователям потребуется усложнить условия культивирования: интегрировать микрофлюидные каналы для имитации сосудистого русла, вводить клетки микроглии и создавать искусственные матрицы, обеспечивающие правильное механическое напряжение ткани.
Органоиды остаются важным инструментом современной науки, позволяющим исследовать фундаментальные свойства клеток вне организма. Однако исследование показывает фундаментальную границу самоорганизации: без анатомического контекста и внешних управляющих сигналов стволовые клетки не способны воспроизвести строгую хронологию развития ткани.
Источник: Nature
0 комментариев
Добавить комментарий