Почему первый кислород чуть не погубил планету: как химия океана спасала биосферу от собственного открытия
История появления кислорода на Земле долгое время казалась последовательным процессом: фотосинтезирующие одноклеточные организмы выделили достаточное количество газа, окислили горные породы и океан, после чего атмосфера окончательно стала пригодной для дыхания. Однако данные современной геологии указывают на совершенно другой сценарий.
В интервале между 2,43 и 2,06 миллиарда лет назад планета пережила период, известный как Великое кислородное событие. Концентрация кислорода в воздухе в это время вела себя нестабильно: она резко возрастала, удерживалась на протяжении сотен тысяч лет, а затем падала до практически нулевых отметок. Процесс повторялся неоднократно.
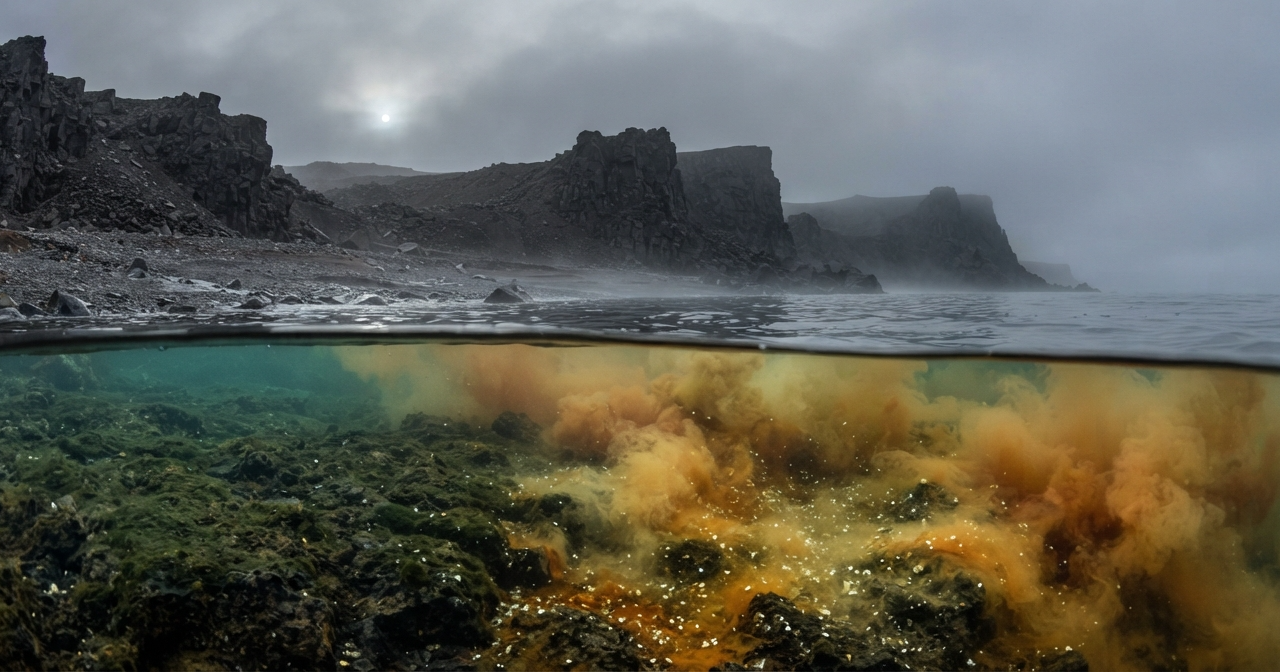
Геохимики долго не могли объяснить, почему фотосинтез, однажды возникнув, не смог сразу и навсегда закрепить кислородный режим. Международная группа исследователей под руководством Льюиса Олкотта опубликовала в журнале Nature Communications работу, которая раскрывает физико-химические причины этих скачков. Ученые установили, что циклические изменения уровня кислорода контролировались доступностью фосфора в океане, а сама эта доступность зависела от химических реакций между железом и серой после глобальных оледенений.
Содержание
Геологический архив из Южной Африки
Чтобы изучить состав атмосферы и гидросферы того периода, авторы исследования проанализировали образцы керна EBA-2, извлеченные из осадочных пород формаций Роойхогте и Таймбол-Хилл в Южной Африке. Эти породы сформировались приблизительно 2,32-2,25 миллиарда лет назад на дне мелководного морского залива, который имел свободную связь с открытым океаном.
Этот пласт пород сформировался в переходный период: сразу после завершения глобального оледенения, когда ледники покрывали планету вплоть до экватора, и до наступления следующего, более локального ледникового периода.
Химический состав осадочных пород сохраняет прямые свидетельства состояния древней атмосферы. Главным показателем выступают изотопы серы. В атмосфере, где отсутствует свободный кислород, нет и озонового слоя. Без озона солнечное ультрафиолетовое излучение беспрепятственно проникает в нижние слои воздуха и разрушает вулканический сернистый газ. В ходе этой фотохимической реакции происходит так называемое масс-независимое фракционирование изотопов серы, которое обозначают индексом Δ33S.
Если в осадочных породах присутствует сигнал Δ33S, это однозначно доказывает, что концентрация кислорода в атмосфере была исчезающе малой — ниже одной миллионной доли от современного значения. Как только концентрация кислорода превышает этот порог, ультрафиолетовые реакции блокируются озоном, и аномалия в изотопах серы полностью исчезает.
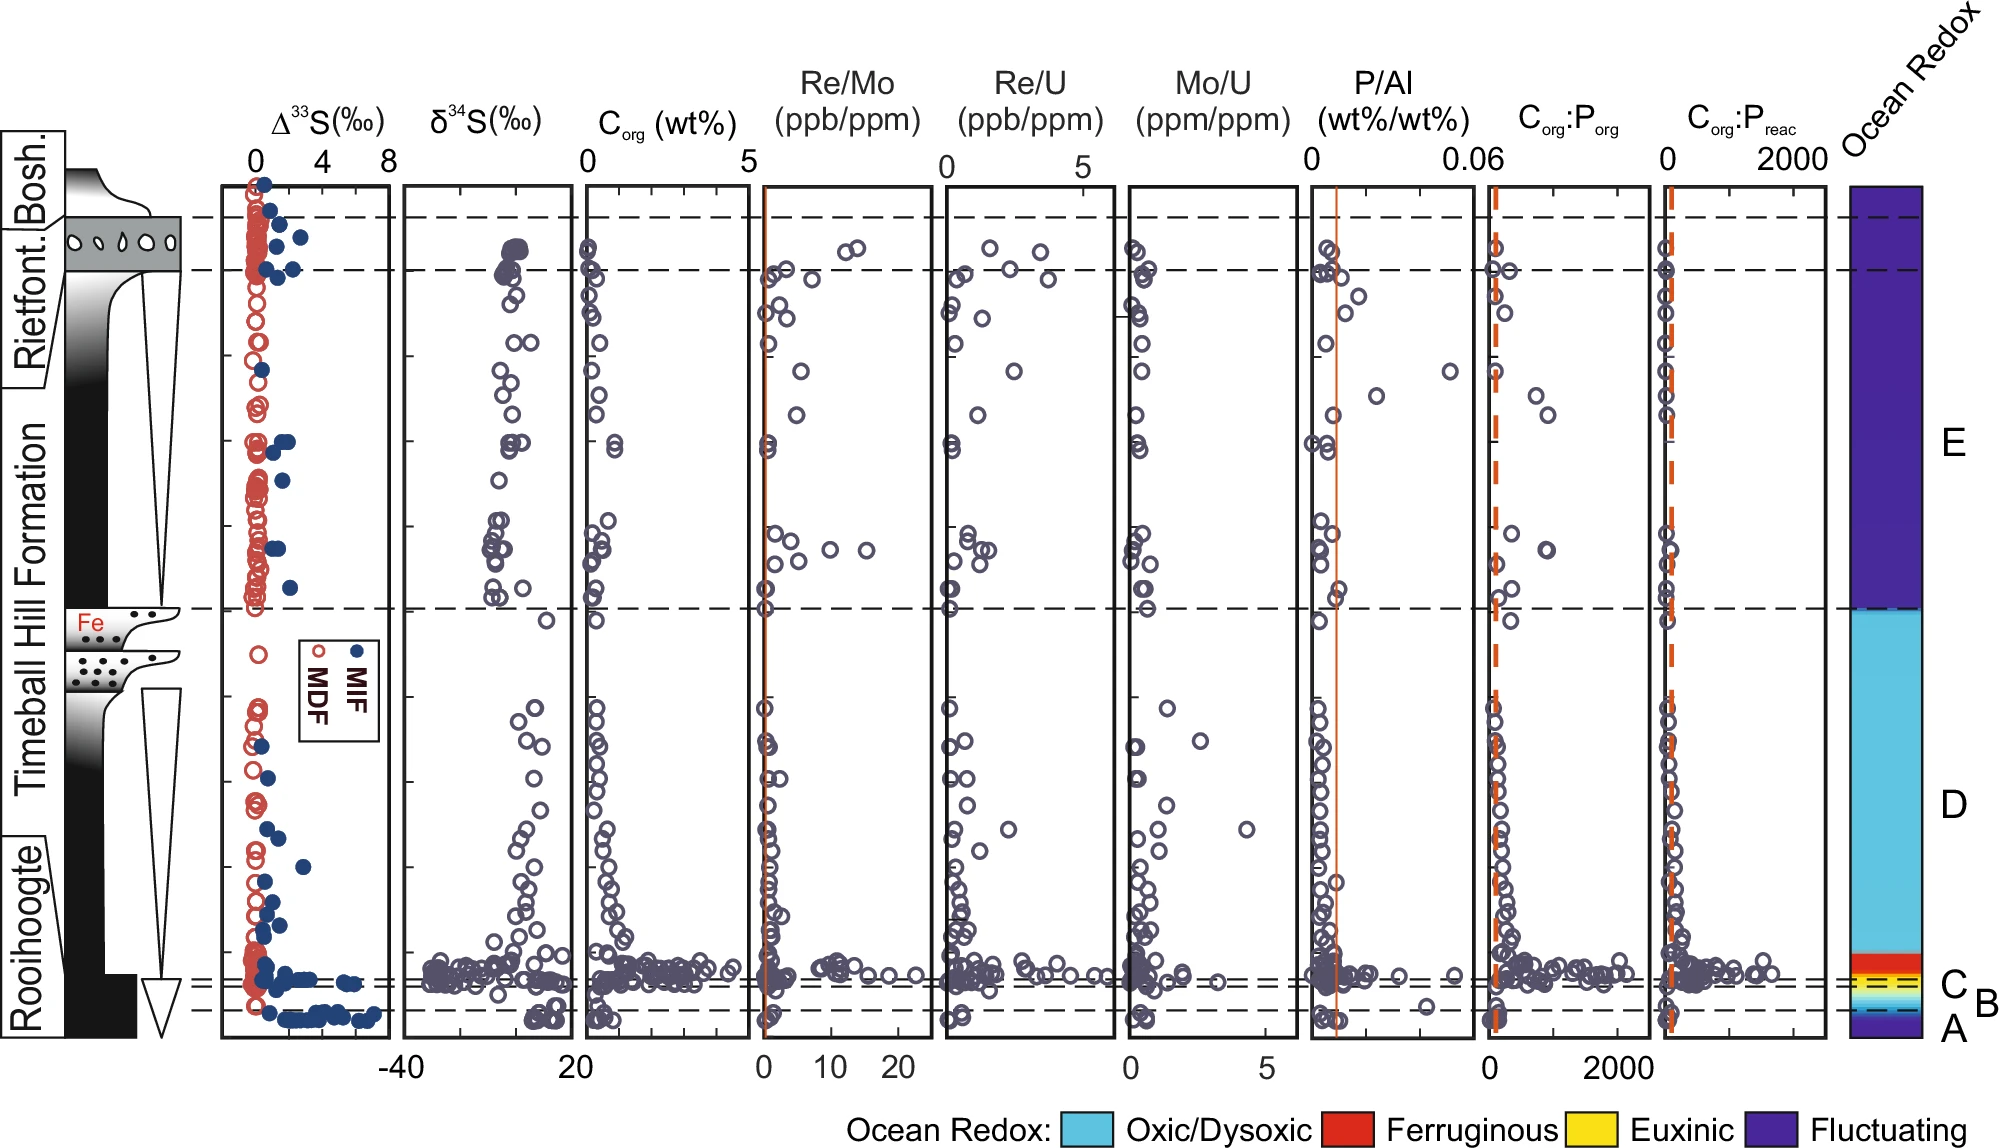
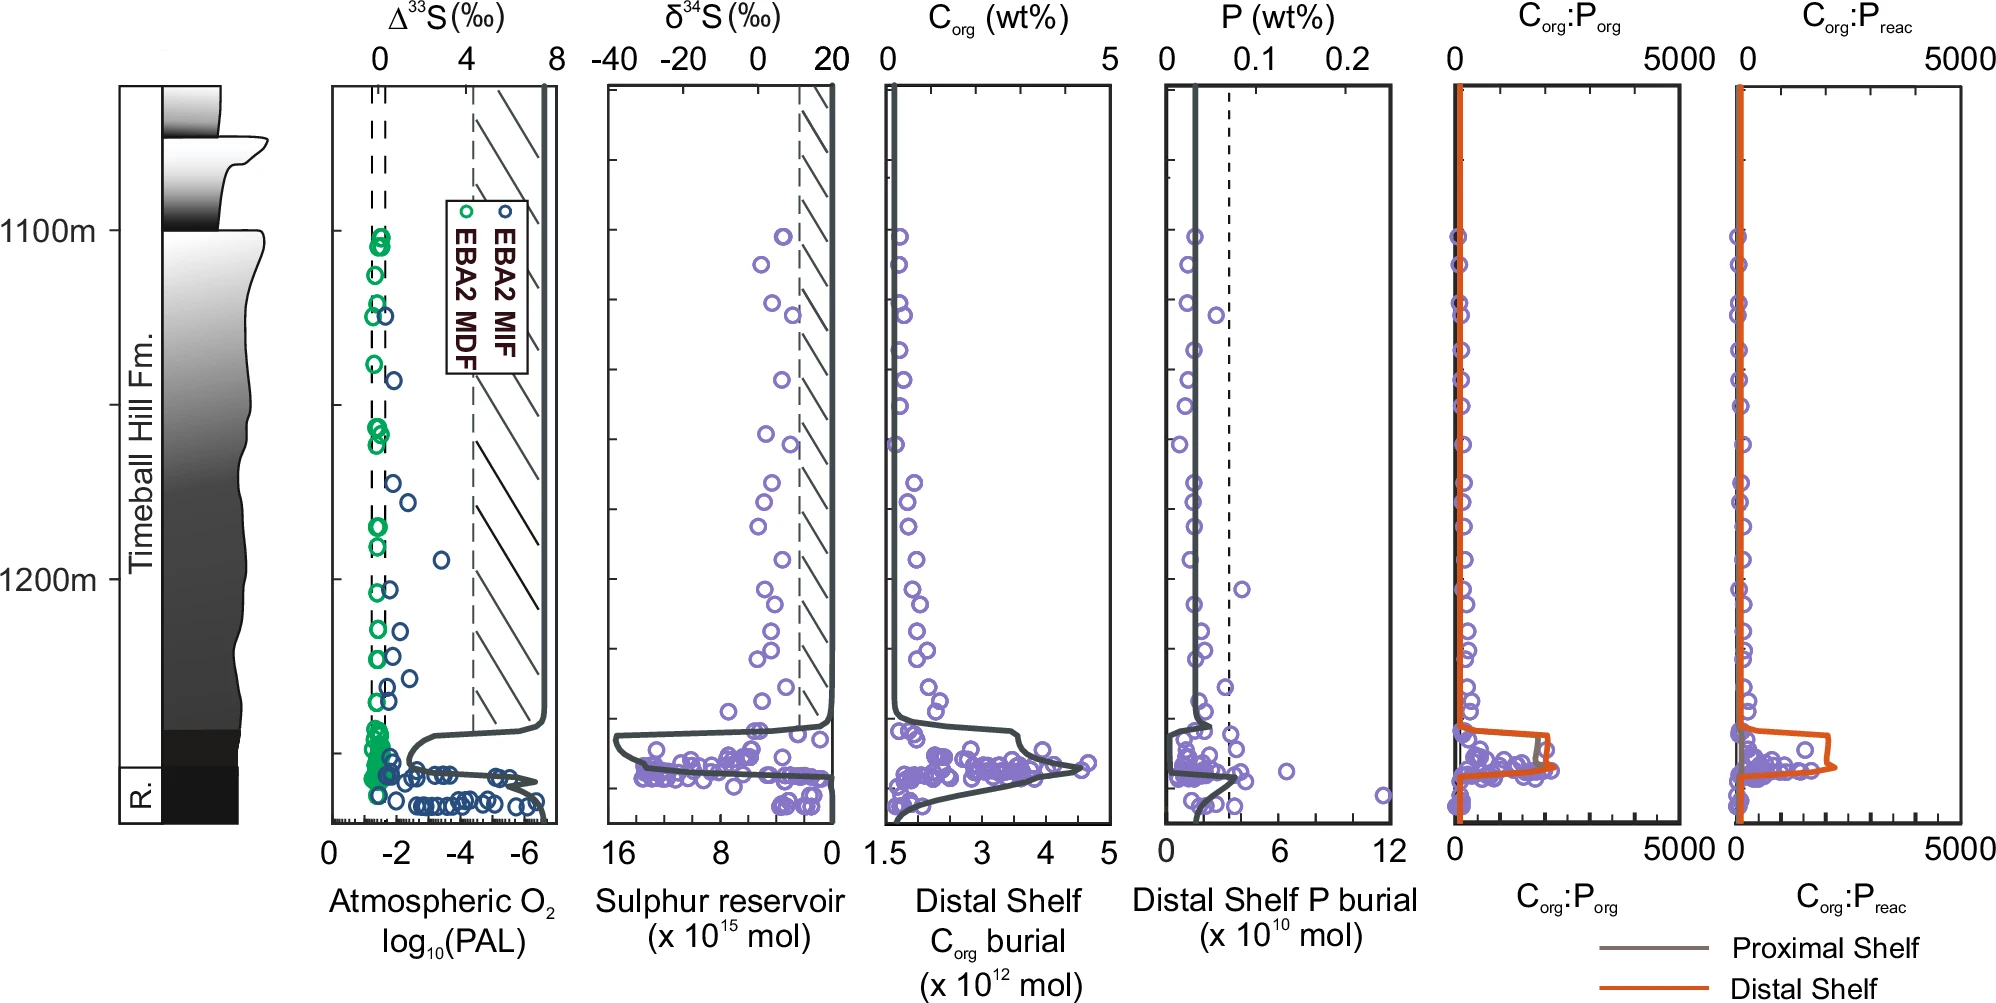
Изучение керна EBA-2 показало чередование таких сигналов. В нижней части формации Роойхогте изотопная аномалия серы исчезает, затем появляется вновь, а на границе с формацией Таймбол-Хилл пропадает повторно. Это означает, что атмосфера несколько раз переходила из бескислородного состояния в окисленное и обратно.
Анализ древней морской воды
Чтобы понять, что происходило в океане одновременно с изменениями в атмосфере, исследователи изучили распределение металлов, чувствительных к окислению: рения, урана и молибдена.
Поведение этих элементов строго подчиняется законам неорганической химии:
- Рений выпадает из воды в донный осадок в условиях слабого дефицита кислорода (дизоксии).
- Уран осаждается только тогда, когда кислород в придонной воде исчезает полностью (аноксия).
- Молибден эффективно связывается осадком при наличии растворенного сероводорода либо при участии оседающих гидроксидов железа.
Сопоставив концентрации этих металлов с различными формами железа, ученые определили три ключевых режима, сменявших друг друга на морском мелководье:
- Ферругинозный режим: вода полностью лишена кислорода, но содержит высокую концентрацию растворенного двухвалентного железа (Fe²⁺).
- Эвксинный режим: в воде нет кислорода, железо связано в минералы, но накапливается токсичный растворенный сероводород (H₂S).
- Окисленный режим: в толще воды присутствует растворенный кислород.
Данные показали, что смена химических режимов в воде происходила одновременно со скачками кислорода в атмосфере. Причиной этих изменений оказалось движение фосфора между водой и донными осадками.
Биологическая роль фосфора и минеральный барьер
Для роста и деления живых клеток необходимы три главных химических элемента: углерод, азот и фосфор. Углерод микроорганизмы получают из растворенного углекислого газа, азот — путем фиксации растворенного молекулярного азота. Источником фосфора служит исключительно суша. Фосфор высвобождается при разрушении горных пород водой и ветром, после чего реки выносят его в океан в виде растворимых фосфатов.
Поскольку количество фосфора на планете ограничено геологическими процессами, именно он определяет максимально возможный объем биомассы в масштабах всей Земли. Больше фосфора — больше фотосинтеза и больше выделяемого кислорода.
В древнем океане существовал химический барьер, препятствовавший развитию жизни. Большая часть воды была ферругинозной — в ней присутствовало огромное количество растворенного железа. Когда такое железо контактировало с минимальными следами кислорода, оно образовывало нерастворимые соединения (оксигидроксиды железа). Эти частицы захватывали растворенные ионы фосфата из воды и уносили их на дно.
Оказавшись в донном осадке, фосфор прочно связывался с минералами железа и выбывал из круговорота. Микроорганизмы в фотической (освещенной солнцем) зоне океана испытывали постоянную нехватку питания, из-за чего скорость фотосинтеза оставалась низкой.
Механизм химической цепочки: от таяния льдов к кислородному пику
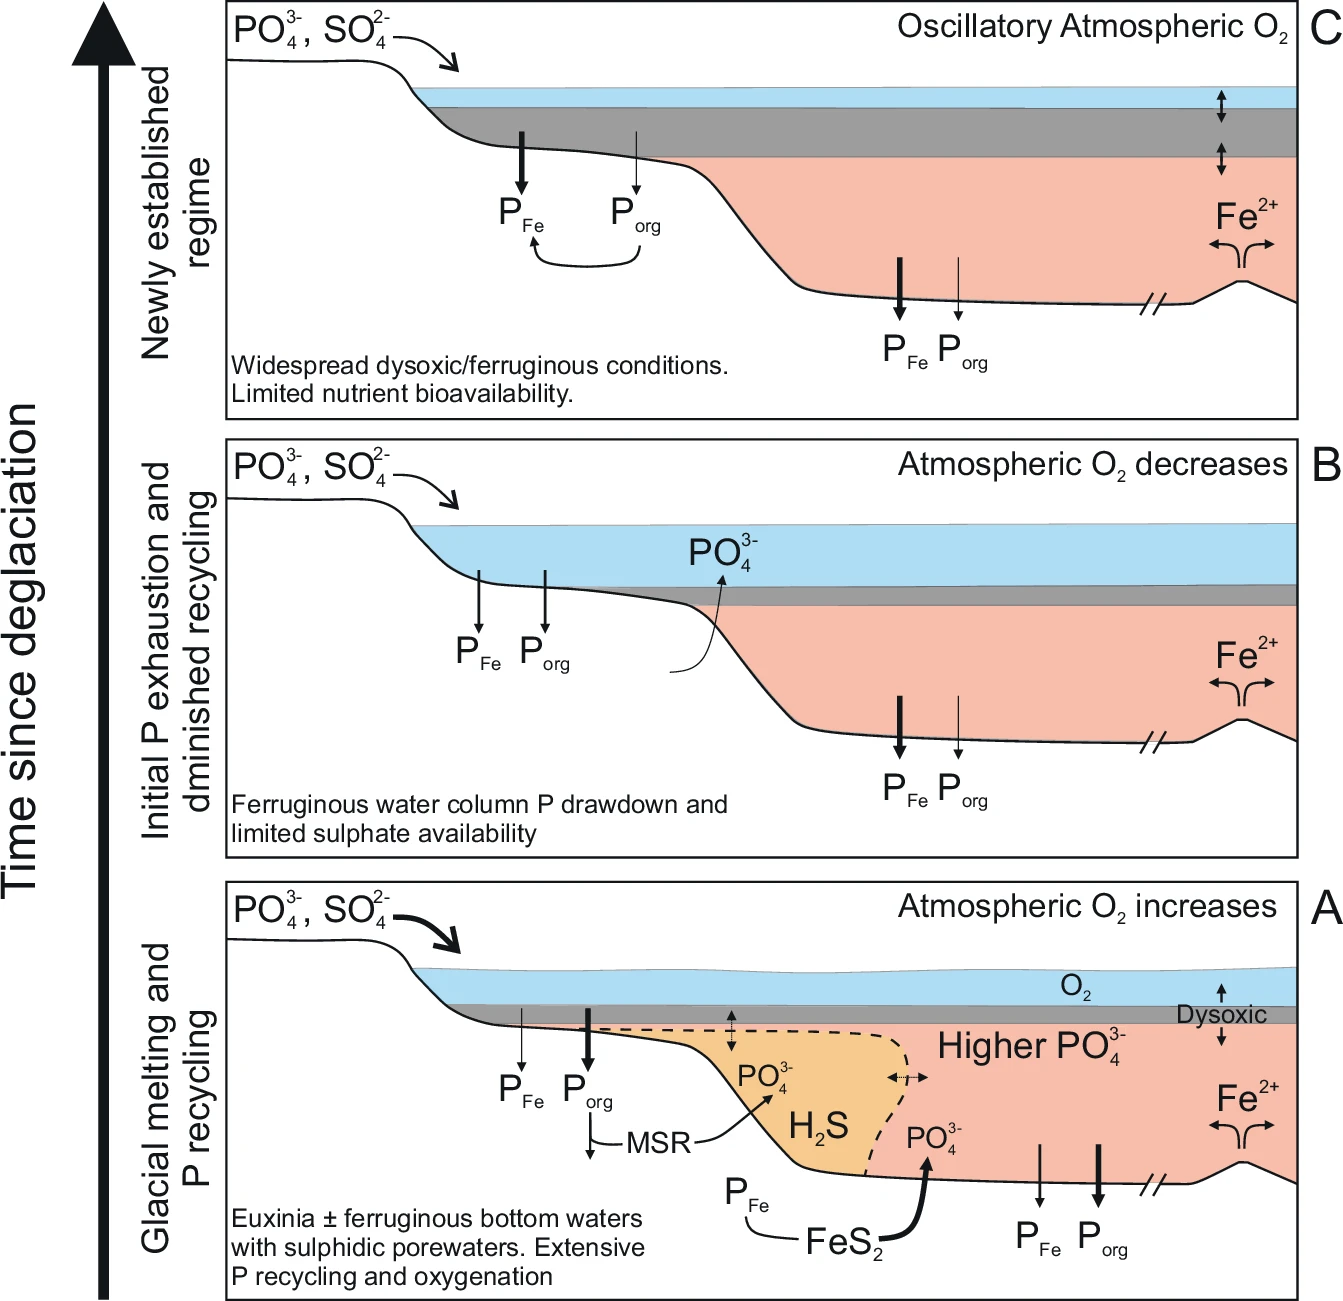
Ситуация кардинально изменилась после окончания глобального оледенения. Анализ образцов керна позволил детально восстановить последовательность реакций, которая привела к временному взрывному росту кислорода:
1. Вынос минералов с суши
Отступающие ледники механически перетерли миллионы кубических километров континентальных пород в мелкую пыль. После потепления талые воды начали массово смывать эту минеральную взвесь в океаны. Количество растворенного фосфора, поступившего в морскую воду, выросло в несколько раз по сравнению с доледниковым уровнем.
2. Вспышка фотосинтеза
Получив избыток фосфора, цианобактерии начали активно размножаться. Они перерабатывали углекислый газ и выделяли кислород. Поскольку масса органического вещества была огромной, значительная часть погибших микроорганизмов оседала на дно и быстро захоранивалась под слоем ила, не успевая окислиться. Это привело к первичному накоплению кислорода в атмосфере и поверхностных водах. Значение Δ33S снизилось, подтверждая подъем уровня O₂ выше критического порога.
3. Окислительное выветривание континентов
Накопившийся в атмосфере кислород вступил в контакт с сушей. Началось химическое разрушение сульфидных минералов на поверхности материков — прежде всего пирита (FeS₂). В результате окисления пирита образовались водорастворимые сульфаты (SO₄²⁻). Дожди смыли эти сульфаты в реки, и в океан хлынул мощный поток соединений серы.
4. Образование сероводорода
В океане сульфаты встретились с донными бактериями-сульфатредукторами. Эти организмы не используют кислород; они дышат сульфатами, восстанавливая их до сероводорода (H₂S). Водная толща и придонный ил перешли в эвксинное состояние.
5. Разрушение железофосфатного барьера
Сероводород химически крайне активен по отношению к железу. Поступающий H₂S связал все доступное в воде железо, превратив его в нерастворимый минерал пирит, который осел на дно.
Это нейтрализовало оксигидроксиды железа, удерживавшие фосфор. Осадочный барьер перестал функционировать. Фосфор, освобожденный от связи с железом, начал растворяться в поровых водах осадка и диффундировать обратно в толщу океана.
6. Повторное использование фосфора
Возврат фосфора в освещенную зону океана многократно усилил продуктивность биосферы. Один и тот же атом фосфора теперь не хоронился в осадке, а использовался клетками повторно десятки раз.
Геохимический анализ зафиксировал это явление через резкий рост соотношения органического углерода к реактивному фосфору (C_org: P_reac). В обычных условиях живые организмы содержат эти элементы в пропорции 106 атомов углерода на 1 атом фосфора (отношение Редфилда). В изученных пробах это соотношение превысило 1000:1. Это доказывает, что органический углерод продолжал накапливаться и захораниваться на дне, тогда как фосфор оставался в воде и стимулировал новые циклы фотосинтеза.
Биогеохимическое моделирование показывает, что благодаря этому повторному использованию нутриента концентрация кислорода в атмосфере выросла до 10⁻² PAL — то есть до одного процента от современного уровня.
Причины остановки процесса и падения кислорода
Описанная химическая система обладала внутренним ограничением, которое в конечном счете привело к ее коллапсу.
Рециркуляция фосфора продолжалась ровно до тех пор, пока в воде присутствовал растворенный сероводород. Однако скорость, с которой сульфатредуцирующие бактерии переводили серу в осадочный пирит, превышала скорость притока свежих сульфатов с материков. Захоронение пирита шло быстрее выветривания.
Запас сульфатов в морской воде исчерпался. Вслед за этим прекратилась и выработка сероводорода. Бассейн снова перешел в ферругинозное состояние: глубинное растворенное железо перестало связываться серой и вновь заполнило водную толщу.
Железо восстановило барьер для фосфора. Растворимые фосфаты начали немедленно сорбироваться новыми порциями гидроксидов железа и уходить в осадок. Концентрация биодоступного фосфора в воде резко упала.
Снижение содержания фосфора привело к прекращению интенсивного фотосинтеза. Объем выделяемого кислорода сократился в десятки раз.
При этом второй важнейший фактор планетарного баланса — вулканическая активность — продолжал работать независимо от биологии. Земные вулканы и гидротермальные источники непрерывно выбрасывали в атмосферу и гидросферу газы-восстановители: метан, монооксид углерода, водород и сероводород. Для их нейтрализации требуется постоянный приток свободного кислорода.
Когда биологический источник кислорода ослаб, вулканические газы быстро связали весь имеющийся в атмосфере O₂. Концентрация кислорода вновь упала ниже одной миллионной доли от современного уровня, что привело к возвращению сигнала Δ33S в осадочных породах.
Дополнительный вклад в это падение внесли геологические процессы. Моделирование показало, что таяние многокилометровых ледников сняло колоссальное механическое давление с земной коры. Декомпрессия магматических очагов привела к кратковременному усилению вулканизма, который выбросил в атмосферу дополнительную порцию газов-восстановителей. Это окончательно нейтрализовало остаточный кислород.
Цикличность длиною в сотни миллионов лет
Описанный процесс не был единичным эпизодом. На протяжении Великого кислородного события климатическая система Земли перенесла несколько оледенений, каждое из которых запускало этот цикл заново:
- Оледенение перемалывало породы суши.
- Таяние льдов сбрасывало фосфор в море и запускало фотосинтез.
- Кислород окислял сульфиды на континентах, поставляя сульфаты в воду.
- Сульфатредукция вызывала выделение сероводорода, который связывал железо и освобождал фосфор.
- Лавинообразное высвобождение фосфора порождало всплеск кислорода.
- Истощение серы возвращало железо, связывало фосфор и останавливало фотосинтез.
- Вулканические газы уничтожали накопленный кислород и возвращали атмосферу в бескислородное состояние.
Этот круговорот продолжался более 200 миллионов лет. Каждое колебание меняло состав континентальной коры: поверхностные породы постепенно окислялись на все большую глубину.
Окончательная стабилизация кислородной атмосферы произошла только около 2,22 миллиарда лет назад (в период так называемой изотопной экскурсии Ломагунди). К этому моменту общее количество окисленных пород на суше достигло критической массы, запасы сульфатов в океане перестали падать до нуля, а приток кислорода от фотосинтеза стал стабильно превышать суммарный объем восстановительных вулканических газов.
Значение открытия
Исследование группы Олкотта принципиально меняет понимание планетарной эволюции. Появление фотосинтезирующих организмов было необходимым, но недостаточным условием для оксигенации планеты.
Биосфера не развивалась изолированно: объемы производства кислорода напрямую определялись неорганическими реакциями связывания и высвобождения фосфора. Баланс между притоком серы, осаждением железа и выветриванием сульфидов определял, будет ли планета снабжена кислородом или вернется к токсичной бескислородной среде.
Этот вывод имеет прямое значение для астробиологии и поиска жизни за пределами Солнечной системы. Наличие кислорода в атмосфере экзопланеты не может рассматриваться как раз и навсегда достигнутое состояние. Оксигенация — это результат подвижного равновесия между биологической продуктивностью, тектоническими процессами и составом коры, которое на землеподобных планетах может оставаться нестабильным на протяжении сотен миллионов лет.
Источник: Nature Communications
0 комментариев
Добавить комментарий