Нейроны силы воли: что в нашем мозге отвечает за умение вовремя остановиться?
Способность человека или животного вовремя остановить действие — один из главных механизмов выживания. В повседневной жизни нервная система ежесекундно решает задачу отбора: на какие сигналы окружающего мира нужно реагировать движением, а какие следует проигнорировать. В нейробиологии эту способность называют тормозным контролем.
Нарушения тормозного контроля лежат в основе синдрома дефицита внимания и гиперактивности (СДВГ), расстройств аутистического спектра, синдрома Туретта и шизофрении. Люди с такими диагнозами часто испытывают сенсорную перегрузку и совершают импульсивные поступки не потому, что хотят их совершить, а потому, что их мозг не успевает заблокировать автоматическую двигательную реакцию на внешний раздражитель.
Долгое время считалось, что за сдерживание любых порывов отвечает исключительно кора больших полушарий — в особенности префронтальная кора, зона высших когнитивных функций. Однако ученые из Пенсильванского университета выяснили, что непосредственная блокировка двигательных реакций на сенсорные сигналы происходит глубже — в базальных ганглиях, а именно в задней части полосатого тела (хвосте стриатума).
Результаты исследования, опубликованные в журнале Science Advances, описывают конкретную группу клеток, отвечающую за подавление импульсивных реакций, а также показывают, как исправление генетического дефекта в этой зоне возвращает животным способность к самоконтролю.
Два пути в структуре базальных ганглиев
Полосатое тело, или стриатум, представляет собой крупный узел в глубине мозга. Оно непрерывно собирает информацию от всей коры больших полушарий, перерабатывает ее и передает команды нижележащим структурам, управляющим мышцами.
Подавляющее большинство клеток стриатума — около 95% — составляют так называемые шипиковые проекционные нейроны (SPN). Эти клетки делятся на два функциональных класса, которые работают в тесной связке, но выполняют строго противоположные задачи:
- Нейроны прямого пути (dSPN). На своей мембране они несут дофаминовые рецепторы первого типа (D1). Когда эти клетки активируются, они снижают активность внутренних тормозных структур базальных ганглиев, что в итоге приводит к возбуждению моторных зон таламуса и запуску движения.
- Нейроны непрямого пути (iSPN). Они оснащены дофаминовыми рецепторами второго типа (D2). Их активация запускает более сложную многоэтапную цепь сигналов через вспомогательные ядра, которая усиливает торможение таламуса и тем самым блокирует выполнение двигательной команды.
Большинство предыдущих исследований было сосредоточено на передних отделах стриатума, которые участвуют в принятии решений и оценке выгоды. Задняя же часть — хвост полосатого тела — долгое время оставалась вне фокуса внимания исследователей.
Анатомические данные последних лет показали, что хвост стриатума напрямую соединен со слуховой и зрительной корой, а также со слуховыми центрами таламуса. Это делает его специализированным узлом, где сенсорная информация мгновенно преобразуется в решение о том, нужно ли совершать физическое действие в ответ на звук или зрительный образ.
Поведение мышей в задаче Go/NoGo
Чтобы понять, как именно нейроны прямого и непрямого путей участвуют в сдерживании реакций, исследователи создали установку для поведенческих экспериментов с мышами.
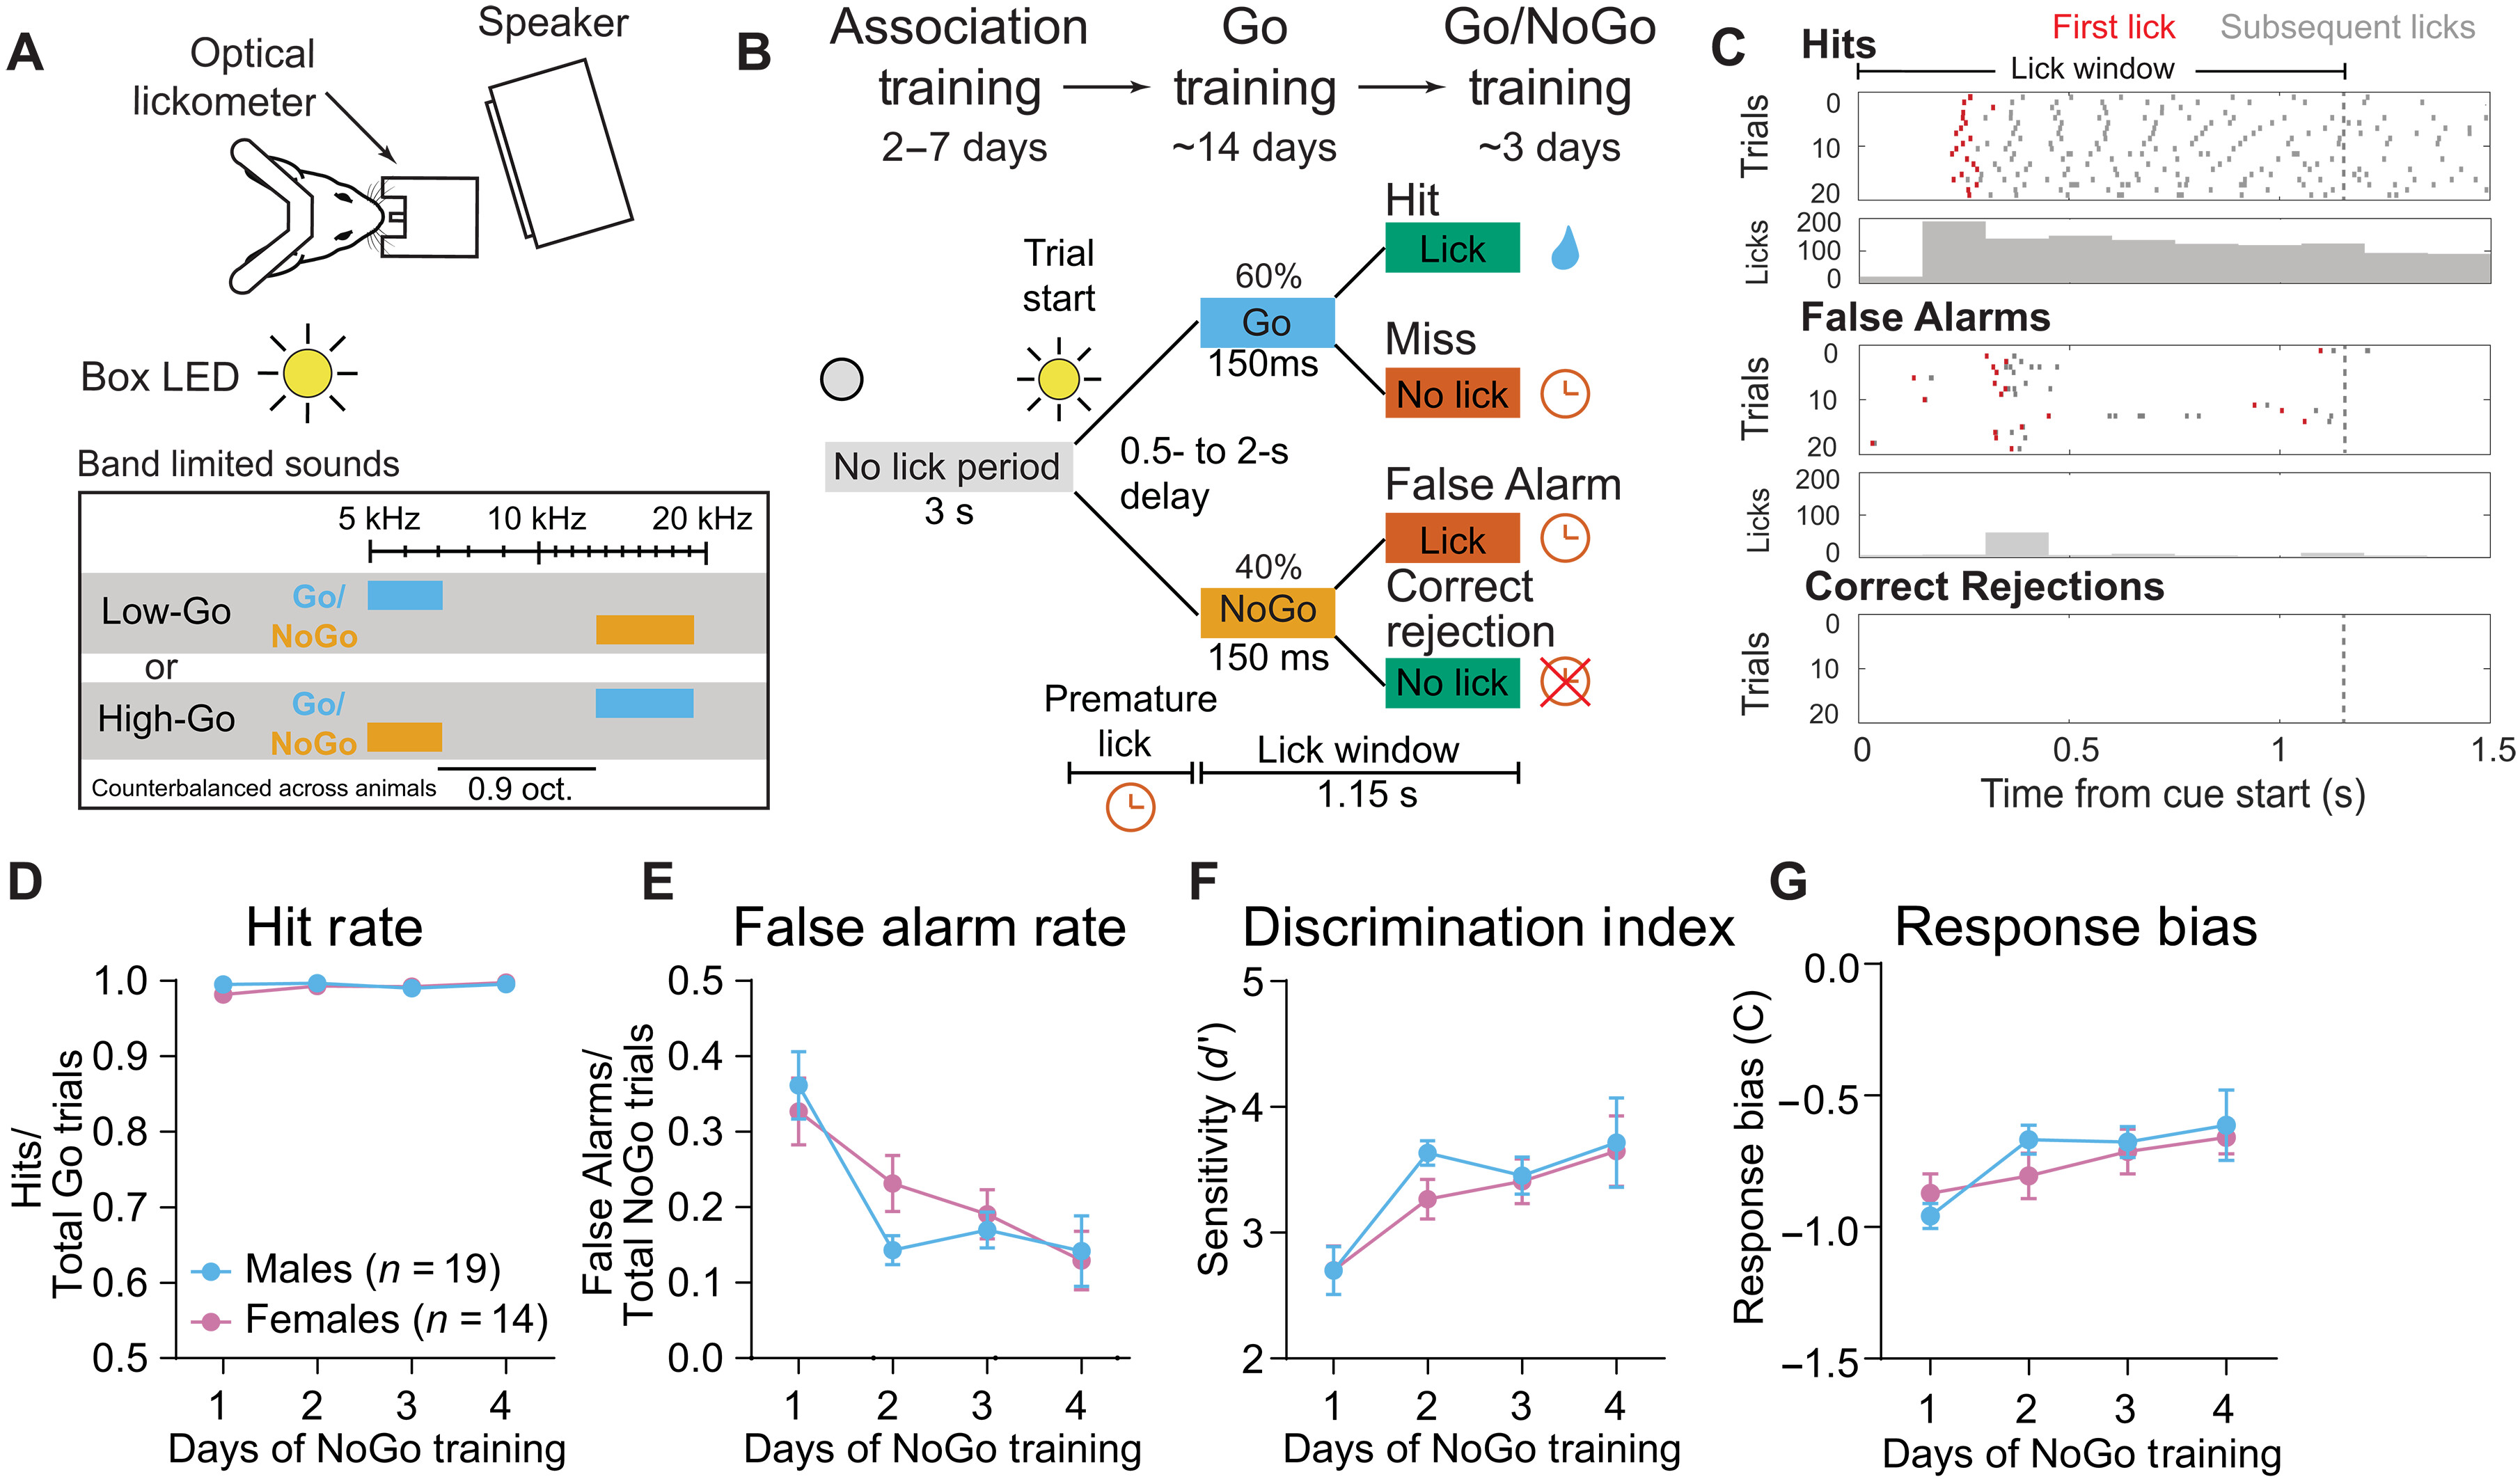
Животных фиксировали в установке перед металлической трубкой-поилкой, снабженной инфракрасным датчиком. Мышам подавали звуковые сигналы двух разных частот:
- Целевой звук (сигнал Go). Услышав его, мышь должна была коснуться языком поилки в течение 1,15 секунды. В случае успеха она получала 4 микролитра воды.
- Нецелевой звук (сигнал NoGo). Услышав этот звук, животное должно было воздержаться от любого движения языком в течение тех же 1,15 секунды. Если мышь сдерживалась, опыт считался успешным. Если же она совершала импульсивное лизание (ошибка «ложной тревоги»), включался штраф: свет гас, а подача воды блокировалась на пять секунд.
Звуковые частоты для сигналов Go и NoGo регулярно меняли местами между группами мышей, чтобы исключить влияние врожденной чувствительности к высоким или низким тонам. Обучение занимало несколько недель. В итоге животные достигали высокого уровня точности, безошибочно забирая воду на разрешающий звук и подавляя движения на запрещающий.
Оптическая регистрация активности клеток
Чтобы увидеть работу отдельных типов нейронов в момент принятия решения, ученые использовали метод волоконной фотометрии.
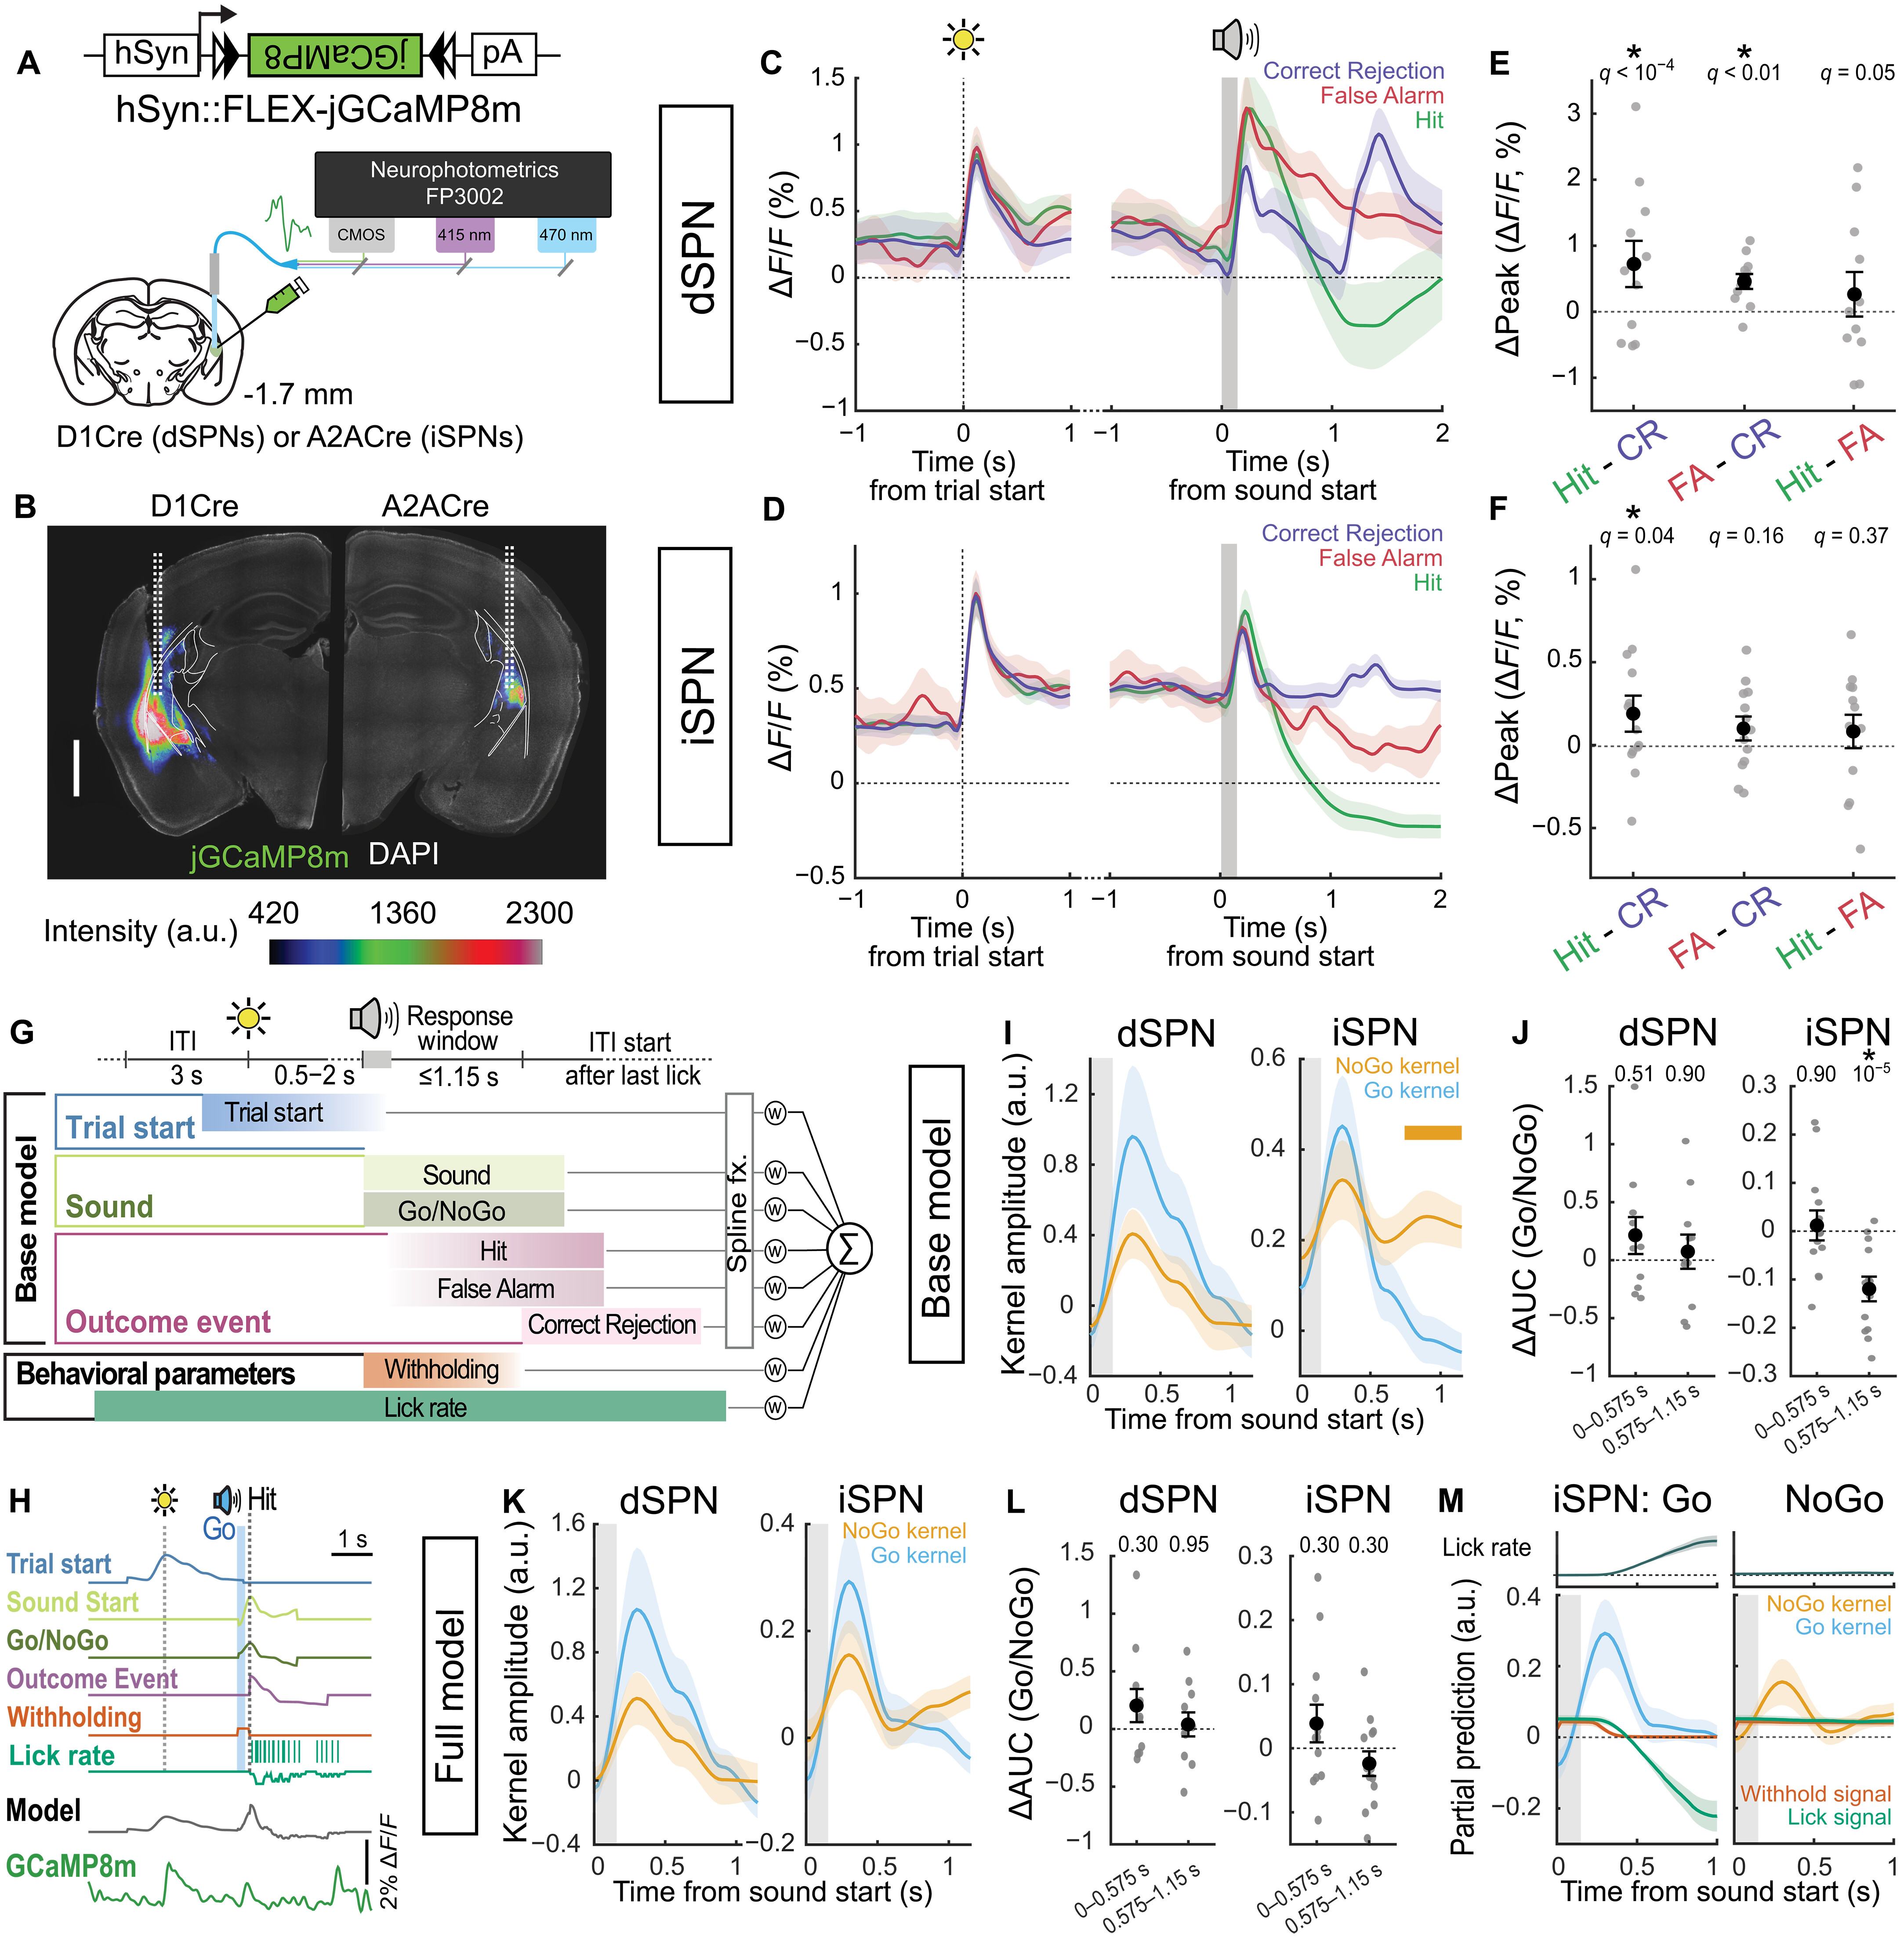
С помощью безвредных генетически модифицированных вирусов в клетки хвоста стриатума мышей встроили ген флуоресцентного белка jGCaMP8m. Этот белок начинает ярко светиться зеленым цветом при связывании с ионами кальция. Поскольку каждый электрический импульс в нейроне сопровождается входом кальция внутрь клетки, уровень свечения точно отражает текущую активность нейронной популяции.
Через вживленное в мозг сверхтонкое оптоволокно ученые записывали вспышки активности отдельно от нейронов прямого пути (dSPN) и нейронов непрямого пути (iSPN).
Данные фотометрии показали четкое разделение процессов во времени:
- Ранняя фаза (первые 400-500 миллисекунд после звука). В этот момент и клетки прямого, и клетки непрямого пути активировались одинаково сильно независимо от того, какой звук прозвучал — целевой или запрещающий. Мозг просто регистрировал факт появления звукового раздражителя.
- Поздняя фаза (от 575 до 1150 миллисекунд после звука). На этом этапе траектории сигналов резко расходились. Если звучал сигнал Go и мышь тянулась за водой, нейроны прямого пути сохраняли активность, а нейроны непрямого пути затухали.
Но если звучал запрещающий сигнал NoGo и животное успешно удерживало себя от движения, нейроны непрямого пути (iSPN) демонстрировали длительную, устойчивую активность. Они оставались в возбужденном состоянии на протяжении всего окна ожидания, пока не истекало время возможной ошибки.
Математическое моделирование подтвердило: эта непрерывная активность нейронов непрямого пути отражает именно процесс удержания от движения, а не память о звуке. В тех редких случаях, когда обученные мыши совершали ошибку и импульсивно касались поилки на сигнал NoGo, активность клеток iSPN перед совершением движения резко падала.
Прямое вмешательство с помощью света
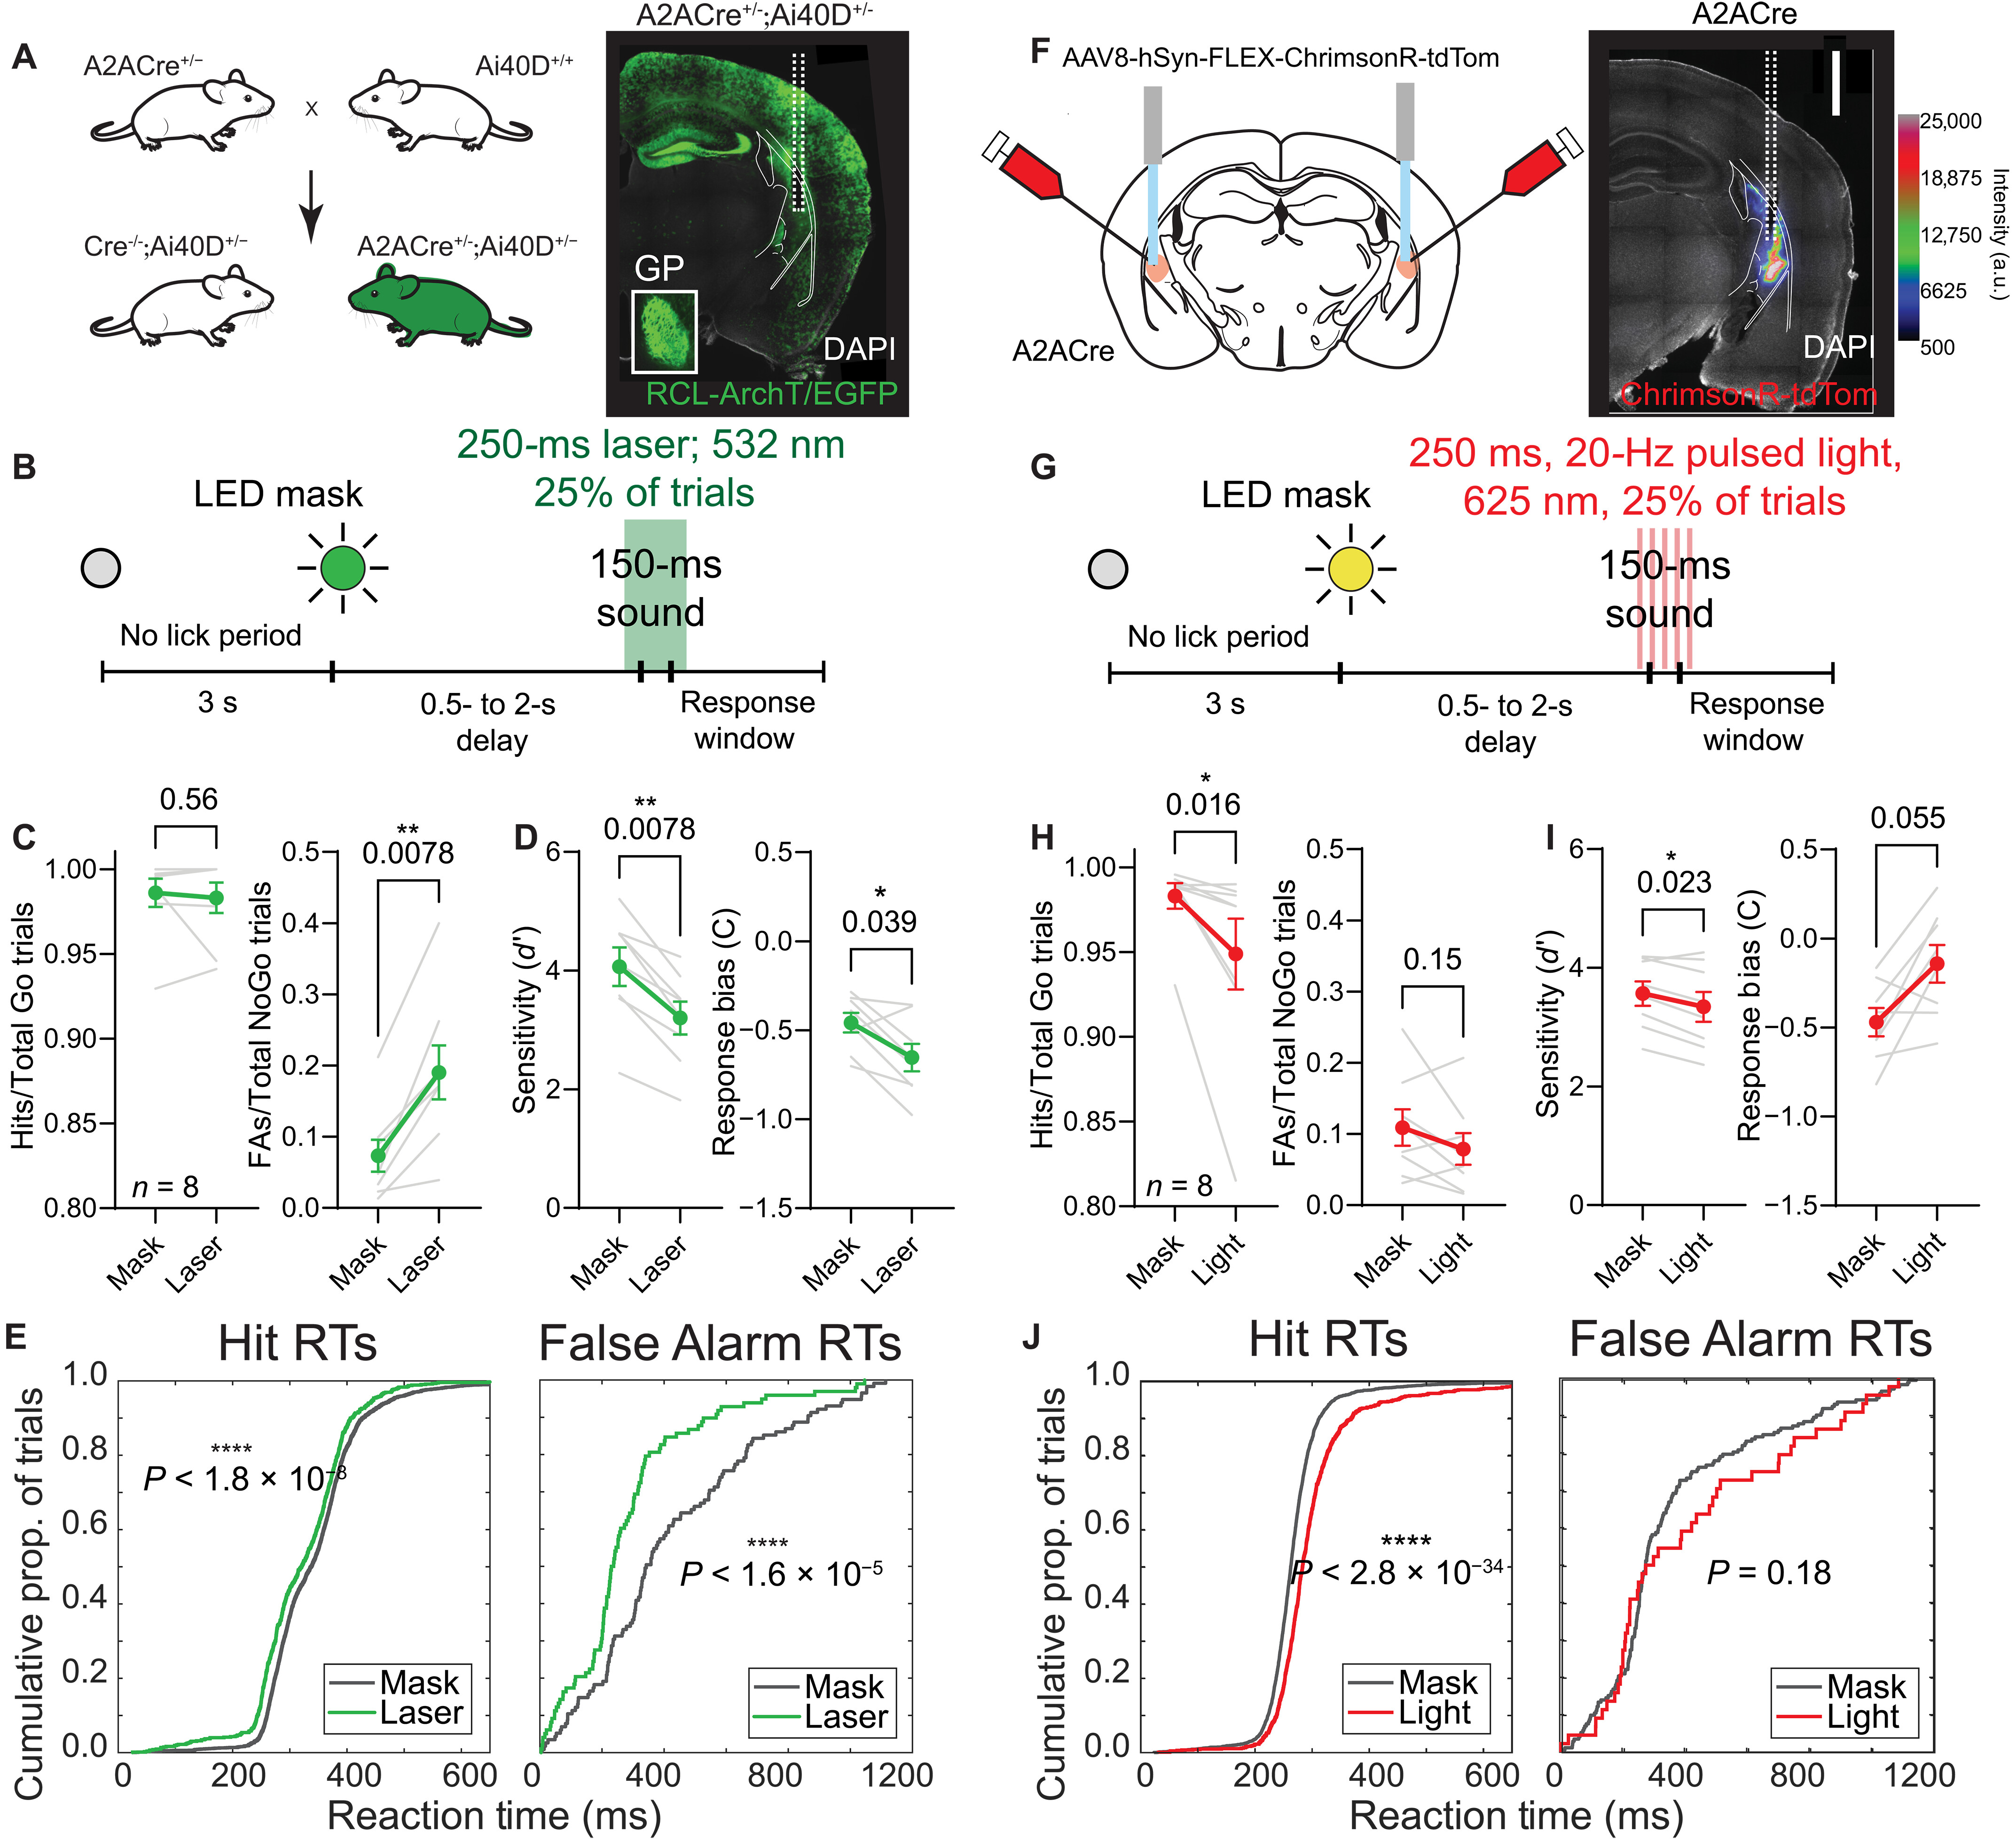
Чтобы доказать, что именно длительная работа нейронов непрямого пути заставляет животное сдерживаться, авторы применили оптогенетику — метод, позволяющий избирательно включать и выключать нейроны с помощью света определенной длины волны.
В клетки непрямого пути встроили светочувствительный белок ArchT3.0, который при освещении зеленым лазером блокирует генерацию электрических импульсов в мембране клетки.
Эксперимент показал следующие результаты:
- Когда ученые выключали нейроны непрямого пути коротким импульсом лазера (250 миллисекунд) прямо во время звучания сигнала NoGo, мыши моментально теряли способность сдерживаться. Число ошибочных импульсивных реакций возрастало в несколько раз. Животные совершали движение значительно быстрее, чем в контрольных тестах.
- Если лазер включали чуть позже (через 200-450 миллисекунд после звука, когда животное уже находилось в процессе сдерживания), результат оставался прежним: отключение клеток вызывало немедленный срыв торможения и ошибочное движение.
- Вмешательство в работу клеток прямого пути (dSPN) — их искусственное возбуждение красным светом через белок ChrimsonR или их подавление — практически не влияло на способность животных удерживаться от реакции на запрещающий сигнал.
Этот эксперимент доказал: ключевую роль в блокировке движения играет не уровень возбуждения клеток прямого пути, а специализированная и непрерывная активность клеток непрямого пути в хвосте стриатума.
Генетическая поломка синапсов
Выявив роль этого контура у здоровых животных, исследователи обратились к генетическим моделям нарушений развития.
Одним из важных генетических факторов риска развития расстройств аутистического спектра, синдрома дефицита внимания и шизофрении являются мутации в гене Neurexin1α (Nrxn1α). Этот ген отвечает за синтез белка нейрексина-1-альфа, расположенного на передающей (пресинаптической) стороне межнейронных контактов. Нейрексины физически связываются с белками на принимающей стороне синапса, обеспечивая механическую стабильность контакта и правильную работу рецепторов.
Ученые вывели линию мышей, у которых ген Nrxn1α был полностью выключен (нокаут гена).
Электрофизиологические измерения на срезах мозга показали масштаб нарушений в хвосте полосатого тела:
- Сила возбуждающих синаптических токов, приходящих из коры головного мозга на нейроны непрямого пути (iSPN), у мутантных мышей оказалась более чем в пять раз ниже, чем у нормальных животных.
- Анализ коэффициента парной стимуляции показал, что в пресинаптических окончаниях снизилась вероятность выброса глутамата — главного возбуждающего нейромедиатора мозга. Сигнал от коры попросту не мог эффективно активировать тормозные клетки стриатума.
Затем мутантных мышей протестировали в слуховой задаче Go/NoGo. Животные с отсутствием гена Nrxn1α успешно учились реагировать на разрешающий звук и вовремя забирали воду. Однако при подаче запрещающего звука NoGo они демонстрировали тяжелый дефицит тормозного контроля: частота ложных тревог и импульсивных ошибочных движений у них была стабильно и значительно выше, чем у мышей дикого типа.
При этом исследователи исключили общую двигательную гиперактивность: мыши-мутанты не совершали хаотических движений в паузах между заданиями. Их проблема заключалась именно в неспособности подавить реакцию на конкретный сенсорный триггер.
Восстановление самоконтроля с помощью хемогенетики
Разрыв в нейронной цепи выглядел следующим образом: кора посылает команду на торможение, но из-за синаптического дефекта нейроны непрямого пути в хвосте стриатума не получают достаточного возбуждения и не могут активироваться на необходимое время.
Ученые выдвинули гипотезу: если искусственно повысить базовую возбудимость нейронов непрямого пути, это компенсирует слабый приток сигналов от коры и восстановит тормозной контроль.
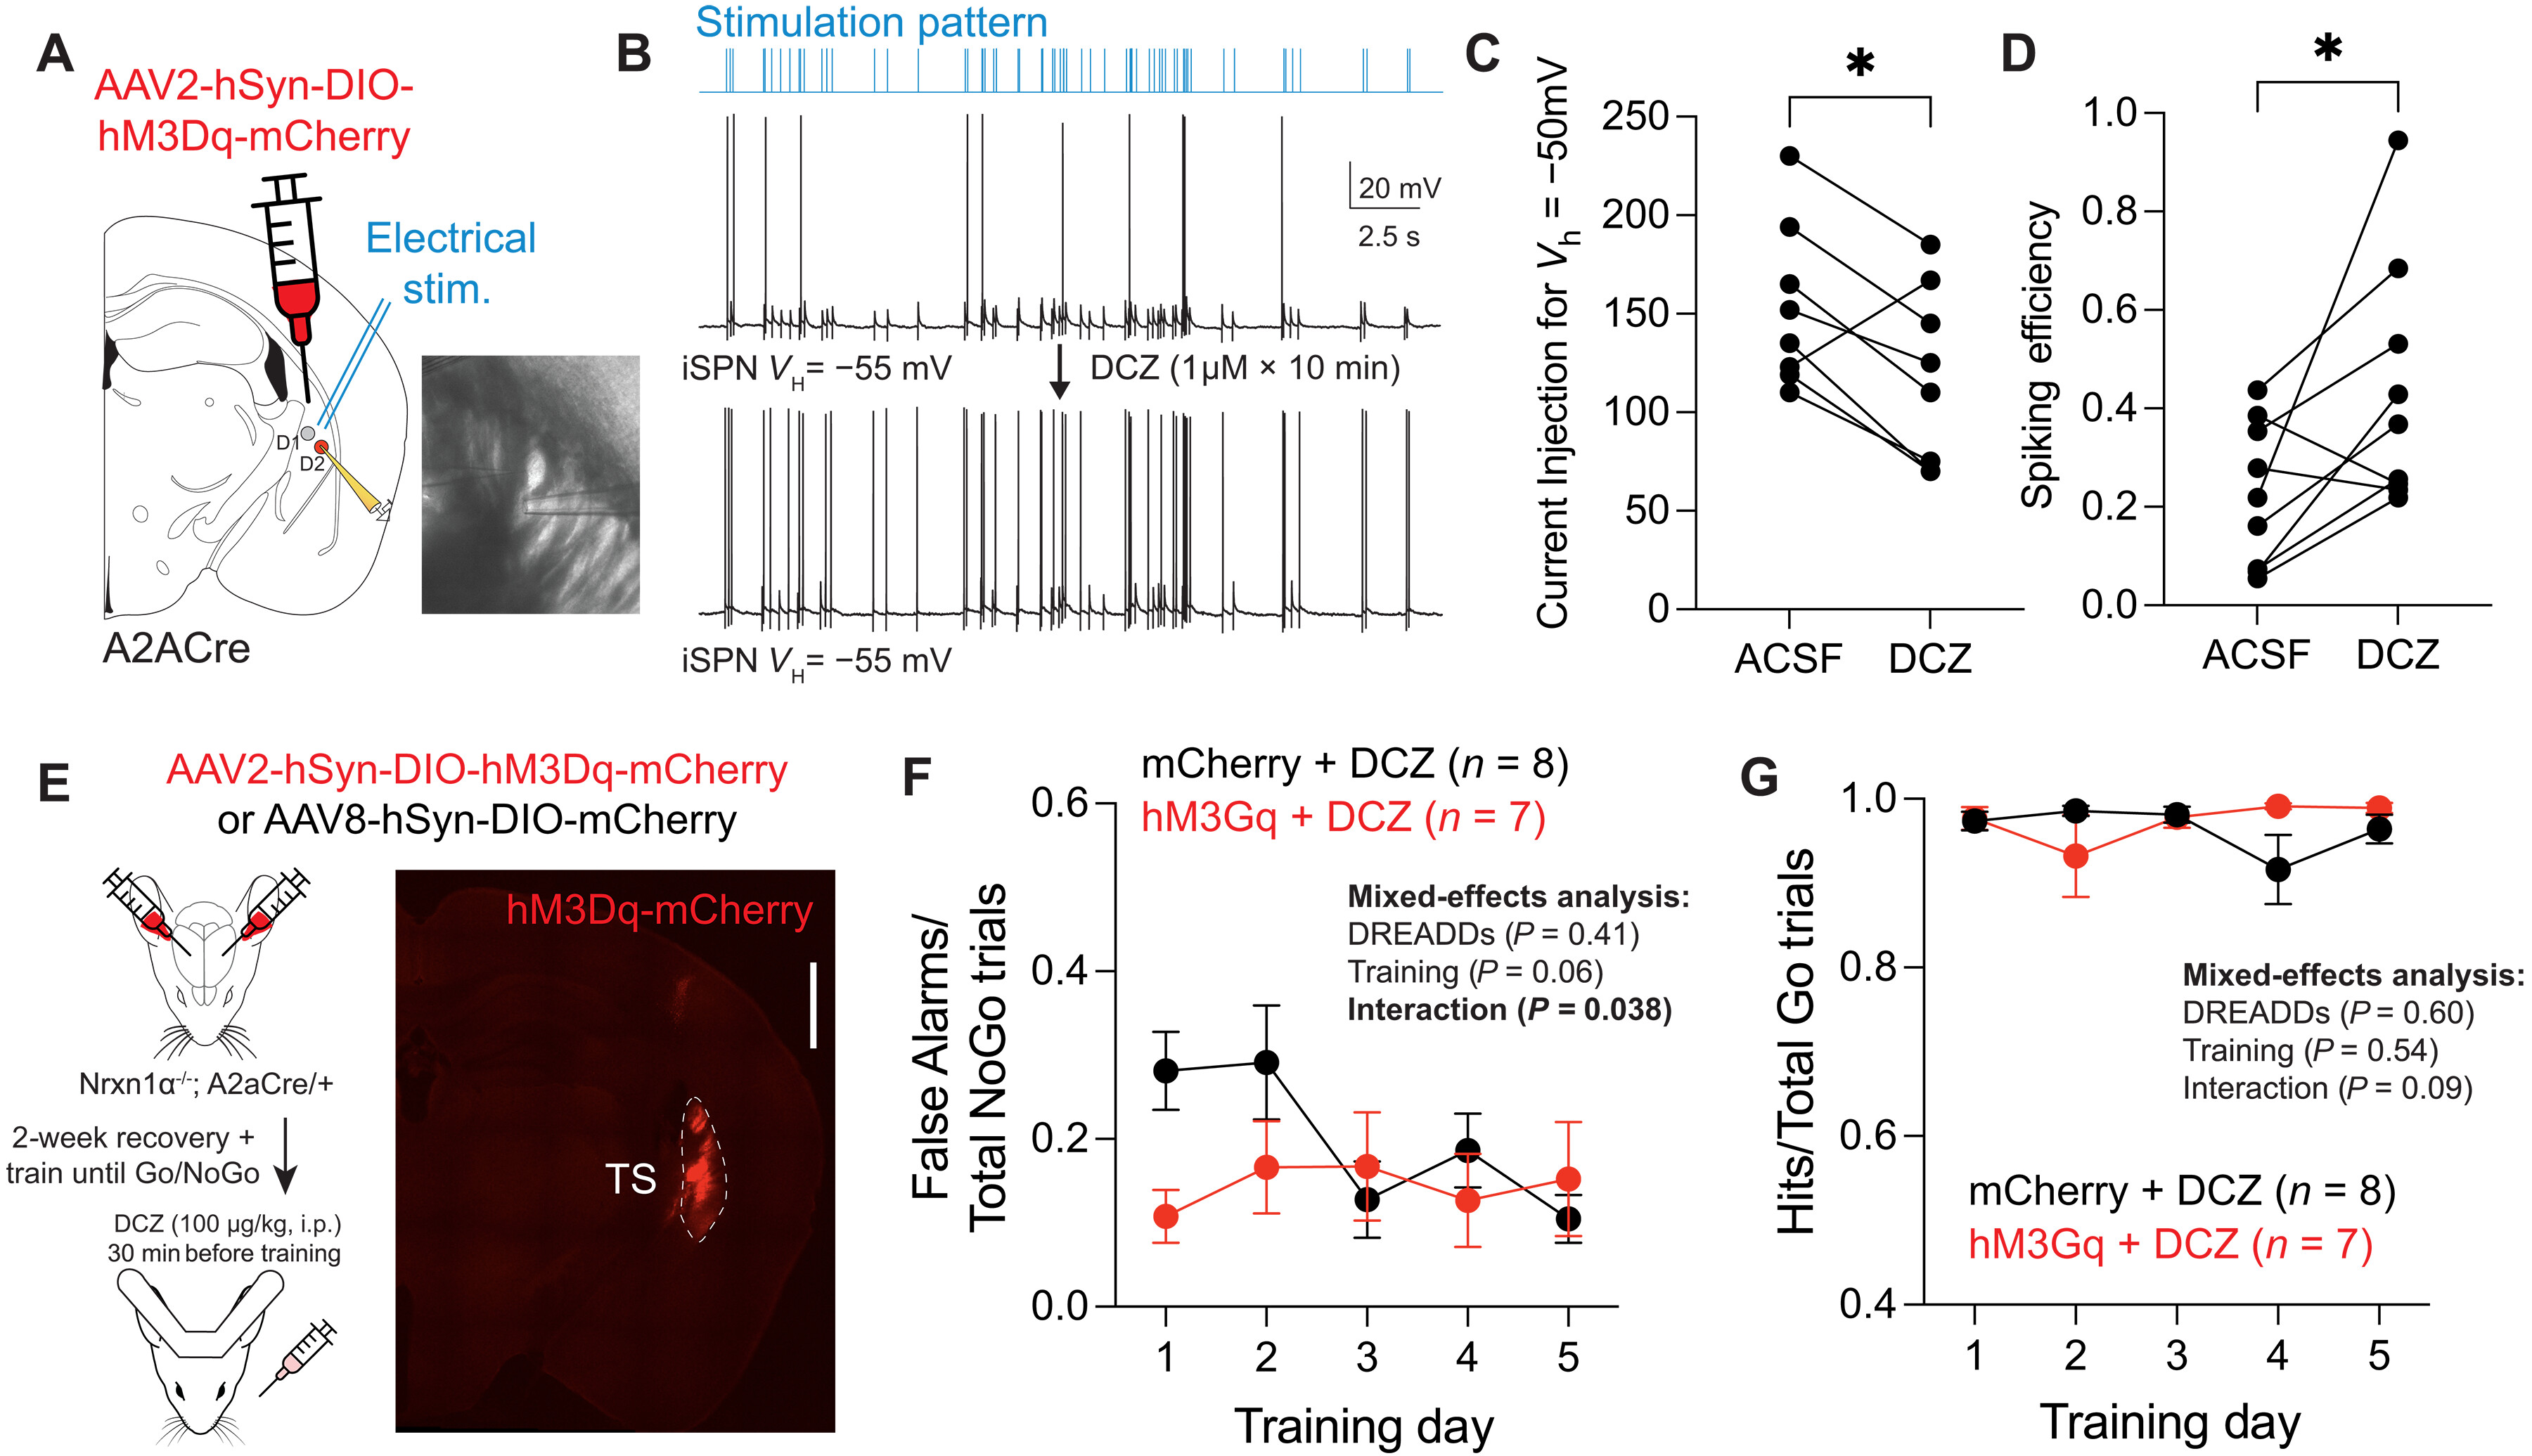
Для проверки гипотезы применили хемогенетику (технологию DREADD):
- С помощью микроинъекций вирусного вектора в хвост стриатума мышей с мутацией Nrxn1α доставили ген искусственного рецептора hM3Dq. Этот рецептор встраивается в мембрану только нейронов непрямого пути.
- Искусственный рецептор не реагирует ни на какие естественные молекулы организма, но избирательно активируется химическим соединением десхлороклозапином (DCZ).
- Связываясь с рецептором hM3Dq, молекулы DCZ вызывают умеренную деполяризацию мембраны нейрона, приближая ее электрический потенциал к порогу генерации импульса. Клетка становится гораздо более чувствительной к любым входящим сигналам.
Мышам с мутацией вводили микродозу DCZ за 30 минут до начала поведенческого тестирования.
Результаты подтвердили расчеты: под действием препарата мутантные животные показали резкое снижение числа ложных срабатываний на сигнал NoGo. Показатели их тормозного контроля и точности различения стимулов выровнялись до значений здоровых животных контрольной группы.
При этом препарат никак не повлиял на реакцию на целевой звук Go: животные продолжали безошибочно реагировать на него и получать воду.
Значение открытия для медицины
Исследование пенсильванских нейробиологов принципиально меняет понимание природы двигательной импульсивности и расстройств внимания.
Торможение действия в ответ на раздражитель — это не пассивное состояние покоя, а активный, непрерывный физиологический процесс. Для его поддержания необходима устойчивая генерация импульсов популяцией нейронов непрямого пути в сенсорных отделах стриатума. Если плотность синаптических контактов в этой зоне нарушена генетическими мутациями, система теряет способность удерживать паузу.
Сегодня большинство фармакологических подходов к лечению СДВГ основано на системном применении психостимуляторов и модуляторов обратного захвата дофамина и норадреналина. Эти препараты неизбирательно действуют на всю кору головного мозга и системный кровоток, что нередко сопровождается побочными эффектами со стороны сердечно-сосудистой и нервной систем.
Обнаружение локального подкоркового переключателя открывает возможность для разработки принципиально иной терапии. Воздействуя на специфические рецепторные группы в хвосте полосатого тела, фармакологи смогут точечно восстанавливать способность мозга фильтровать сенсорные сигналы и подавлять импульсивность, не вмешиваясь в глобальную работу коры больших полушарий.
Источник: Science Advances
0 комментариев
Добавить комментарий