Наш мозг состоит из двух разных органов: как эволюция объединила независимые нервные системы
Головной мозг человека выглядит как цельный орган. Кора больших полушарий анатомически переходит в подкорковые структуры, те продолжаются в средний мозг, переходят в ствол, а ствол соединяется со спинным мозгом. Из-за этого внешнего единообразия ученые на протяжении семидесяти лет считали, что весь мозг развивается из одной-единственной группы эмбриональных клеток.
В 1952 году нидерландский эмбриолог Питер Ньюкооп сформулировал базовую теорию развития нервной системы. По его гипотезе, в зародыше сначала появляется универсальная нервная ткань, которая по своим свойствам соответствует передним отделам мозга. Затем окружающие ткани начинают выделять химические вещества, концентрация которых плавно нарастает от будущей головы к хвосту. Под действием этих сигналов задняя часть исходной ткани постепенно перестраивается, превращаясь в ствол и спинной мозг. Из этой модели следовало, что любая ранняя клетка нервной системы способна дать начало любому отделу мозга — выбор зависит только от того, в какой точке химического градиента она случайно оказалась.
Исследование научной группы из Стэнфордского университета под руководством Кайла Ло опровергло эту теорию. Ученые выяснили, что мозг формируется не из единой ткани-предшественницы. С самого начала развития эмбриона существуют две параллельные, изолированные друг от друга популяции клеток. Первая группа создает исключительно передний и средний мозг. Вторая группа отвечает только за формирование заднего мозга — мозжечка, моста и продолговатого мозга.
Содержание
- Первые 48 часов дифференцировки
- Ошибка с хвостовыми сигналами: как на самом деле запускается задний мозг
- Генетический замок: почему клетки не способны сменить роль
- Доказательства на живых эмбрионах мышей
- Создание функциональных нейронов для медицины
- Эволюционный возраст: 550 миллионов лет
- Архитектура нервной системы
Первые 48 часов дифференцировки
Чтобы понять, как зарождается нервная ткань, биологи проследили за ранними этапами развития мышиных эмбрионов и человеческих плюрипотентных стволовых клеток. Плюрипотентные клетки — это исходные клетки раннего зародыша, способные превратиться в ткань любого органа тела.
В первую неделю развития зародыш проходит процесс гаструляции: однородная масса клеток разделяется на три первичных слоя:
- Энтодерму (из нее разовьются внутренние органы, включая кишечник и легкие);
- Мезодерму (источник мышц, костей и кровеносной системы);
- Эктодерму (слой, дающий начало коже и всей нервной системе).
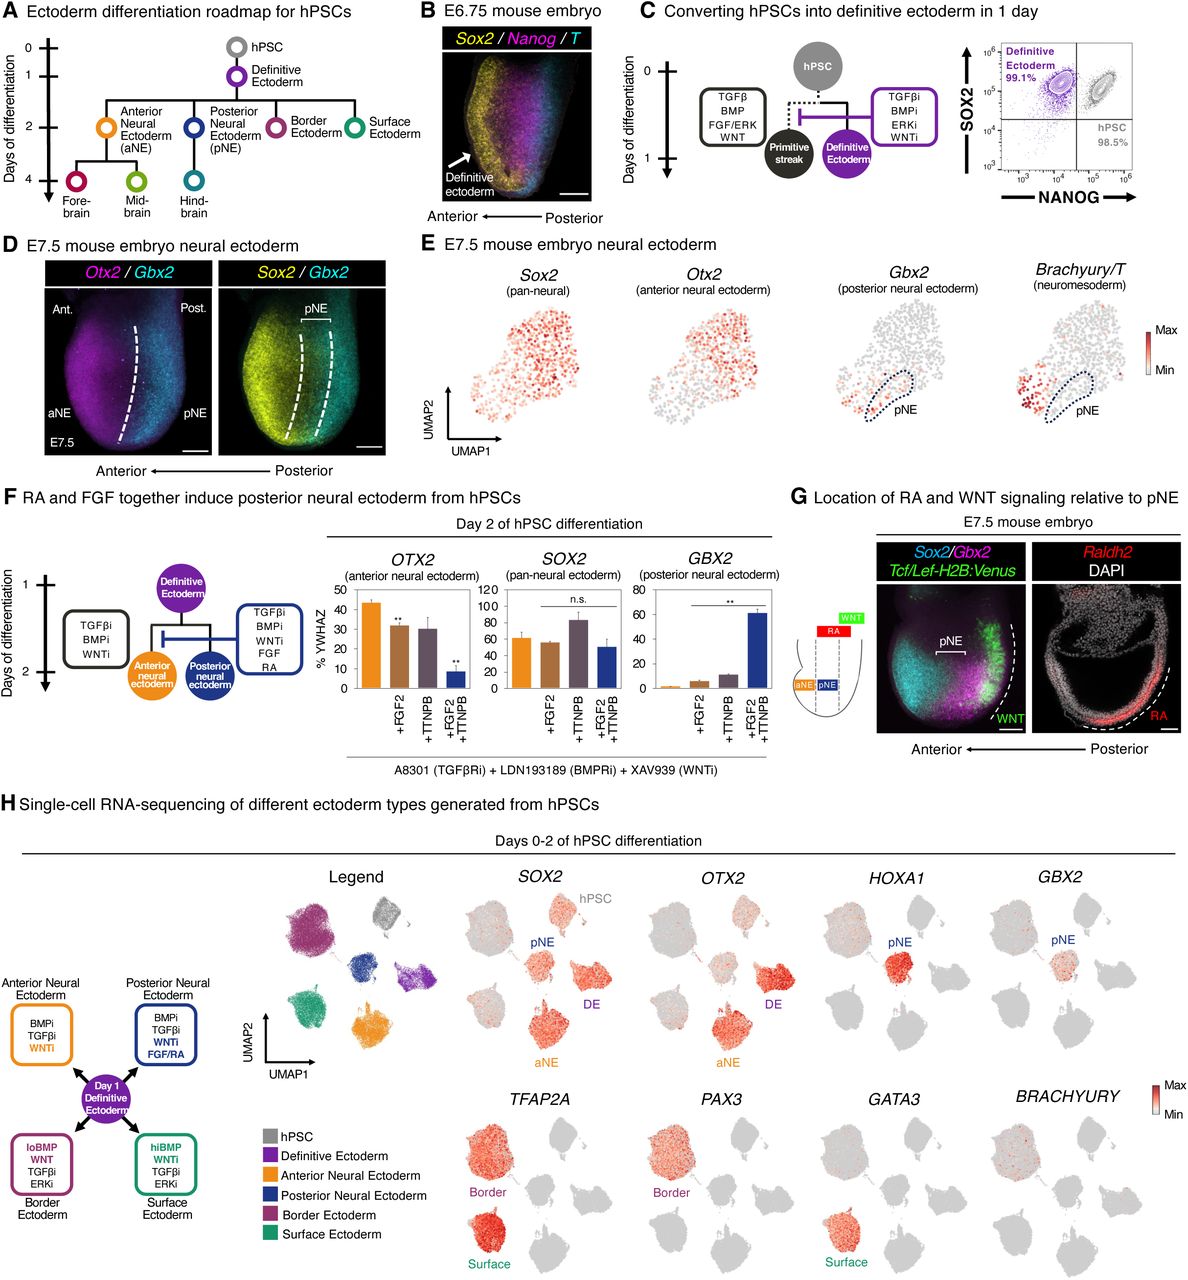
Авторы работы разработали способ, позволяющий точно воспроизвести этот процесс в лаборатории. Они воздействовали на стволовые клетки человека четырьмя химическими блокаторами сигнальных путей: BMP, TGF-β, FGF/ERK и WNT. За 24 часа клетки вышли из плюрипотентного состояния и превратились в чистую «дефинитивную» эктодерму. Эксперименты показали, что эти клетки потеряли способность становиться мышцами или кишечником: при добавлении стимулирующих веществ они больше не активировали гены мезодермы или энтодермы.
Однако на вторые сутки культивирования клетки дефинитивной эктодермы не стали общей нервной тканью. Вместо этого они разделились на две группы с взаимоисключающими генетическими характеристиками:
- Передняя нейроэктодерма: клетки начали синтезировать регуляторный белок OTX2 и полностью отключили ген GBX2. Эта популяция в будущем образует кору полушарий и средний мозг.
- Задняя нейроэктодерма: клетки, напротив, выключили ген OTX2 и активировали ген GBX2, а также набор генов семейства HOX. Из них образуется исключительно задний мозг.
Это разделение произошло всего за 48 часов от начала развития. В этот момент клетки еще даже не начали формировать специализированные нейрональные отростки и не экспрессировали классические маркеры зрелых нервных стволовых клеток, такие как белки PAX6 или SOX1. Выбор судьбы будущих отделов мозга состоялся задолго до анатомического обособления самих органов.
Ошибка с хвостовыми сигналами: как на самом деле запускается задний мозг
Многие годы попытки биологов вырастить в лаборатории клетки ствола мозга из стволовых клеток наталкивались на методические проблемы. Чтобы превратить стволовые клетки в кору больших полушарий, достаточно заблокировать пути BMP, TGF-β и WNT. Оставшись без этих сигналов, клетки по умолчанию развиваются в ткань переднего мозга.
Для получения клеток задней части нервной системы ученые традиционно активировали сигнальный каскад WNT. Считалось, что раз уровень белков WNT физиологически высок в задней части зародыша, то именно этот путь должен отвечать за появление ствола мозга.
Эксперименты группы Кайла Ло показали, что это представление было неверным. Добавление веществ, активирующих путь WNT, действительно стимулировало заднюю направленность развития, но уводило клетки мимо структур головного мозга. Под действием WNT клетки начинали вырабатывать белки BRACHYURY и CDX2 — маркеры спинного мозга и переходных нервно-мышечных клеток туловища.
Для получения заднего мозга требовалась принципиально другая комбинация:
- Сигнальный путь WNT необходимо полностью блокировать, иначе клетки превратятся в предшественники спинного мозга.
- Одновременно с блокировкой путей WNT, BMP и TGF-β к клеткам необходимо добавить два активирующих компонента: фактор роста фибробластов (FGF) и ретиноевую кислоту (вещество, производное витамина А).
Только совместное присутствие FGF и ретиноевой кислоты привело к активации гена GBX2 и подавлению гена OTX2. Ни один из этих факторов по отдельности не давал нужного результата. Таким образом, ученые определили точный биохимический код, который зародыш использует для запуска программы заднего мозга в первые двое суток развития.
Генетический замок: почему клетки не способны сменить роль
Определив две популяции клеток, исследователи проверили, насколько жестко зафиксирована их судьба. Способны ли клетки передней нейроэктодермы перестроиться в структуры заднего мозга, если изменить химические сигналы в окружающей среде, и наоборот?
Биологи провели перекрестные тесты:
- Клетки передней нейроэктодермы на вторые сутки дифференцировки поместили в условия, предназначенные для создания заднего мозга (с добавлением FGF и стимуляторов WNT).
- Клетки задней нейроэктодермы перенесли в среду, стимулирующую развитие переднего мозга (с блокаторами сигналов дифференцировки).
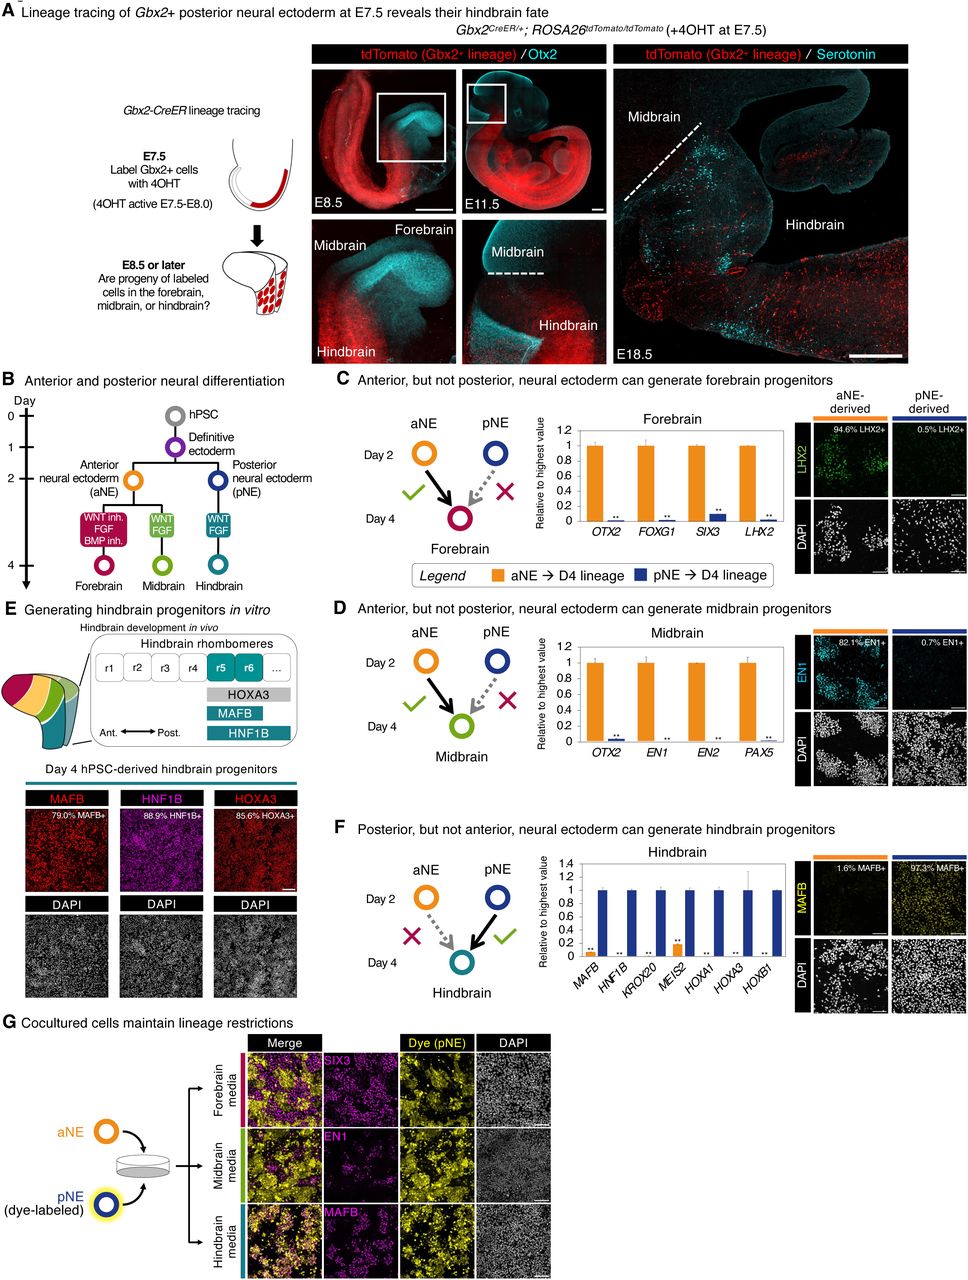
Ни одна из популяций не изменила своей специализации. Клетки задней нейроэктодермы проигнорировали сигналы переднего мозга: они не активировали гены SIX3 и FOXG1, отвечающие за построение полушарий. В свою очередь, клетки передней нейроэктодермы не включили гены HOXA1, HOXA3 и MAFB, необходимые для заднего мозга.
Клетки не поддались влиянию среды даже тогда, когда исследователи смешали обе популяции в соотношении 1:1 в одной емкости. В биологии развития известен феномен «эффекта сообщества», при котором большая группа клеток одного типа способна подчинить себе соседние клетки другого типа за счет выделения собственных регуляторных белков. Однако даже при непосредственном физическом контакте клетки переднего и заднего мозга сохранили исходную специализацию.
Причина этой устойчивости открылась при анализе пространственной организации ДНК методом OmniATAC-seq. Этот метод позволяет определить, какие участки генома физически доступны для считывания информации, а какие плотно свернуты вокруг ядерных белков и заблокированы.
Анализ показал:
- В клетках передней нейроэктодермы регуляторные зоны генов заднего мозга (в частности, область генов HOX) спрессованы и закрыты. Факторы транскрипции не могут связаться с ДНК. При этом участки, управляющие развитием коры (OTX2, LHX2), полностью открыты.
- В клетках задней нейроэктодермы открытыми оказались области связывания факторов HNF1B, MAFB и HOX, а участки генов переднего мозга заблокированы.
Физическая доступность участков ДНК расходится между популяциями уже на 48-м часу развития. Клетка не может ответить на внешний химический сигнал, потому что нужные фрагменты генома закрыты на уровне структуры хроматина.
Доказательства на живых эмбрионах мышей
Культуры клеток в лаборатории не всегда в точности повторяют процессы внутри живого организма. Поэтому исследователи подтвердили свои выводы на эмбрионах мышей, использовав метод избирательного генетического мечения (lineage tracing).
Биологи скрестили мышей линии Gbx2-CreER с репортерной линией ROSA26-tdTomato. В геном этих животных встроена конструкция: фермент Cre активируется только в присутствии синтетического препарата 4-гидрокситамоксифена (4OHT) и только в тех клетках, где работает ген Gbx2. После активации фермент удаляет защитную последовательность ДНК, и клетка навсегда начинает производить красный светящийся белок tdTomato. Это свойство передается всем ее потомкам при делении.
Препарат 4OHT быстро выводится из организма, обеспечивая окно мечения длительностью всего около 12 часов. Исследователи ввели препарат беременным самкам на стадии 7,5 суток эмбрионального развития (E7.5), чтобы пометить исключительно формирующуюся заднюю нейроэктодерму.
Развитие эмбрионов проследили на стадиях 8,5, 9,5 и 18,5 суток (за день до рождения мышат):
- Все меченые клетки и их потомки обнаружились строго в пределах заднего мозга. Они участвовали в формировании мозжечка, ядер черепных нервов и продолговатого мозга.
- В переднем и среднем мозге не было найдено ни одной светящейся клетки. Пограничная линия распределения красного белка точно совпала с границей между средним и задним мозгом, определяемой по расположению серотониновых нейронов.
В дополнительном эксперименте авторы применили репортерную систему Confetti. Она случайным образом окрашивает отдельные эмбриональные клетки нейроэктодермы одним из трех цветов (красным, желтым или голубым). Ученые проанализировали 494 клеточных кластера в 16 эмбрионах. Около 63% кланеров состояли из клеток, находившихся исключительно в переднем и среднем мозге. 33% кластеров располагались строго в заднем мозге. Менее 4,5% клеточных групп находились на границе между этими зонами.
Это подтвердило: деление нервной ткани на два независимых источника — это реальный биологический процесс, происходящий в развивающемся организме млекопитающего.
Создание функциональных нейронов для медицины
Задний мозг управляет автономными процессами жизнеобеспечения: дыханием, сердечным ритмом, артериальным давлением, сном и глотательным рефлексом. Патологии этой области приводят к тяжелым последствиям. Например, детская диффузная глиома моста (DIPG) неизлечима и приводит к гибели именно из-за разрушения жизненно важных центров ствола.
При боковом амиотрофическом склерозе (БАС) и спинальной мышечной атрофии (СМА) погибают двигательные нейроны, включая те, что расположены в заднем мозге. Они управляют мышцами лица, языка, глотки и шеи через волокна черепных нервов. Когда эти нейроны дегенерируют, пациент теряет способность глотать. Это приводит к попаданию слюны и пищи в дыхательные пути, воспалению легких и смерти от удушья.
Двигательные нейроны, иннервирующие глотку через девятую пару черепных нервов (языкоглоточный нерв), развиваются в эмбрионе из строго определенных сегментов заднего мозга — ромбомеров 5 и 6. До сих пор получить эти конкретные клетки человека в лаборатории не удавалось, поскольку стандартные протоколы дифференцировки вели клетки по пути переднего мозга.
Используя знание о задней нейроэктодерме, исследователи создали пошаговую методику:
- За первые 2 дня из стволовых клеток получили заднюю нейроэктодерму (GBX2+).
- С 2 по 4 день клетки обрабатывали фактором FGF2 и умеренными дозами стимулятора WNT, что привело к появлению клеток-предшественников ромбомеров 5 и 6, несущих маркеры MAFB, HNF1B и HOXA3.
- С 4 по 7 день клетки разделили на спинные (сенсорные) и брюшные (двигательные) предшественники, регулируя баланс сигналов Hedgehog и WNT.
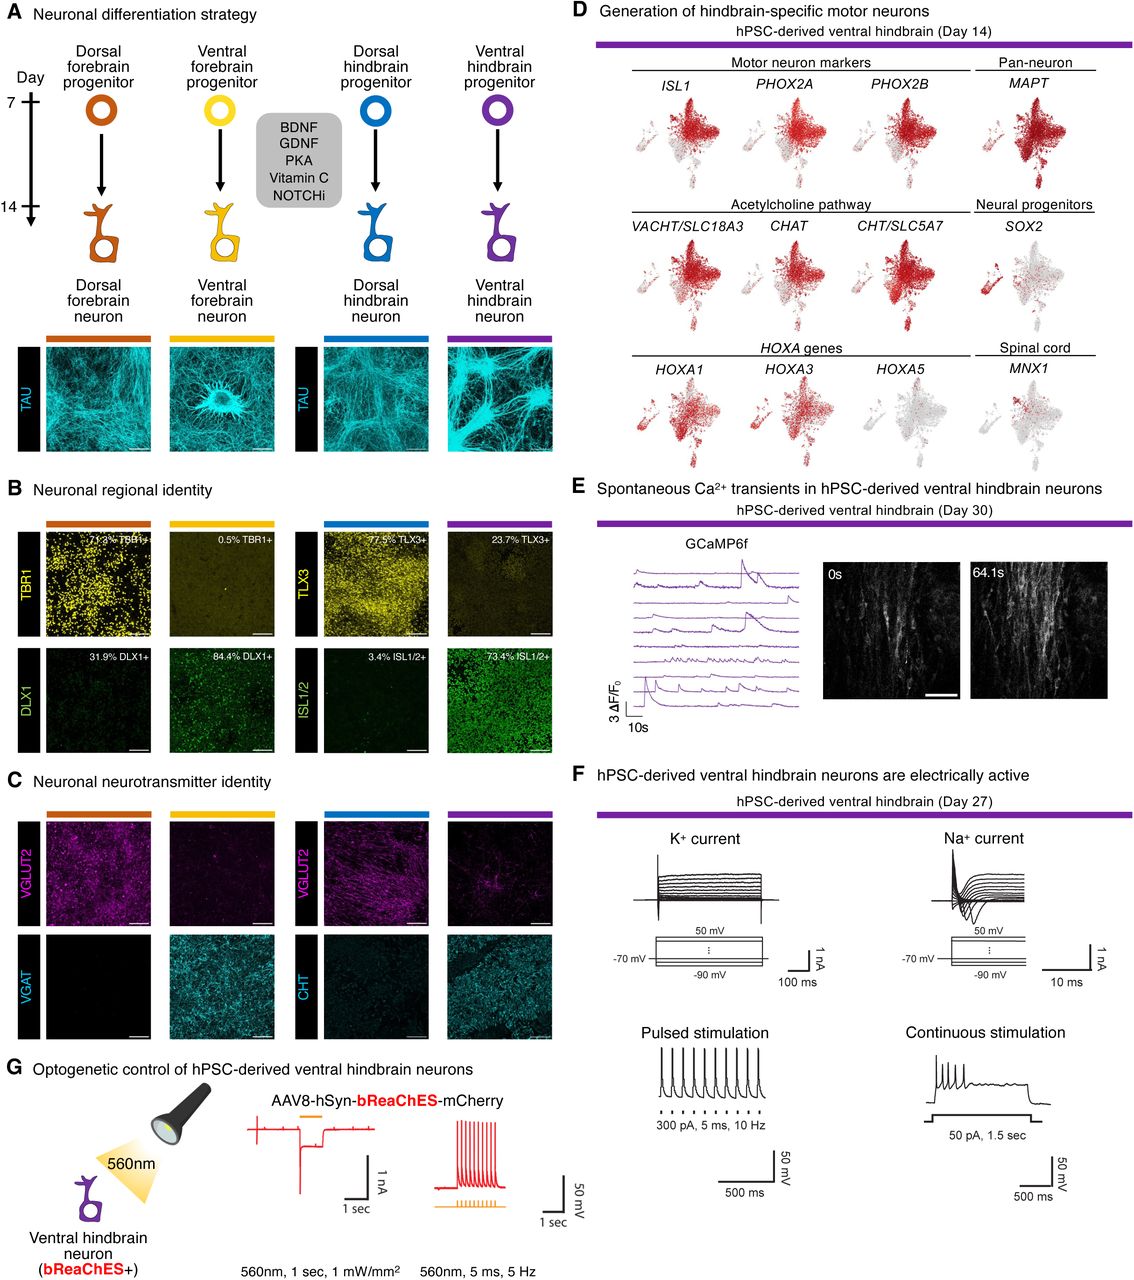
- К 14 дню под действием нейротрофических факторов (BDNF, GDNF) и блокатора пути NOTCH сформировались зрелые двигательные нейроны заднего мозга.
Полученные клетки экспрессировали белок ISL1, специфические маркеры ромбомеров 5/6 (PHOX2A, PHOX2B, HOXA1, HOXA3) и ферменты для синтеза нейромедиатора ацетилхолина (CHAT, VACHT). При этом они не содержали белков спинного мозга (HOXA5, MNX1), что подтвердило точность их стволового происхождения.
Электрофизиологические измерения показали, что выращенные нейроны биологически активны:
- Они генерировали электрические потенциалы действия при ступенчатой подаче тока.
- Датчик GCaMP6f зарегистрировал регулярные спонтанные колебания концентрации ионов кальция в цитоплазме, что характерно для функциональных синаптических сетей.
- При помощи вирусного вектора в клетки встроили ген светочувствительного ионного канала bReaChES. Освещение импульсами света с длиной волны 560 нанометров вызывало мгновенное возбуждение нейронов и генерацию серии электрических импульсов.
Это дает исследователям клеточную модель для изучения механизмов нарушения глотания при БАС и СМА и скрининга лекарств непосредственно на клетках человека.
Эволюционный возраст: 550 миллионов лет
Чтобы выяснить, когда возникло разделение нейроэктодермы на передний и задний отделы, авторы изучили генетические данные других организмов.
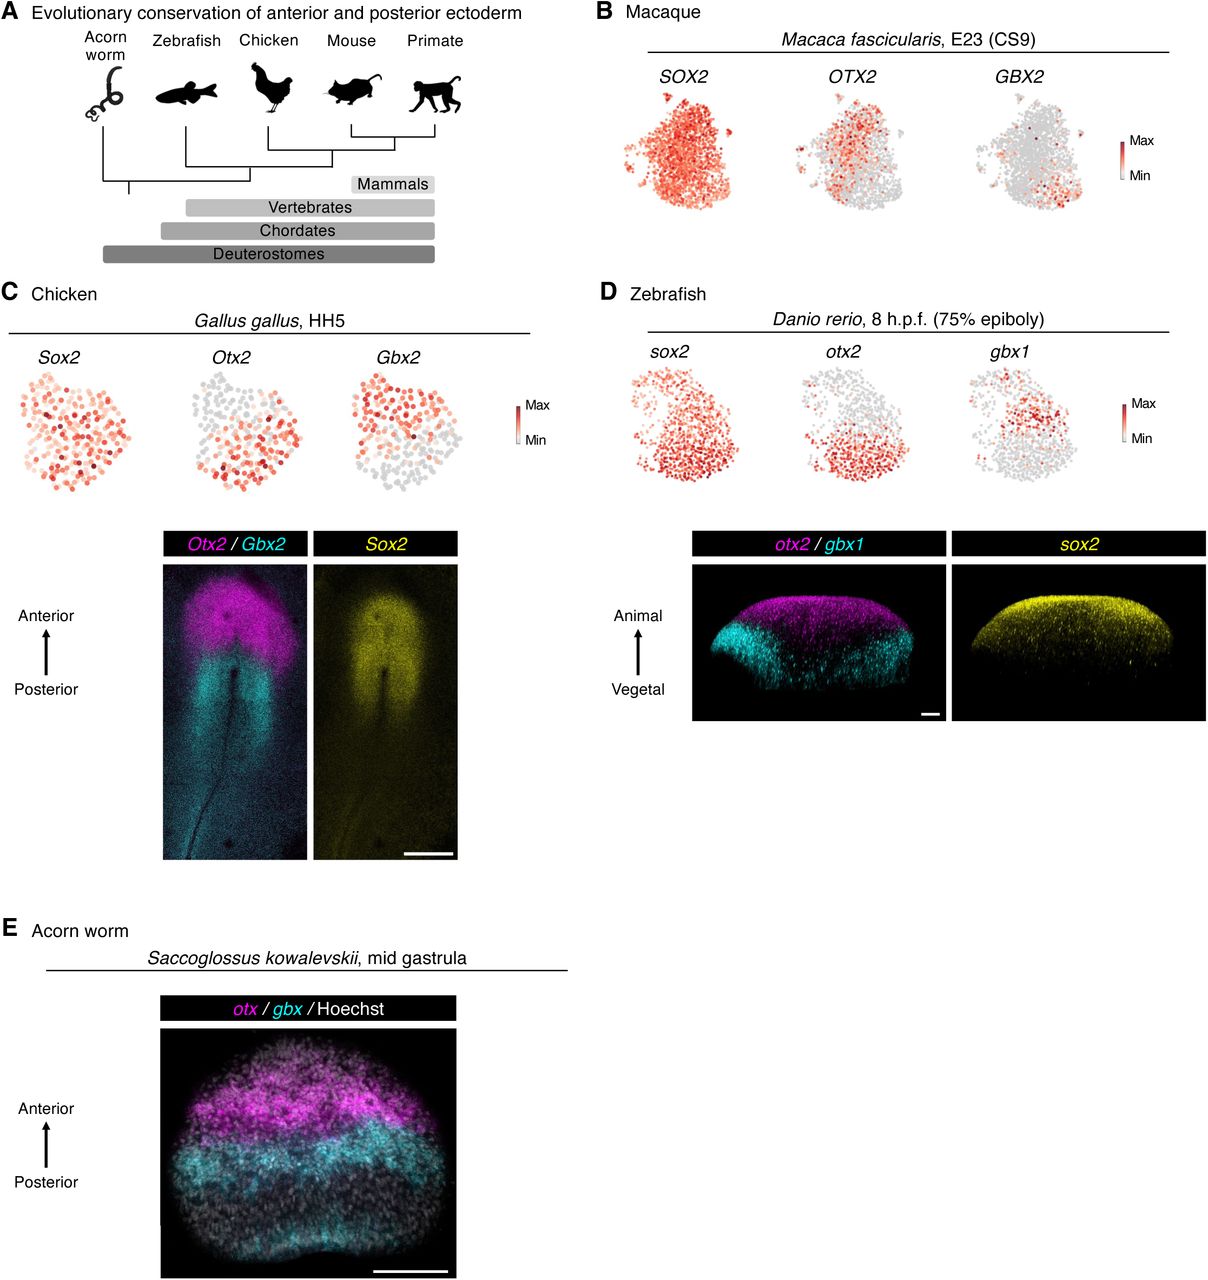
Анализ эмбрионов позвоночных — макак, цыплят и рыбок данио-рерио — показал, что у всех этих видов нейроэктодерма на стадии гаструляции разделена на две части: переднюю (Otx2+) и заднюю (Gbx2+ или Gbx1+).
Затем ученые обратились к организму, стоящему на эволюционном древе гораздо дальше от млекопитающих, — желудевому червю Saccoglossus kowalevskii. Это морское донное животное относится к типу полухордовых. Полухордовые являются эволюционными родственниками хордовых животных, но их линии разошлись примерно 550-600 миллионов лет назад, в начале кембрийского периода.
У желудевого червя нет спинного или головного мозга: его нервная система представлена сетчатым сплетением нервных клеток под наружным слоем кожи. Несмотря на это, окрашивание эмбрионов червя на стадии гаструлы показало четкое разделение:
- Передняя зона наружного слоя клеток вырабатывает регуляторный фактор otx;
- Задняя зона наружного слоя экспрессирует фактор gbx.
Граница между зонами экспрессии этих генов четко выражена, и клетки двух зон не смешиваются. Это означает, что механизм разделения будущей нервной ткани на два независимых пространственных домена сформировался у общего предка всех вторичноротых животных еще до того, как в эволюции возникли череп, позвоночник и централизованный головной мозг.
Архитектура нервной системы
Результаты исследования меняют фундаментальное понимание строения нервной системы позвоночных. Ранее эмбриология уже доказала, что спинной мозг отделен по своему происхождению от головного: спинной мозг возникает из популяции так называемых нейромезодермальных клеток, которые одновременно служат источником для скелетных мышц спины.
Новая работа показывает, что и сам головной мозг не происходит из одного источника. Центральная нервная система образуется в результате пространственного соединения трех независимых эмбриональных компонентов:
- Передней нейроэктодермы (дает начало коре больших полушарий, базальным ядрам, гипоталамусу и среднему мозгу);
- Задней нейроэктодермы (формирует мост, мозжечок и продолговатый мозг);
- Нейромезодермы (формирует спинной мозг).
Похожий принцип организации известен для человеческого сердца. Оно также развивается не из одной мышечной закладки, а из двух независимых зон — первого и второго сердечных полей, которые в процессе развития объединяются в единый орган с несколькими камерами.
Анатомическая непрерывность мозга взрослого человека — это результат слияния клеточных систем, генетически изолированных друг от друга с первых дней развития зародыша. Понимание этого разделения и знание точных сигнальных путей каждой зоны позволяет воспроизводить любые типы нервных клеток человека для фундаментальных исследований и заместительной клеточной терапии.
Источник: biorxiv
0 комментариев
Добавить комментарий