Мы неправильно понимали, как растут ткани: первое 4D-картирование органа опровергло базовые теории
Изучение развития органов в эмбриогенезе всегда упиралось в методический барьер: исследователям необходимо одновременно отслеживать трехмерную структуру ткани и изменения в работе генов во времени.
Классические методы биологии заставляли идти на компромисс. Оптическая микроскопия живых тканей позволяет наблюдать за движением клеток, но не дает измерить активность сотен генов одновременно. Одноклеточное секвенирование РНК подробно описывает молекулярные профили, но требует полного растворения ткани, что уничтожает информацию о расположении клеток в пространстве. Стандартная пространственная транскриптомика работает с ультратонкими срезами толщиной от 5 до 10 микрометров. Если изучаемый орган глубже, изогнут в пространстве и не имеет строгой осевой симметрии, восстановить его объемную структуру по плоским срезам технически невозможно.
Исследователи из Университета Джонса Хопкинса разработали метод, объединивший глубокое химическое просветление ткани, пространственное считывание сотен генов и алгоритмический анализ времени. В качестве модели авторы использовали кожу новорожденных мышей и реконструировали полный процесс сборки волосяного фолликула в четырех измерениях (три пространственные координаты и время развития) на основе одного неподвижного блока ткани.
Результаты исследования опубликованы в журнале Cell.
Содержание
Принцип пространственного псевдовремени
Волосяной фолликул — это автономный орган млекопитающих, который уходит вглубь дермы на 200-400 микрометров. В его формировании участвуют клетки сразу трех зародышевых листков:
- эктодерма дает начало кератиноцитам, формирующим наружные оболочки и сам стержень волоса;
- мезенхима дермы формирует фибробласты соединительнотканной оболочки и дермальный сосочек, который служит управляющим центром роста;
- нервный гребень поставляет клетки-меланоциты, отвечающие за выработку пигмента.
Ключевая особенность развития волосяного покрова заключается в его асинхронности. Фолликулы закладываются в коже не одновременно, а последовательными волнами во время эмбрионального развития (на 14-й, 16-й и 18-й дни у мышей). По этой причине в любом участке кожи новорожденного животного одновременно находятся сотни фолликулов на самых разных стадиях созревания: от ранних скоплений клеток до зрелых структур с готовым стержнем волоса.
Исследователи использовали этот естественный возрастной разброс. Если измерить активность генов в каждом отдельном фолликуле внутри одного блока ткани, их можно алгоритмически упорядочить по степени молекулярной зрелости. Этот подход получил название пространственного псевдовремени. Он исключает необходимость брать образцы у сотен эмбрионов в разные дни беременности и устраняет погрешности, возникающие из-за индивидуальных различий между животными.
Технология 3DEEP: оптическое просветление через удаление ДНК
Главной физической преградой для считывания молекулярной информации в объеме ткани была ее оптическая плотность и низкая проницаемость для ферментов и зондов. В стандартных условиях молекулярные зонды не могут проникнуть глубже нескольких десятков микрометров: в центре образца толщиной 400 микрометров детекция целевых молекул РНК падала почти в 100 раз по сравнению с поверхностью.
Авторы установили, что основным барьером для диффузии реагентов выступает плотно упакованная геномная ДНК клеточных ядер. Она физически блокирует доступ к внутренним структурам и неспецифически связывает вводимые синтетические зонды.
Для решения этой проблемы ученые создали технологический протокол 3DEEP (3D DNase-Enhanced Expression Profiling):
- Ферментативная очистка от ДНК. Ткань обрабатывают ферментом дезоксирибонуклеазой I (DNase I). Фермент расщепляет и вымывает ядерную ДНК, оставляя молекулы матричной РНК (мРНК) неповрежденными.
- Фиксация в гидрогеле. Образец пропитывают мономерами акриламида с добавлением сшивающего агента и полимеризуют. Молекулы мРНК ковалентно пришиваются к образовавшейся гидрогелевой сетке, сохраняя свои координаты в пространстве.
- Ферментативный клиренс белков и липидов. Собственные белки ткани расщепляют протеиназой K, а липиды экстрагируют детергентом SDS. В результате ткань становится оптически прозрачной, сохраняя форму за счет полимерного каркаса с иммобилизованной РНК.
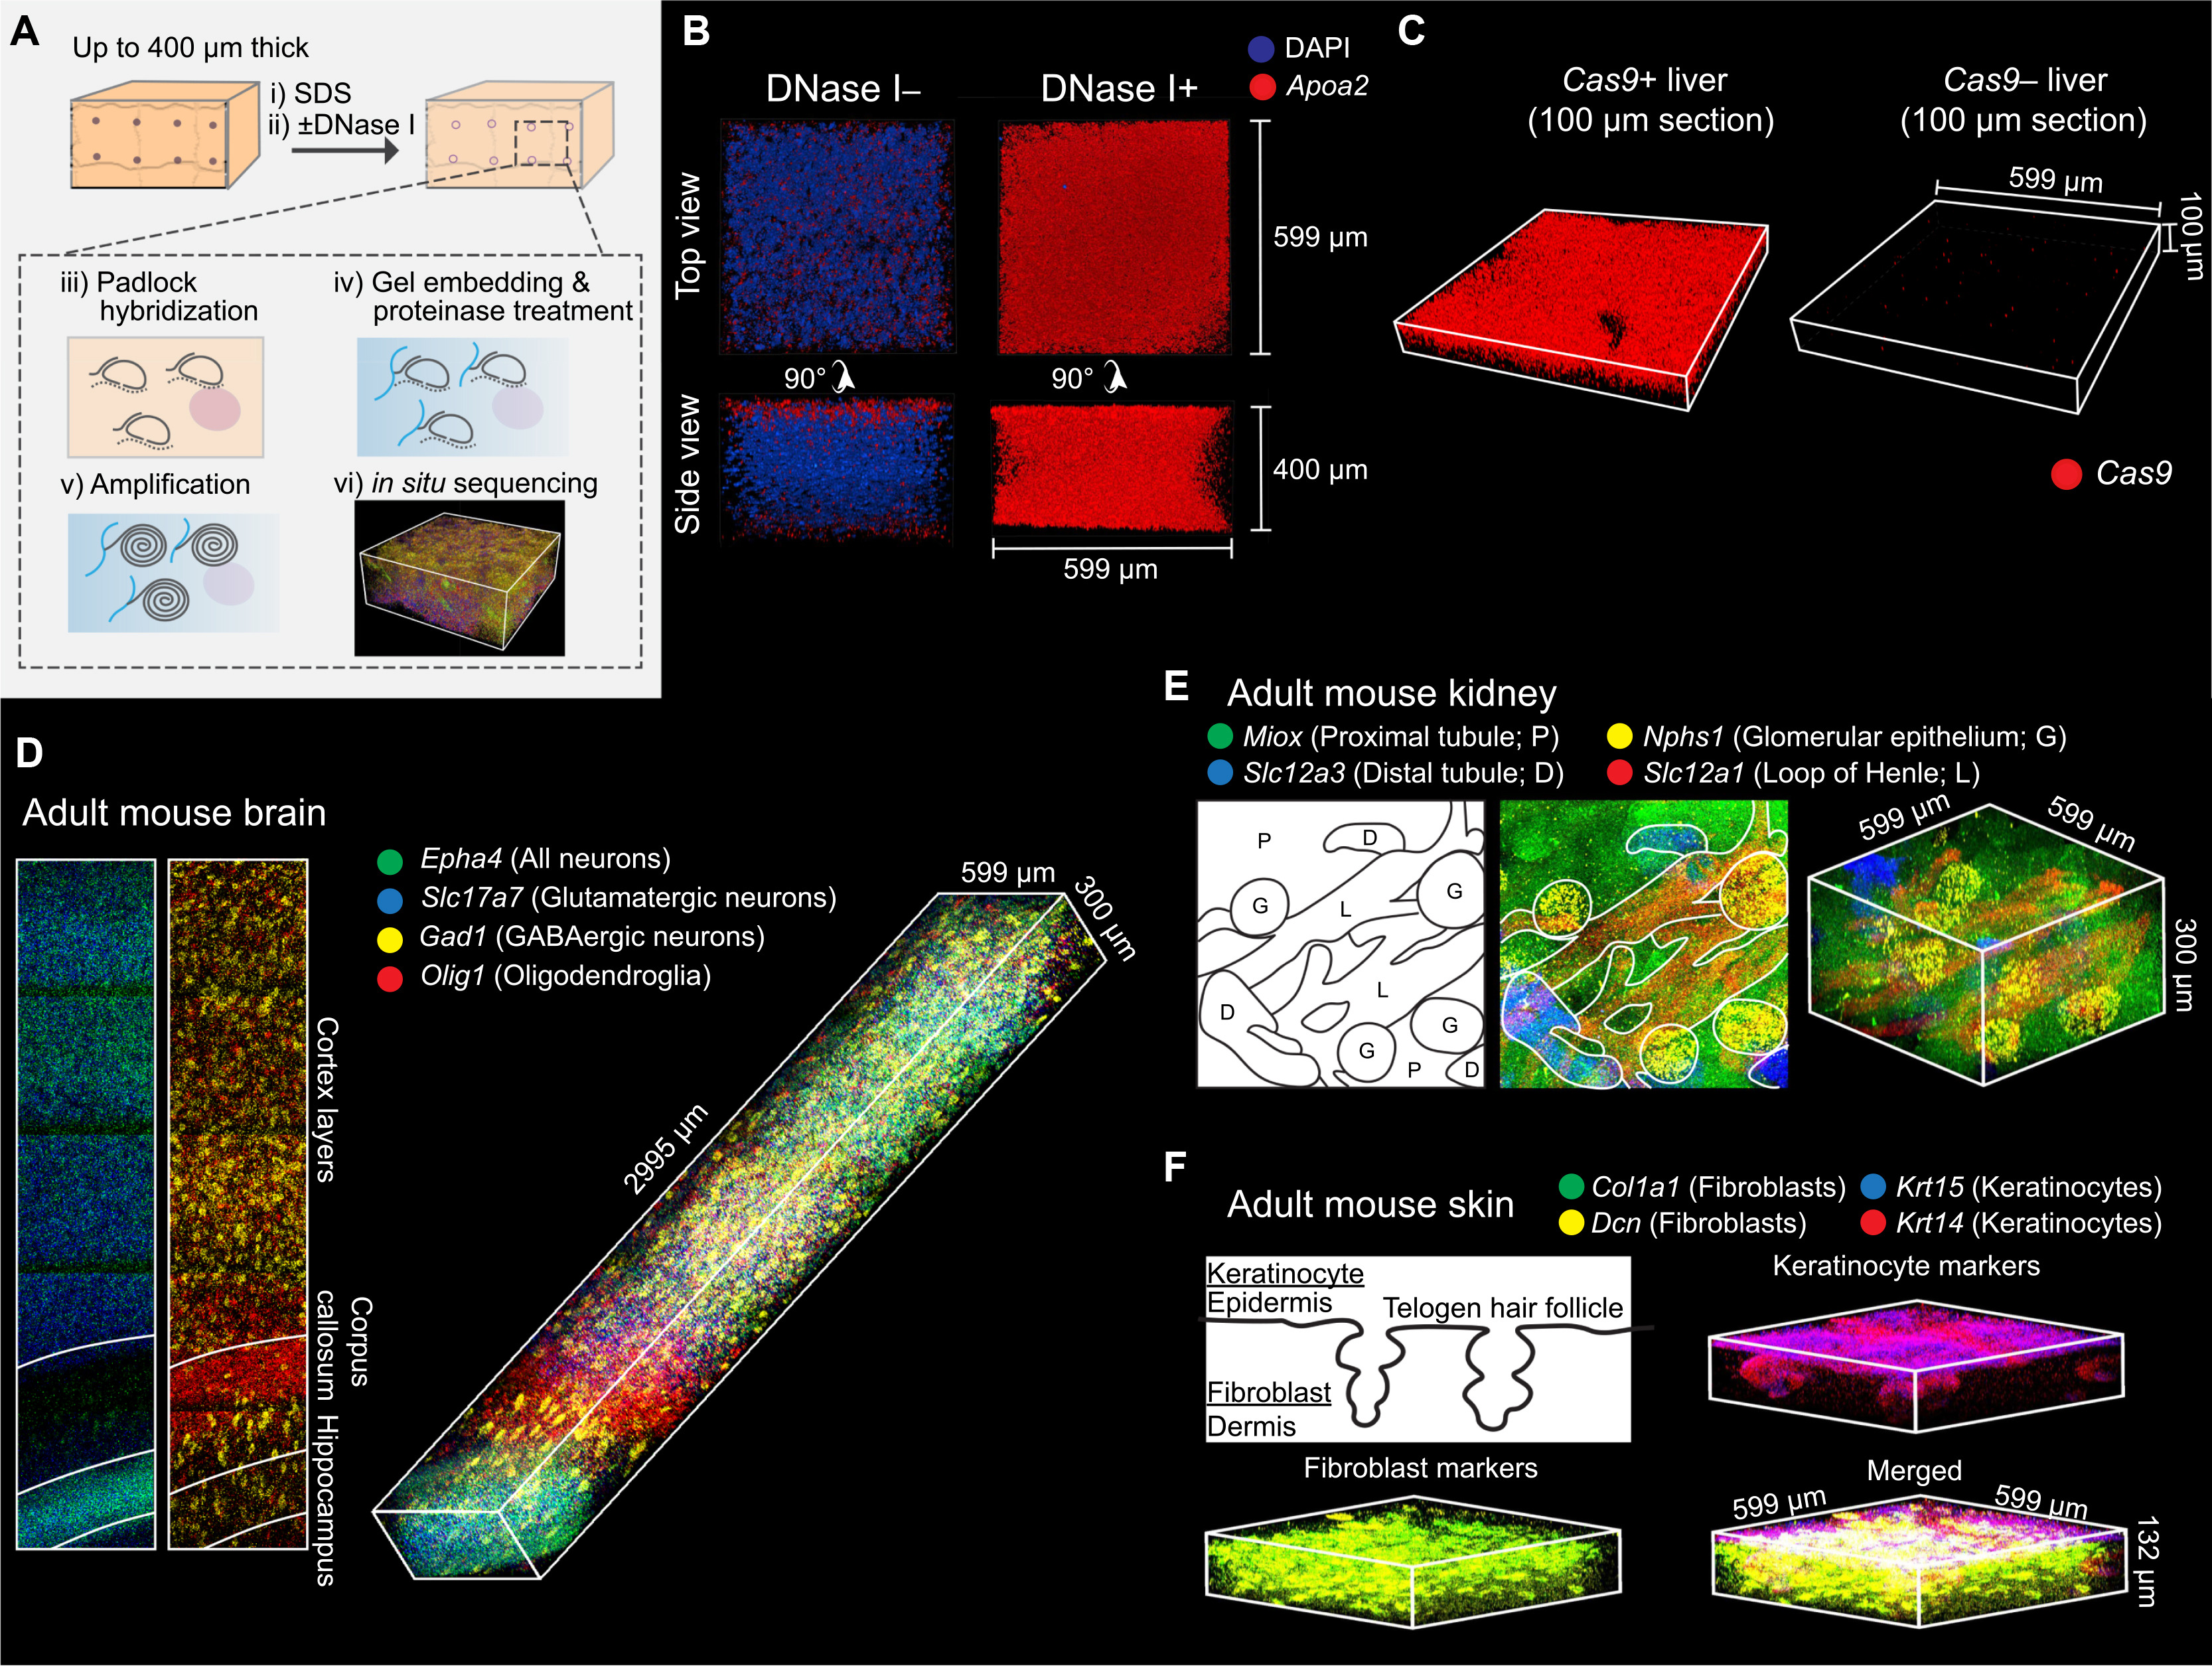
Удаление ДНК снизило перепад уровня флуоресцентного сигнала между поверхностью и центром 400-микрометрового среза со стократного до двукратного, обеспечив отношение сигнал/шум выше 7 единиц.
Для детекции генов авторы использовали гибридизационное секвенирование in situ. К молекулам целевых РНК присоединяли кольцевые ДНК-зонды. С помощью полимеразы Phi29 запускали реакцию катящегося кольца, создавая в точке нахождения каждой РНК плотный ДНК-ампликон с множеством повторяющихся участков.
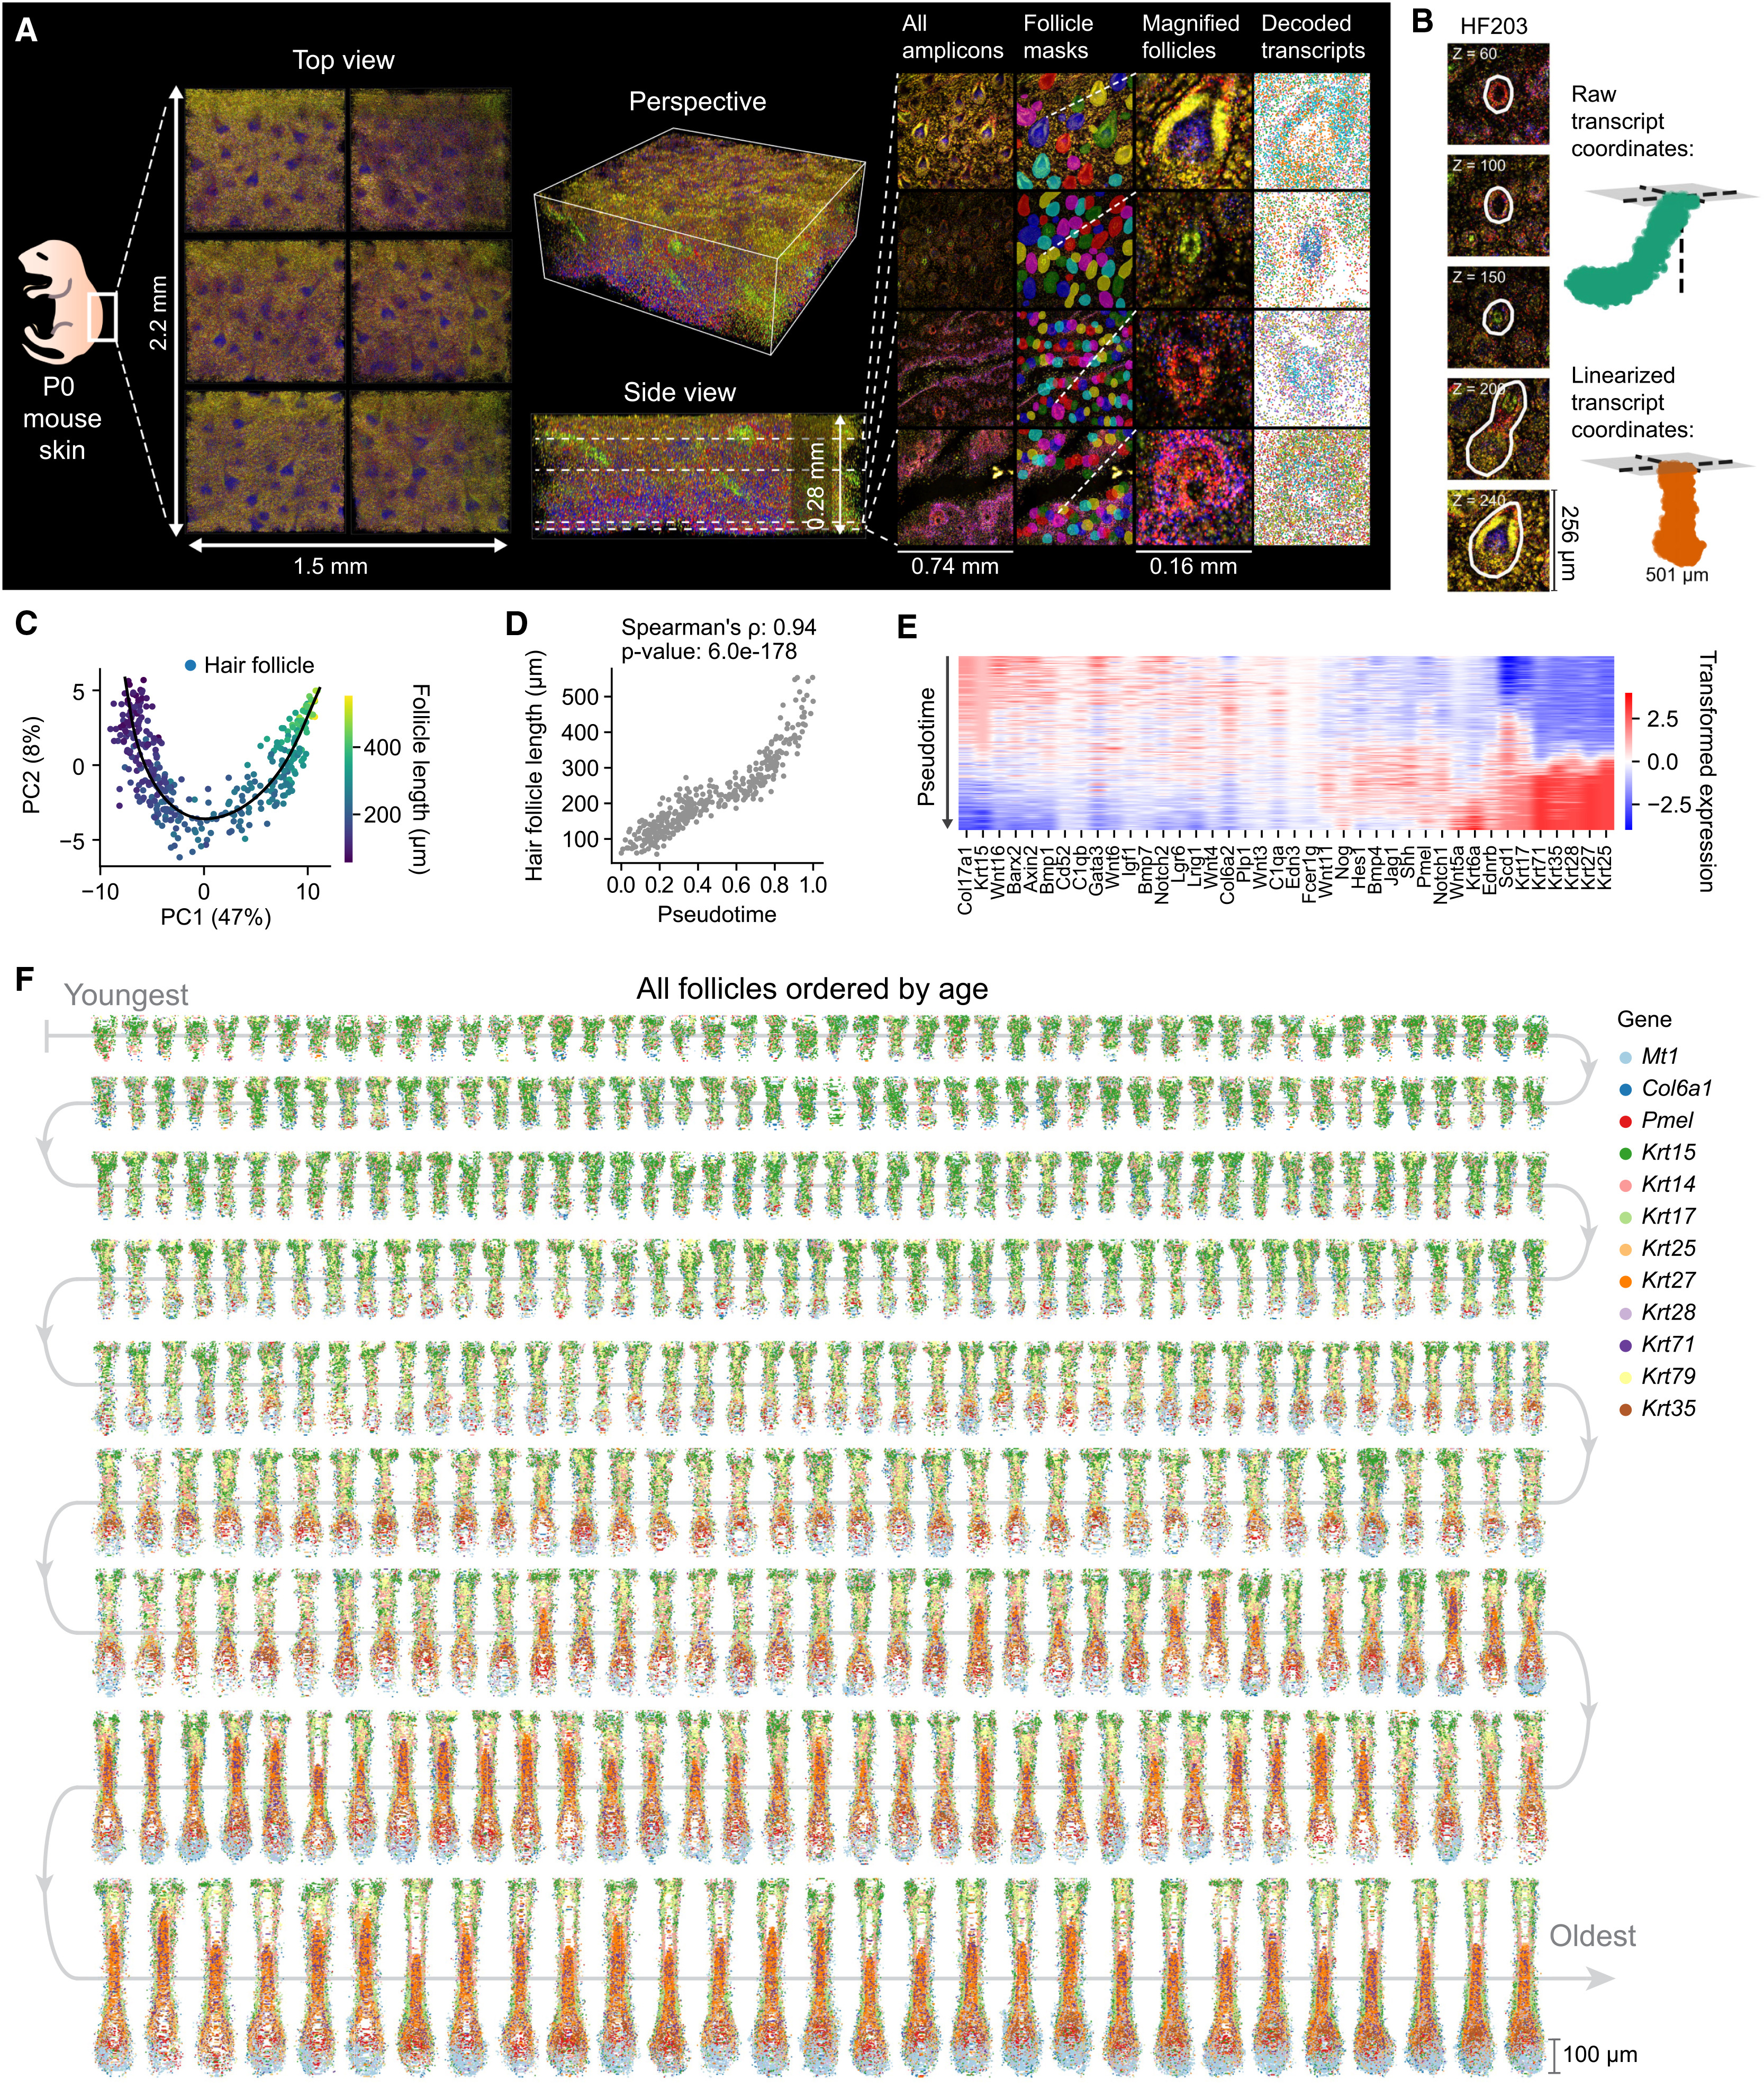
Идентификацию проводили в пять этапов последовательной гибридизации с флуоресцентными зондами четырех цветов. Для расшифровки оптических кодов применили сверточную нейросеть, обученную компенсировать оптические аберрации на большой глубине. Метод позволил картировать 23,9 миллиона молекул РНК для 228 ключевых генов в блоке кожи объемом 2,2 x 2,2 x 0,3 мм, изолировав 261 неповрежденный волосяной фолликул и более 378 тысяч отдельных клеток.
Алгоритмическая сборка временной шкалы
Волосяные фолликулы растут в коже под углом и изгибаются по мере удлинения. Чтобы корректно сопоставлять разные фолликулы, исследователи нормализовали их пространственные координаты:
- Границы структур выделили на основе плотности экспрессии кератиновых генов алгоритмом Baysor;
- С помощью сплайн-трансформации тонких пластин изогнутые трехмерные координаты каждого фолликула преобразовали в прямой цилиндр вдоль центральной оси Z, зафиксировав поверхность кожи в плоскости Z = 0;
- Транскриптомные профили фолликулов нормализовали и проанализировали методом главных компонент.
Первые две главные компоненты объяснили 55% вариации в экспрессии генов и продемонстрировали прямую связь с физической длиной фолликула (p < 10⁻¹⁷⁷).
Алгоритм Slingshot объединил эти данные в непрерывную шкалу псевдовремени от 0 до 1, где 0 соответствует начальной закладке фолликула (гистологическая стадия 2), а 1 — зрелому состоянию перед выходом волоса (стадия 7). Распределение фолликулов по возрасту показало два пика (на значениях 0.2 и 0.8), что подтвердило чередование вторичных и третичных волн закладки волосяных фолликулов в соответствии с диффузионной моделью Тьюринга.
Анализ морфогенеза: новые данные об устройстве фолликула
Построенная четырехмерная модель позволила пересмотреть несколько базовых гипотез в биологии развития эпителиальных тканей.
1. Ранняя разметка ниш стволовых клеток
Стволовые клетки фолликула делятся на две основные функциональные популяции:
- клетки с рецептором Lgr6+ локализуются в верхней части фолликула и участвуют в заживлении ран и обновлении эпидермиса;
- клетки с рецептором Lgr5+ находятся в нижней зоне (бульдже) и отвечают за циклическое обновление волоса.
Ранее считалось, что пространственное разделение этих клеток происходит поздно — на этапе созревания волосяной луковицы.
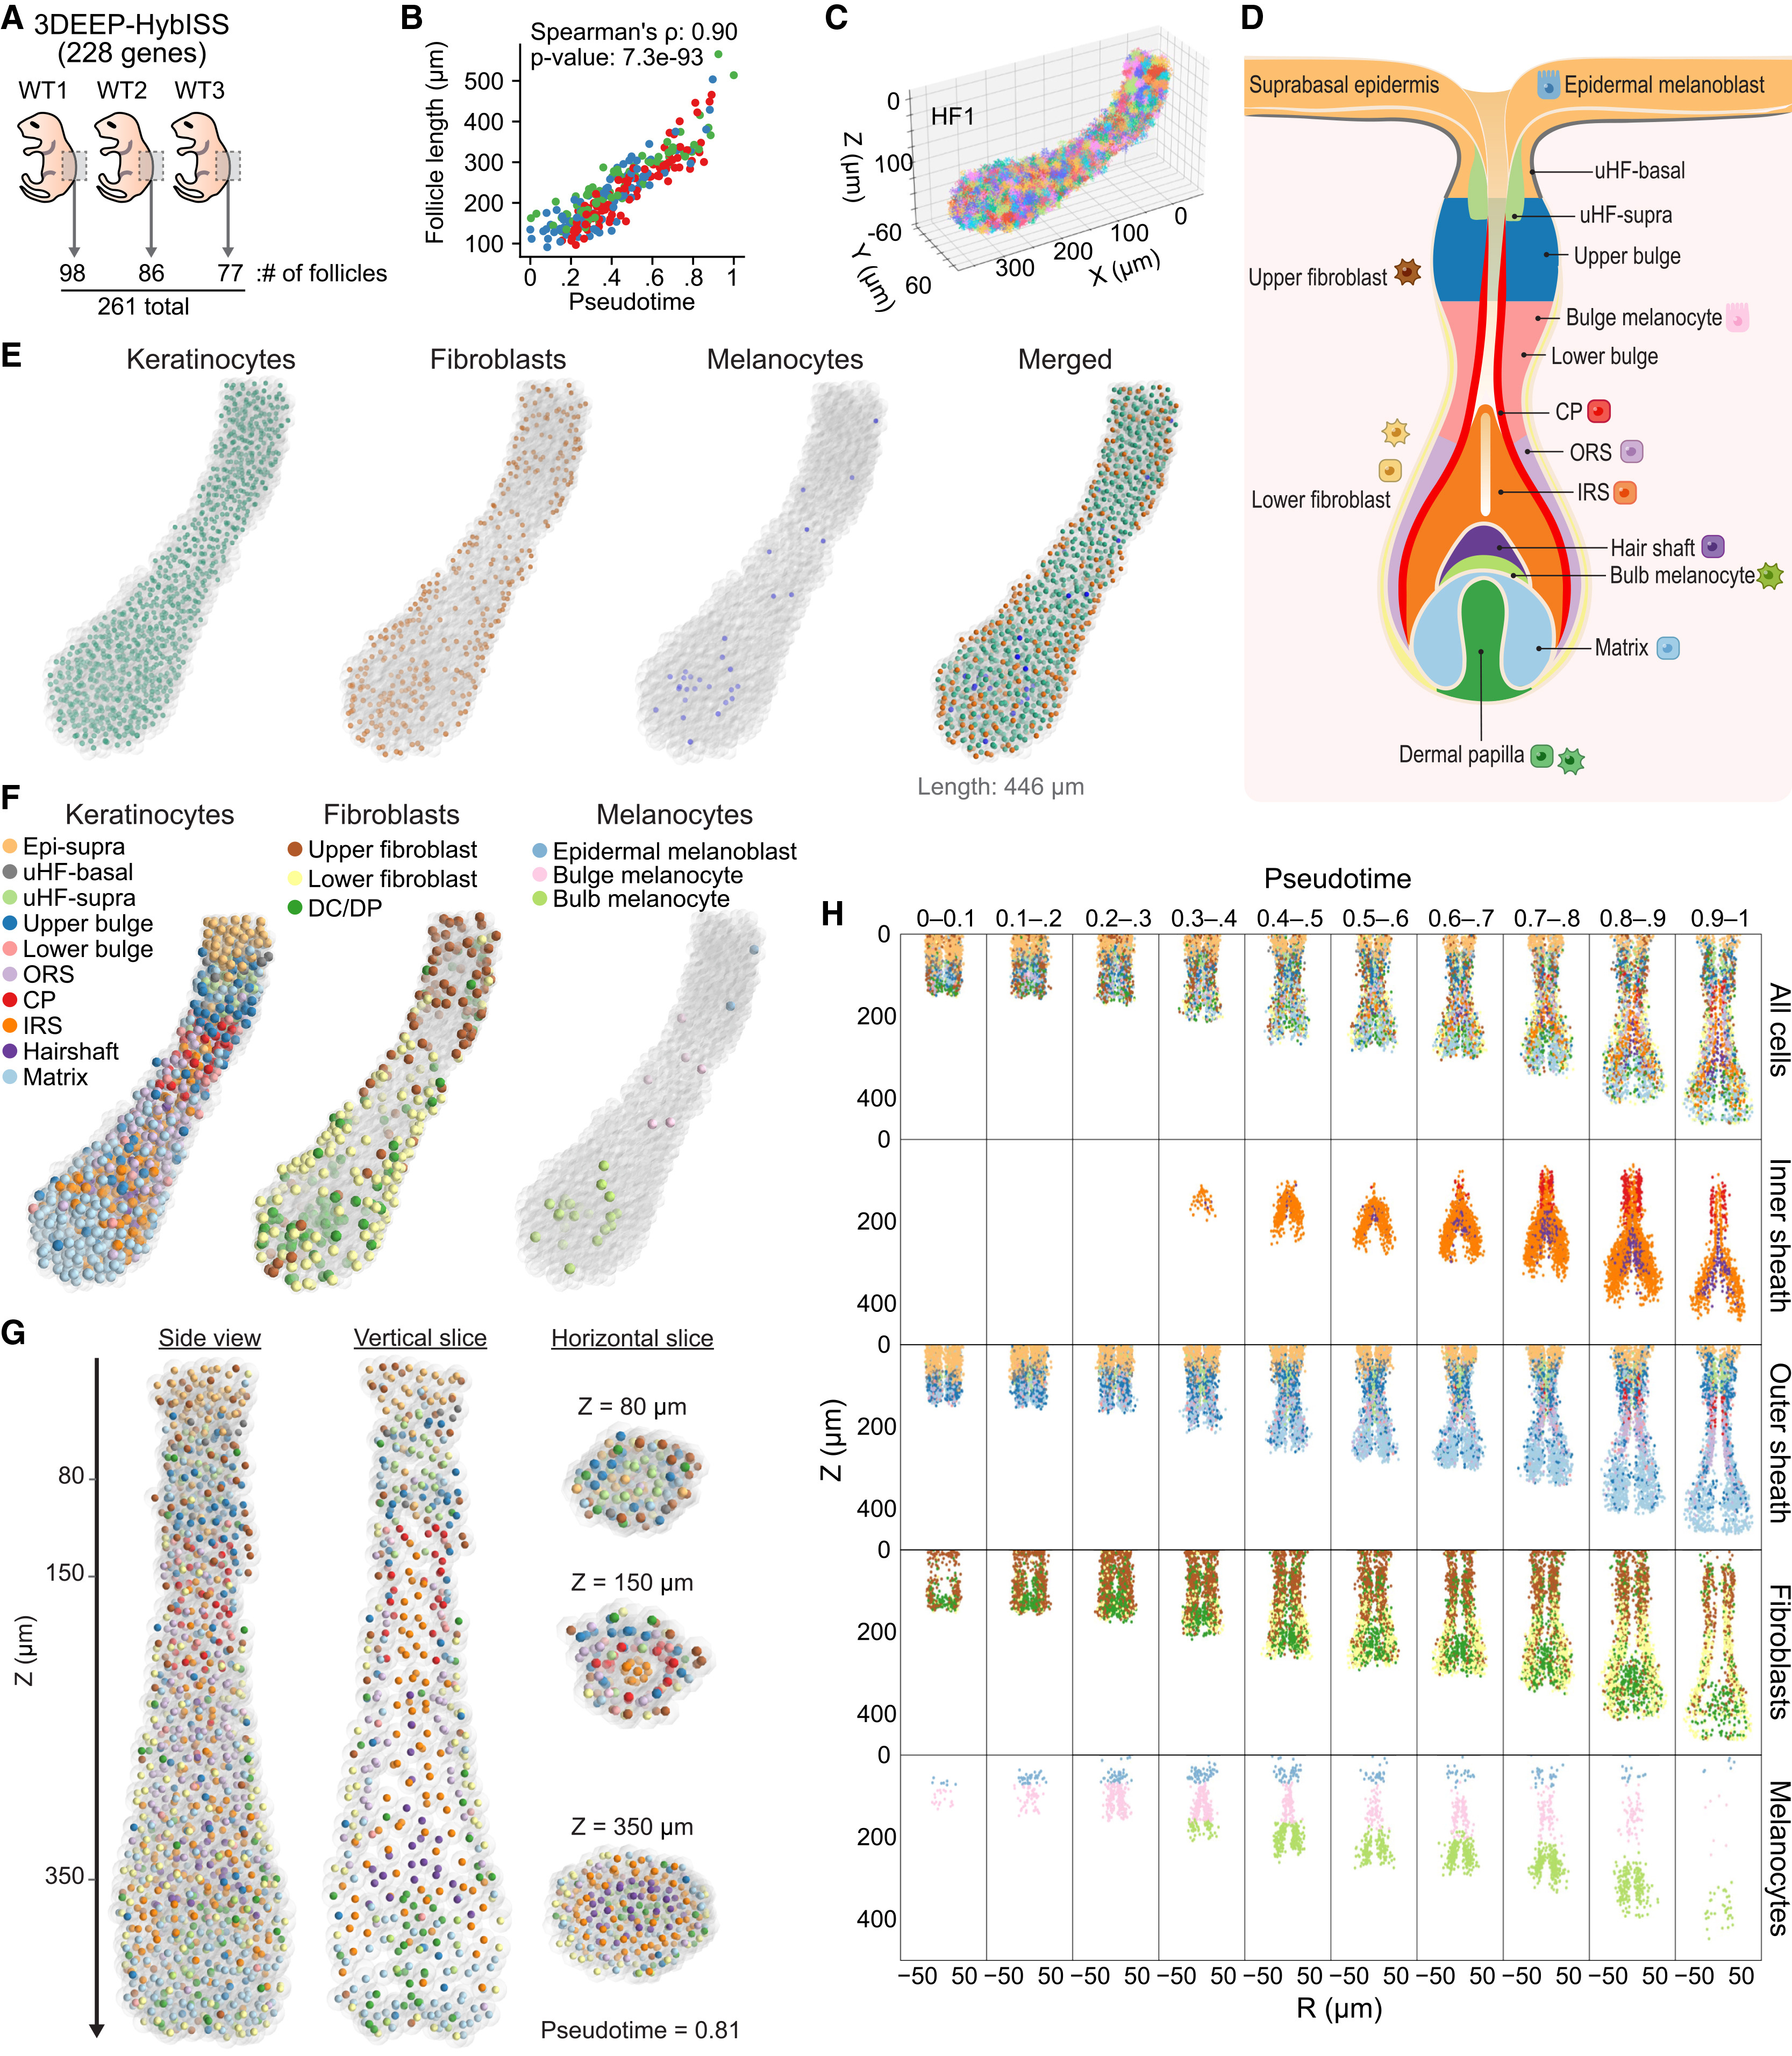
Данные 3DEEP показали, что разделение на зоны происходит уже на начальной стадии развития (псевдовремя 0.3), задолго до появления луковицы. Клетки Lgr6+ занимают верхний сегмент, а клетки Lgr5+ — нижний. Между ними строго на глубине 100 микрометров формируется пограничный слой специализированных кератиноцитов с белком Col17a1, стабилизирующий нишу. В эту же нижнюю зону к моменту псевдовремени 0.3 направленно мигрируют предшественники пигментных клеток (меланобласты).
2. Синхронное развитие стержня и оболочек
Согласно принятым гистологическим моделям, клетки матрикса сначала формируют плотную коническую трубку, и лишь затем внутри этой готовой направляющей структуры начинает расти стержень волоса.
Молекулярное профилирование опровергло эту последовательность: гены внутренней корневой трубки (Krt25, Krt27, Krt71) и ключевой маркер стержня волоса (S100a3) начинают экспрессироваться строго одновременно на интервале псевдовремени 0.35-0.55. Число клеток обеих популяций демонстрирует линейную корреляцию на всем протяжении органогенеза (r = 0,97, p < 10⁻¹⁵²). Внутренняя корневая трубка и стержень волоса формируются и увеличиваются в размерах как единый комплекс.
3. Механизм раскрытия волосяного канала
Классическая гипотеза предполагала, что волосяной канал в толще эпидермиса пробивается растущим вверх стержнем волоса под действием механического давления делящихся клеток луковицы.
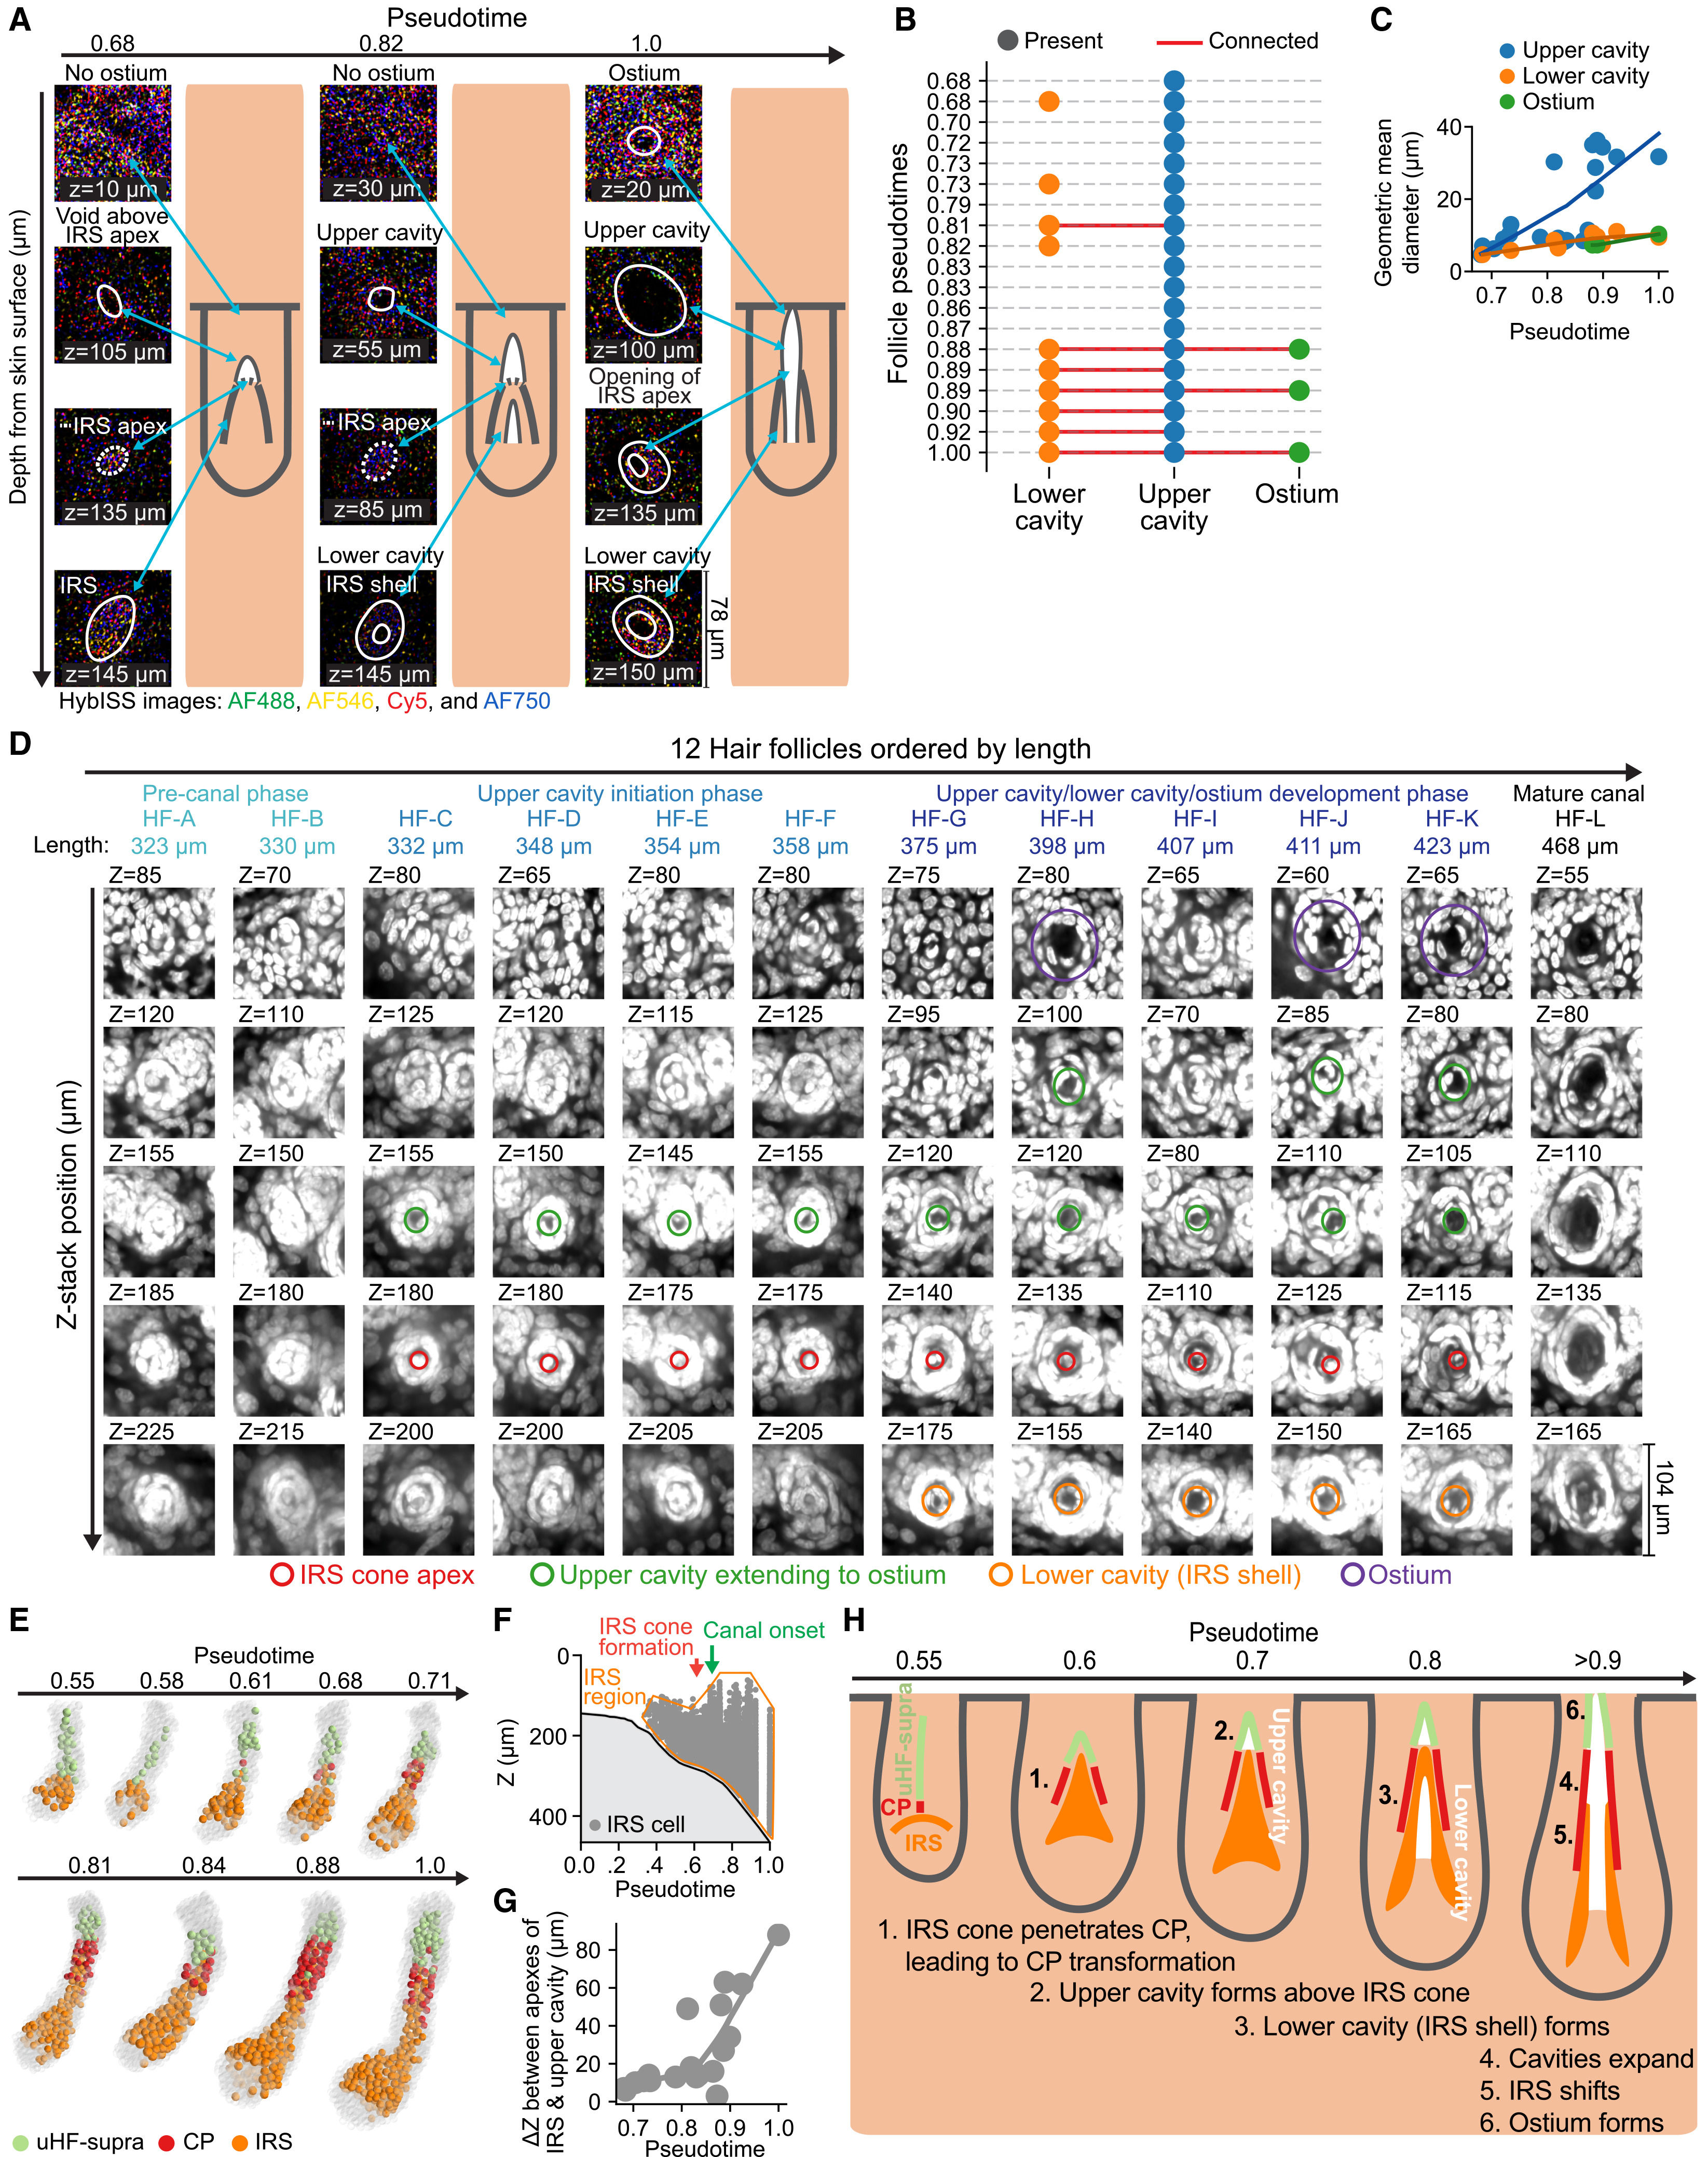
Четырехмерная карта показала, что канал открывается за счет автономной перестройки окружающих тканей без участия растущего волоса:
- На отметке псевдовремени 0.55 внутренняя корневая трубка формирует плотный конус, верхушка которого контактирует с клетками слоя-компаньона (CP).
- Верхушка конуса продвигается вверх, проходя сквозь слой CP и верхний эпителий, после чего клетки CP образуют вокруг него полый цилиндр.
- К отметке 0.68 прямо над острием конуса открывается изолированная верхняя бесклеточная полость.
- Внутри конуса независимо формируется нижняя бесклеточная полость.
- На стадии 0.88 верхняя полость выходит на поверхность эпидермиса, образуя внешнее отверстие (остиум), и объединяется с нижней полостью в единый сквозной канал.
Диаметр верхнего участка канала расширяется с 5 до 35 микрометров еще до того, как растущий стержень волоса физически достигает этой области.
Механизм врожденной алопеции: десинхронизация при мутации Foxn1
Разработанный подход применили для выяснения причин врожденной бесшерстности у мышей линии Foxn1-deficient nude (нокаут гена транскрипционного фактора Foxn1).
У таких животных при рождении фолликулы присутствуют, имеют нормальный размер и даже образуют зачаток волоса, но шерсть на теле не вырастает: волос сминается внутри фолликула и разрушается. До сих пор дефект объясняли исключительно механической ломкостью кератиновых филаментов в зрелой луковице.
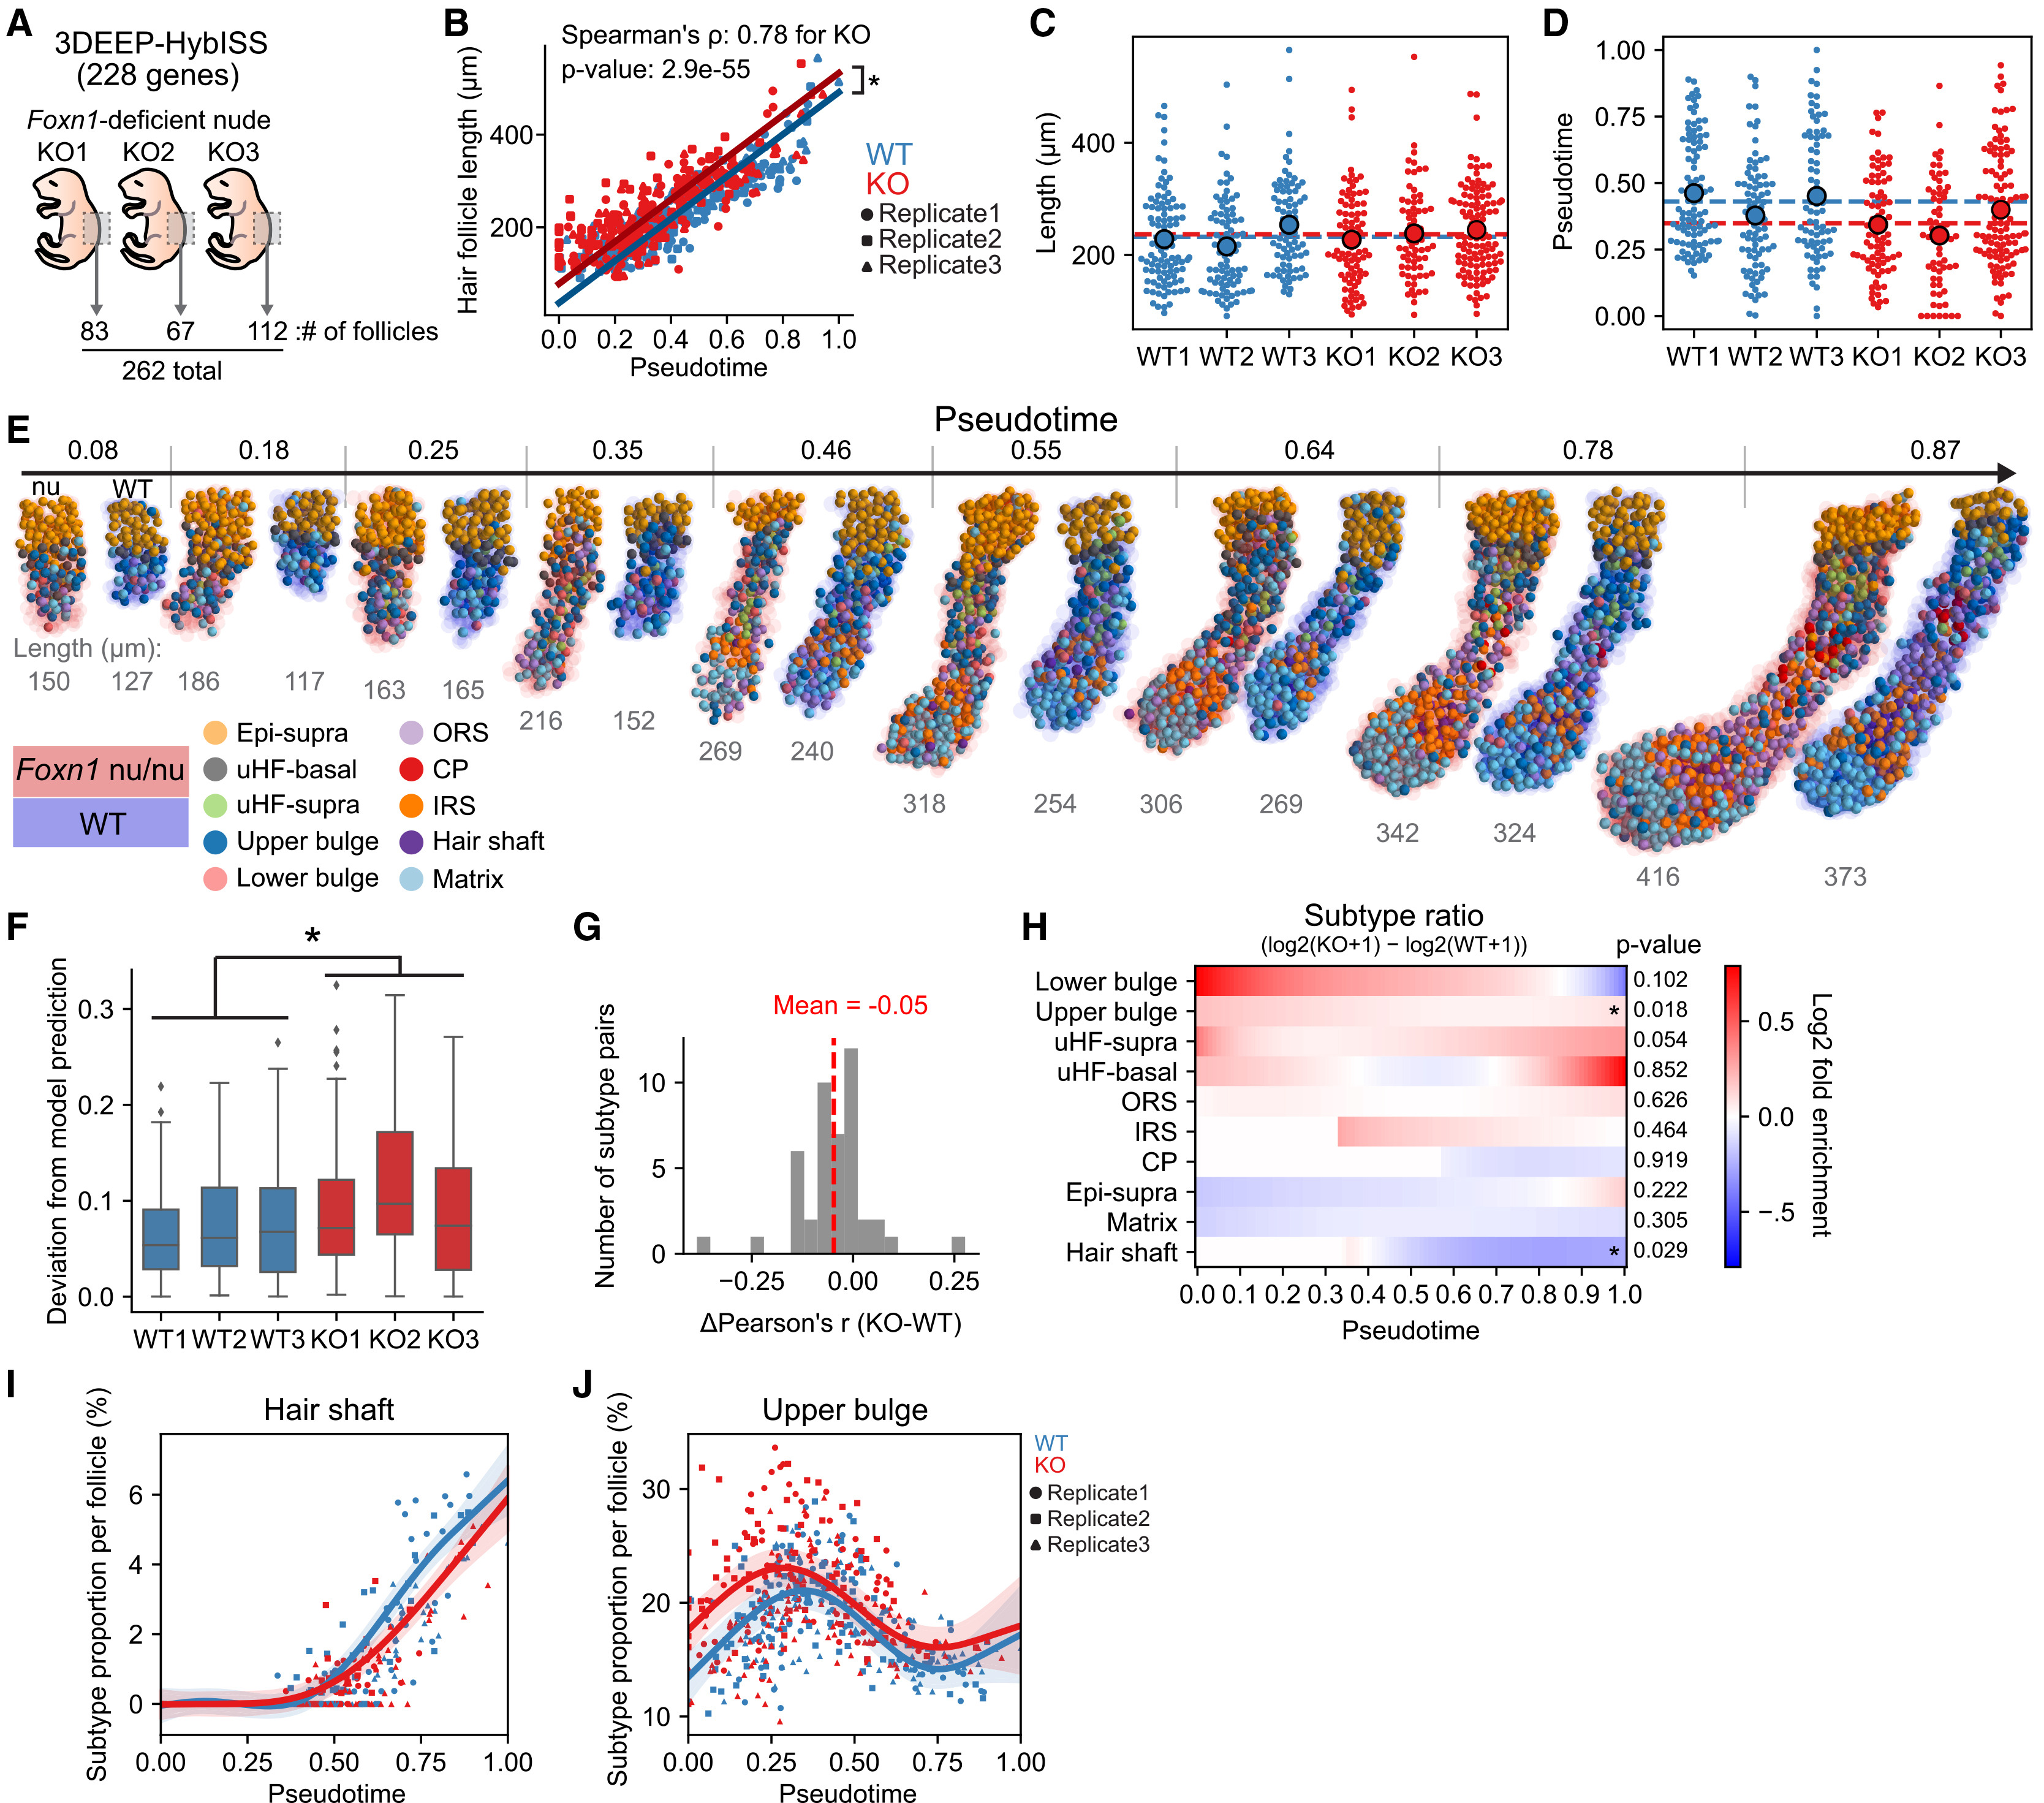
Сравнительный анализ 262 мутантных фолликулов показал:
- Основные анатомические вехи развития (формирование канала, стратификация стволовых клеток) у мутантов сохраняются.
- Средняя длина фолликулов не отличается от нормы (237 мкм у мутантов против 232 мкм у контроля, p = 0,75).
- Средний показатель молекулярного псевдовремени у мутантов оказался на 21% ниже, чем у дикого типа (0.35 против 0.43, p < 0,01). Молекулярное созревание клеток существенно отстает от физического удлинения органа.
- Разброс отклонений между длиной и молекулярным возрастом у мутантов вырос на 30% (p < 0,05), что указывает на системную потерю координации темпов развития.
- После отметки псевдовремени 0.8 скорость деления клеток стержня волоса резко падает, приводя к их дефициту на 26% к концу цикла. Одновременно в верхней части фолликула накапливается на 18% больше недифференцированных клеток из-за блока их дальнейшего созревания.
Таким образом, мутация гена Foxn1 нарушает согласованность между скоростью деления клеток и запуском программ их дифференцировки задолго до появления видимых структурных дефектов волоса.
Значение для биологии развития и медицины
Пространственное псевдовремя дает универсальный аналитический инструмент для исследования органов, формирующихся за счет асинхронного деления и дифференцировки клеточных пулов. К таким системам относятся:
- почечные нефроны, образующиеся последовательными волнами в эмбриональной паренхиме;
- островки Лангерганса поджелудочной железы;
- альвеолы легких в процессе терминального ветвления бронхиального дерева;
- трехмерные органоиды, выращиваемые из стволовых клеток in vitro.
Вычисление непрерывных траекторий экспрессии генов в неповрежденных трехмерных образцах позволяет зафиксировать скрытые молекулярные задержки и сбои дифференцировки при генетических патологиях до того, как они приведут к необратимым анатомическим аномалиям.
Источник: Cell
0 комментариев
Добавить комментарий