Мозг под наркозом выработал больше сигналов, чем наяву: как разрушение электрических волн отключает человеческое восприятие
Когда человеку вводят общую анестезию, его восприятие окружающего мира полностью прекращается. Большинство людей полагает, что под наркозом мозг выключается и впадает в глубокое электрическое молчание. Однако данные электрофизиологии показывают иную картину: нейроны продолжают генерировать электрические импульсы, синапсы выделяют химические передатчики, а по коре продолжают циркулировать колебания потенциалов.
С точки зрения базовой биологии мозг под наркозом остается активным органом. Тем не менее сознательный опыт исчезает. Человек не видит свет, не слышит звуки и не ощущает прикосновений. Если сенсорные органы продолжают посылать сигналы по нервным путям, а клетки мозга способны на них реагировать, почему восприятие распадается?
Ответ на этот вопрос десятилетиями ускользал от исследователей. Главная сложность заключалась в том, что наука умела изучать либо поведение отдельных клеток, либо суммарную активность всего мозга сразу. То, что происходило на промежуточном уровне — на уровне взаимодействия между крупными отделами коры, — оставалось скрытым.
Нейрофизиологи из Киотского университета под руководством Ютаки Комуры провели масштабное исследование, опубликованное в научном журнале iScience. Они выяснили, что ключ к работе сознания лежит не в самом факте активности нейронов, а в том, как электрические сигналы организуются в пространстве и времени. В бодрствующем состоянии мозг формирует упорядоченные бегущие электрические волны, которые служат прямыми физическими маршрутами для передачи данных. Под наркозом эта система маршрутизации ломается.
Содержание
- Ограничения классической теории: от одной клетки к целому мозгу
- Проблема бегущих волн: иллюзия связи
- Эксперимент: гибкая электроника на полушарии мозга
- Открытие феномена информационной настройки
- Семь сценариев активности: почему затухает наркоз
- Клеточный фундамент: где находится биологический переключатель
- Мост к теориям сознания
Ограничения классической теории: от одной клетки к целому мозгу
В шестидесятых годах двадцатого века исследователи Дэвид Хьюбел и Торстен Визель совершили фундаментальное открытие, за которое позже получили Нобелевскую премию. Они доказали, что отдельные нейроны первичной зрительной коры обладают строгой избирательностью. Одна клетка активируется только тогда, когда перед глазами появляется линия, наклоненная строго под углом сорок пять градусов. Другая клетка реагирует исключительно на горизонтальное движение. Соседние клетки специализируются на определенных цветах или звуковых частотах.
Это свойство назвали «нейрональной настройкой». Оно легло в основу современных представлений о сенсорном восприятии. Однако этот подход создал глубокую теоретическую проблему.
Человек не воспринимает мир как набор изолированных отрезков, пятен или частот. Визуальный образ объединяется с памятью, пространственным положением тела, звуками и эмоциональной оценкой. Для формирования даже самого простого целостного впечатления информация должна покинуть первичную зрительную зону и поступить в десятки других областей коры: ассоциативную, теменную, слуховую и моторную.
Каким образом сигналы от миллионов специализированных клеток координируются между собой на больших расстояниях? Долгое время считалось, что отделы мозга общаются исключительно через жестко фиксированные пучки длинных аксонов. Но простого наличия анатомических путей недостаточно. Мозгу требуется механизм, который определяет, какая именно область, в какую долю секунды и в каком направлении будет передавать текущую порцию данных.
Проблема бегущих волн: иллюзия связи
В качестве возможного механизма координации ученые давно рассматривали бегущие кортикальные волны. Бегущая волна в мозге — это непрерывное перемещение фазы электрической активности по поверхности коры. Когда группа нейронов возбуждается, она передает часть потенциала соседним участкам ткани. Возникает фронт электрического напряжения, который движется от одной зоны коры к другой.
Такие волны регистрировали у животных и человека при выполнении тестов на память, внимание и реакцию. Большинство специалистов автоматически предполагало: если прибор видит электрическую волну, идущую от точки X к точке Y, значит, точка X передает информацию в точку Y.
Группа Ютаки Комуры обратила внимание на серьезную методологическую ошибку в этой логике. Авторы доказали математически: физическое наличие волны вовсе не означает, что вместе с ней перемещается полезная информация.
Чтобы продемонстрировать это, ученые построили численную компьютерную модель. Они смоделировали две принципиально разные ситуации взаимодействия между двумя участками коры:
- Связанный режим. Участок X получает внешний сигнал, обрабатывает его и отправляет участку Y с фиксированной временной задержкой. Здесь присутствует прямая передача данных: состояние участка Y напрямую зависит от того, что происходило в участке X мгновением раньше.
- Разобщенный режим. Участки X и Y изолированы друг от друга. Однако оба они получают один и тот же внешний сигнал от общего источника. При этом сигнал доходит до участка X чуть быстрее, а до участка Y — с задержкой.
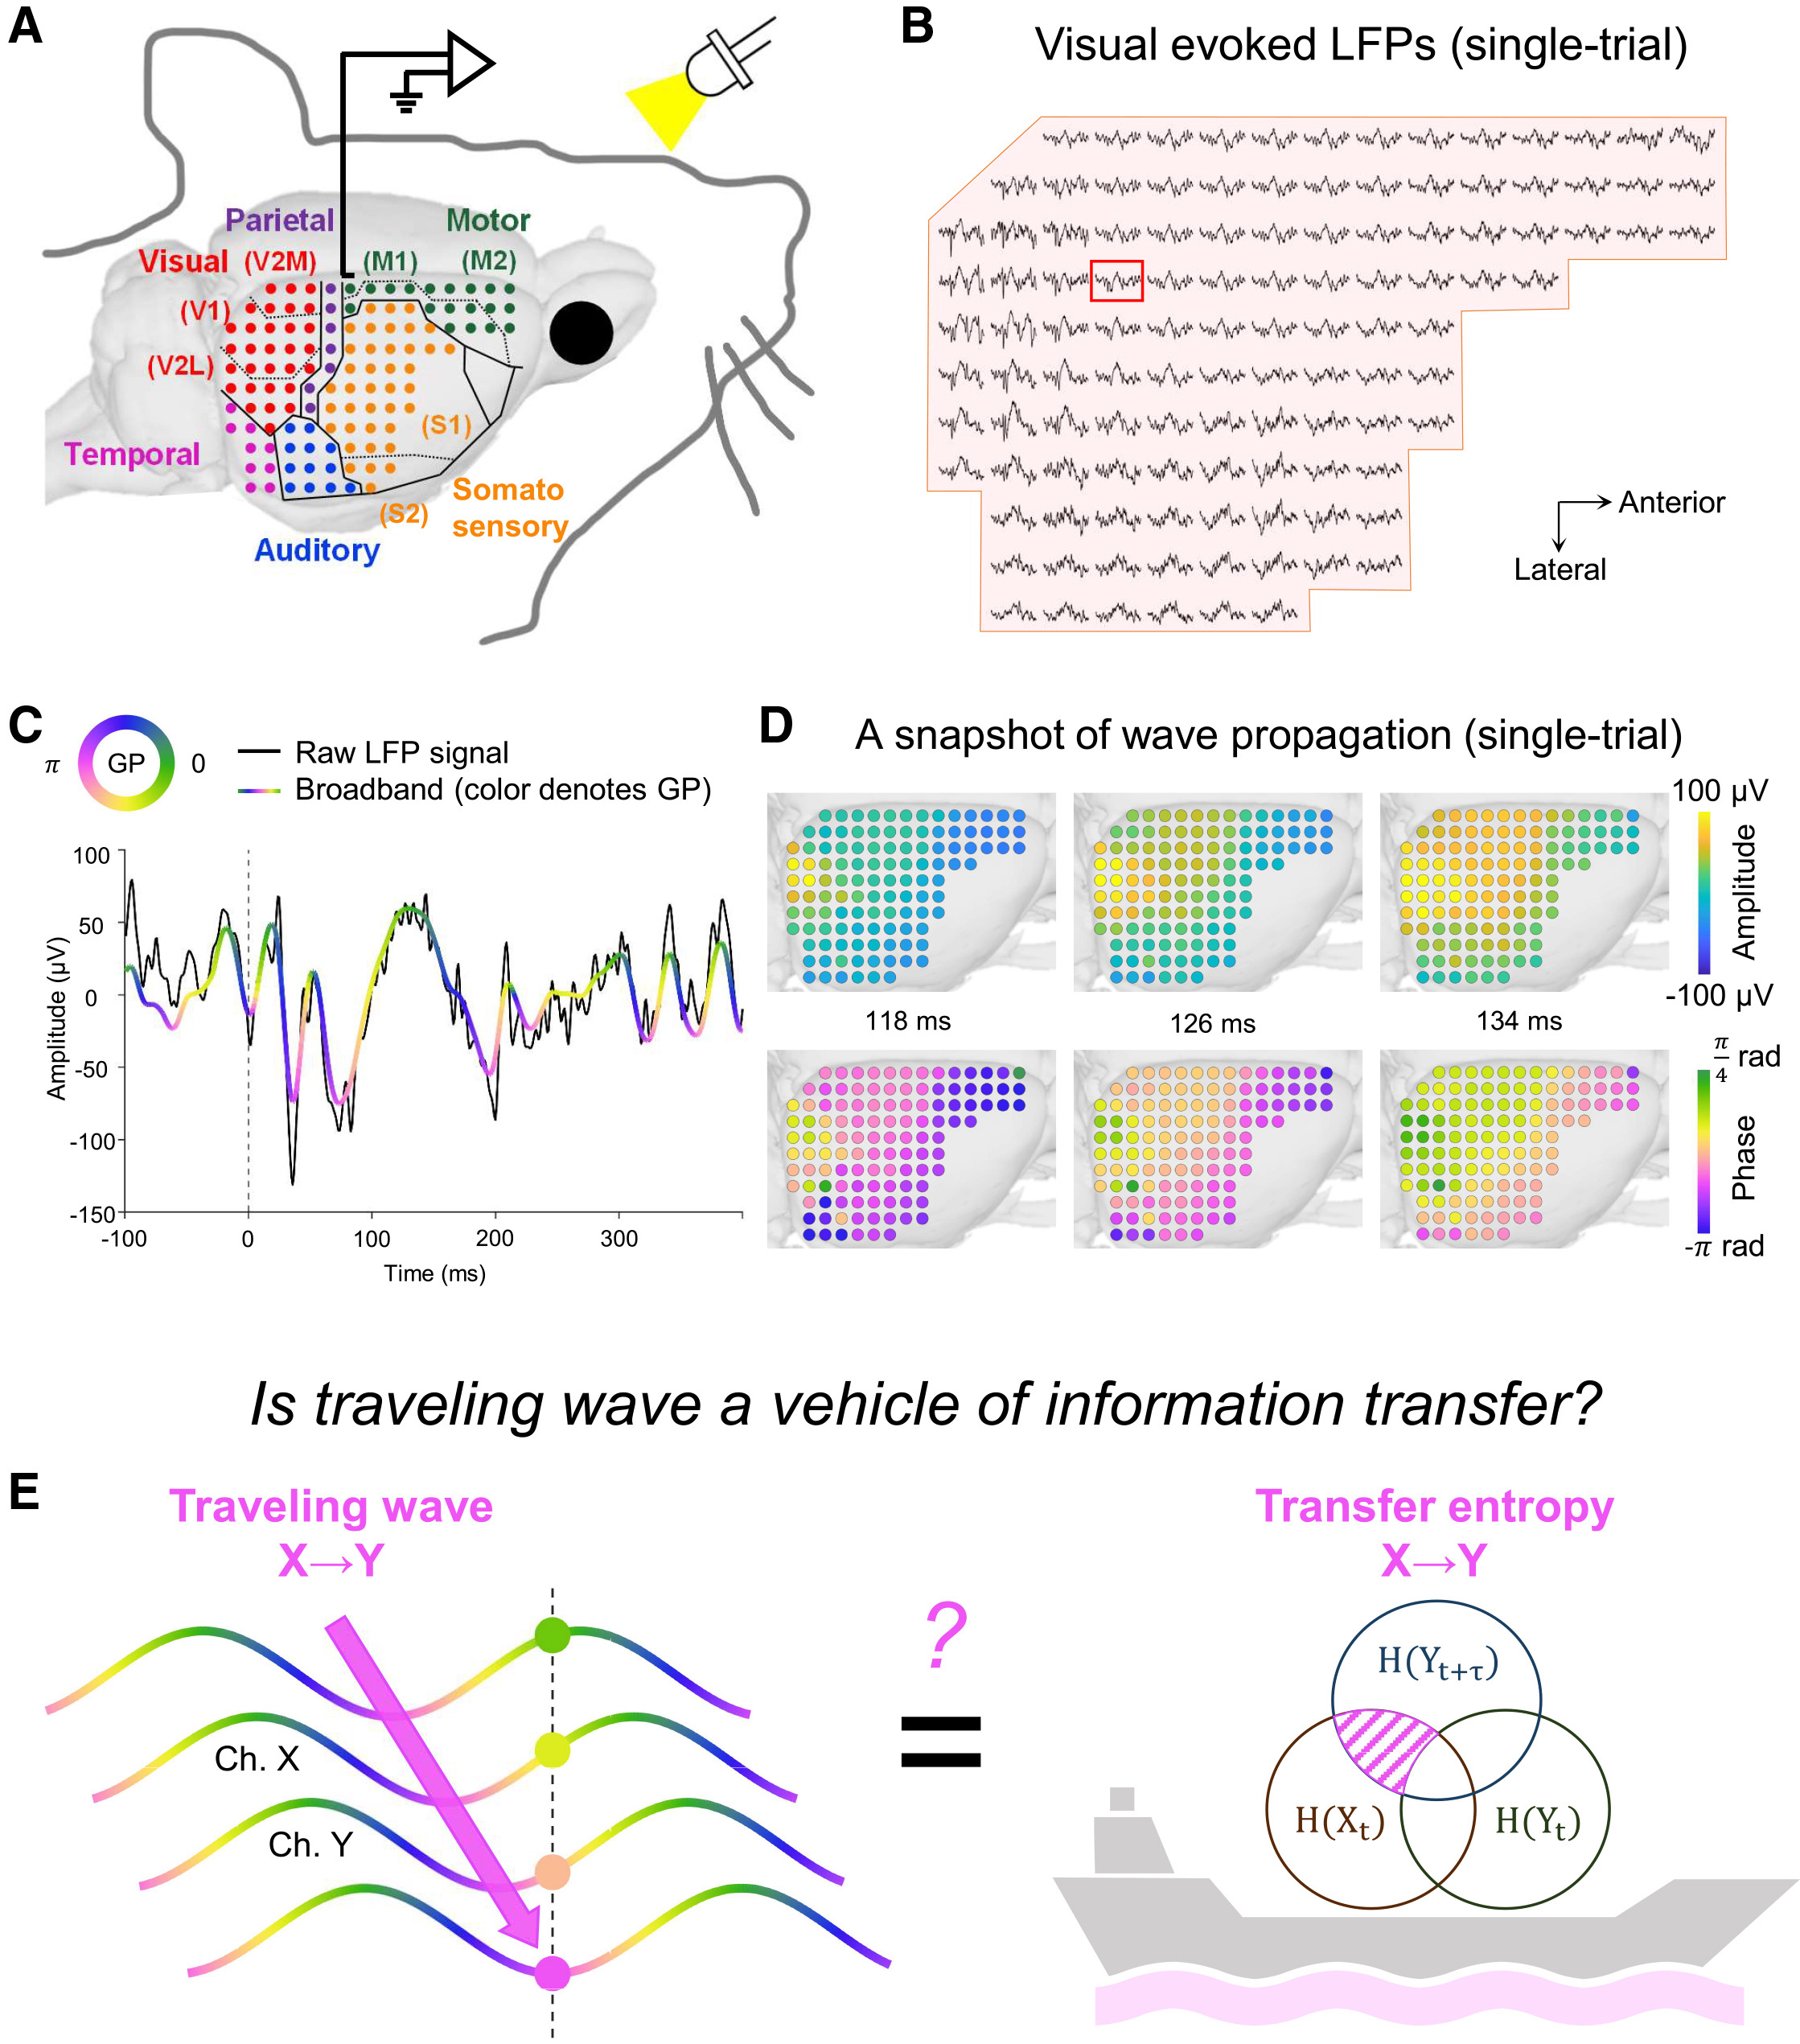
Результат моделирования показал неожиданную вещь. В обоих случаях стандартные приборы зафиксировали абсолютно одинаковую бегущую волну, направленную от X к Y. Разница во времени активации создавала полную иллюзию того, что один участок управляет другим.
Чтобы выявить реальное положение дел, японские исследователи применили аппарат теории информации — метод трансферной энтропии. Этот показатель измеряет, насколько знание прошлого состояния первого объекта снижает неопределенность относительно будущего состояния второго объекта за вычетом собственной истории второго объекта. Если трансферная энтропия больше нуля, между объектами есть направленный информационный поток. Если она равна нулю, процессы статистически независимы.
Расчет показал: в первом режиме трансферная энтропия была высокой, подтверждая передачу данных. Во втором режиме трансферная энтропия оказалась нулевой. Одинаковая форма волн скрывала принципиально разную внутреннюю реальность.
Это означало, что любые прежние наблюдения за кортикальными волнами требовали пересмотра. Следовало экспериментально доказать на живой ткани, являются ли волны реальными носителями информации или представляют собой лишь побочный шум нервной системы.
Эксперимент: гибкая электроника на полушарии мозга
Для проверки гипотезы требовалось зарегистрировать активность всей коры одновременно с миллисекундной точностью и высоким пространственным разрешением. Существующие методы для этого не подходили. Скальповая электроэнцефалография не дает нужной четкости из-за искажений, создаваемых костями черепа. Игольчатые микроэлектроды дают высокое разрешение, но собирают данные лишь с крошечной точки ткани.
Авторы разработали оригинальный массив для электрокортикографии. Его основой стала сверхтонкая пленка из полимера парилена-C толщиной всего десять микрометров. На эту эластичную основу методом фотолитографии нанесли сто шестнадцать круглых золотых электродов диаметром сто тринадцать микрометров каждый. Электроды располагались по координатной сетке с шагом в один миллиметр.
Матрица была спроектирована с учетом анатомической формы мозга лабораторной крысы. За счет гибкости и микроскопических краевых разрезов она плотно облегала практически все правое полушарие животного. Под наблюдением оказались зрительная, теменная, моторная, соматосенсорная и слуховая зоны коры.
Эксперимент провели на десяти крысах линии Long Evans. Животным, зафиксированным за череп, подавали короткие зрительные стимулы — вспышки белого светодиода длительностью пятьдесят миллисекунд в левый глаз. Запись электрических потенциалов вели в двух состояниях: сначала у бодрствующих активных животных, затем у тех же особей под воздействием ингаляционного наркоза изофлурана.
Важной частью метода стала математическая обработка сырого сигнала. Традиционно исследователи искусственно разбивают электрическую активность мозга на узкие полосы: дельта-, тета-, альфа-, бета- и гамма-ритмы. Но жесткая математическая фильтрация неизбежно искажает фазу сигнала и смазывает фронт волны.
Вместо этого авторы использовали метод обобщенной фазы в широкой полосе частот от четырех до сорока герц. Этот подход позволил отслеживать истинные гребни и спады электрических потенциалов коры в реальном времени, минимально искажая их форму.
Открытие феномена информационной настройки
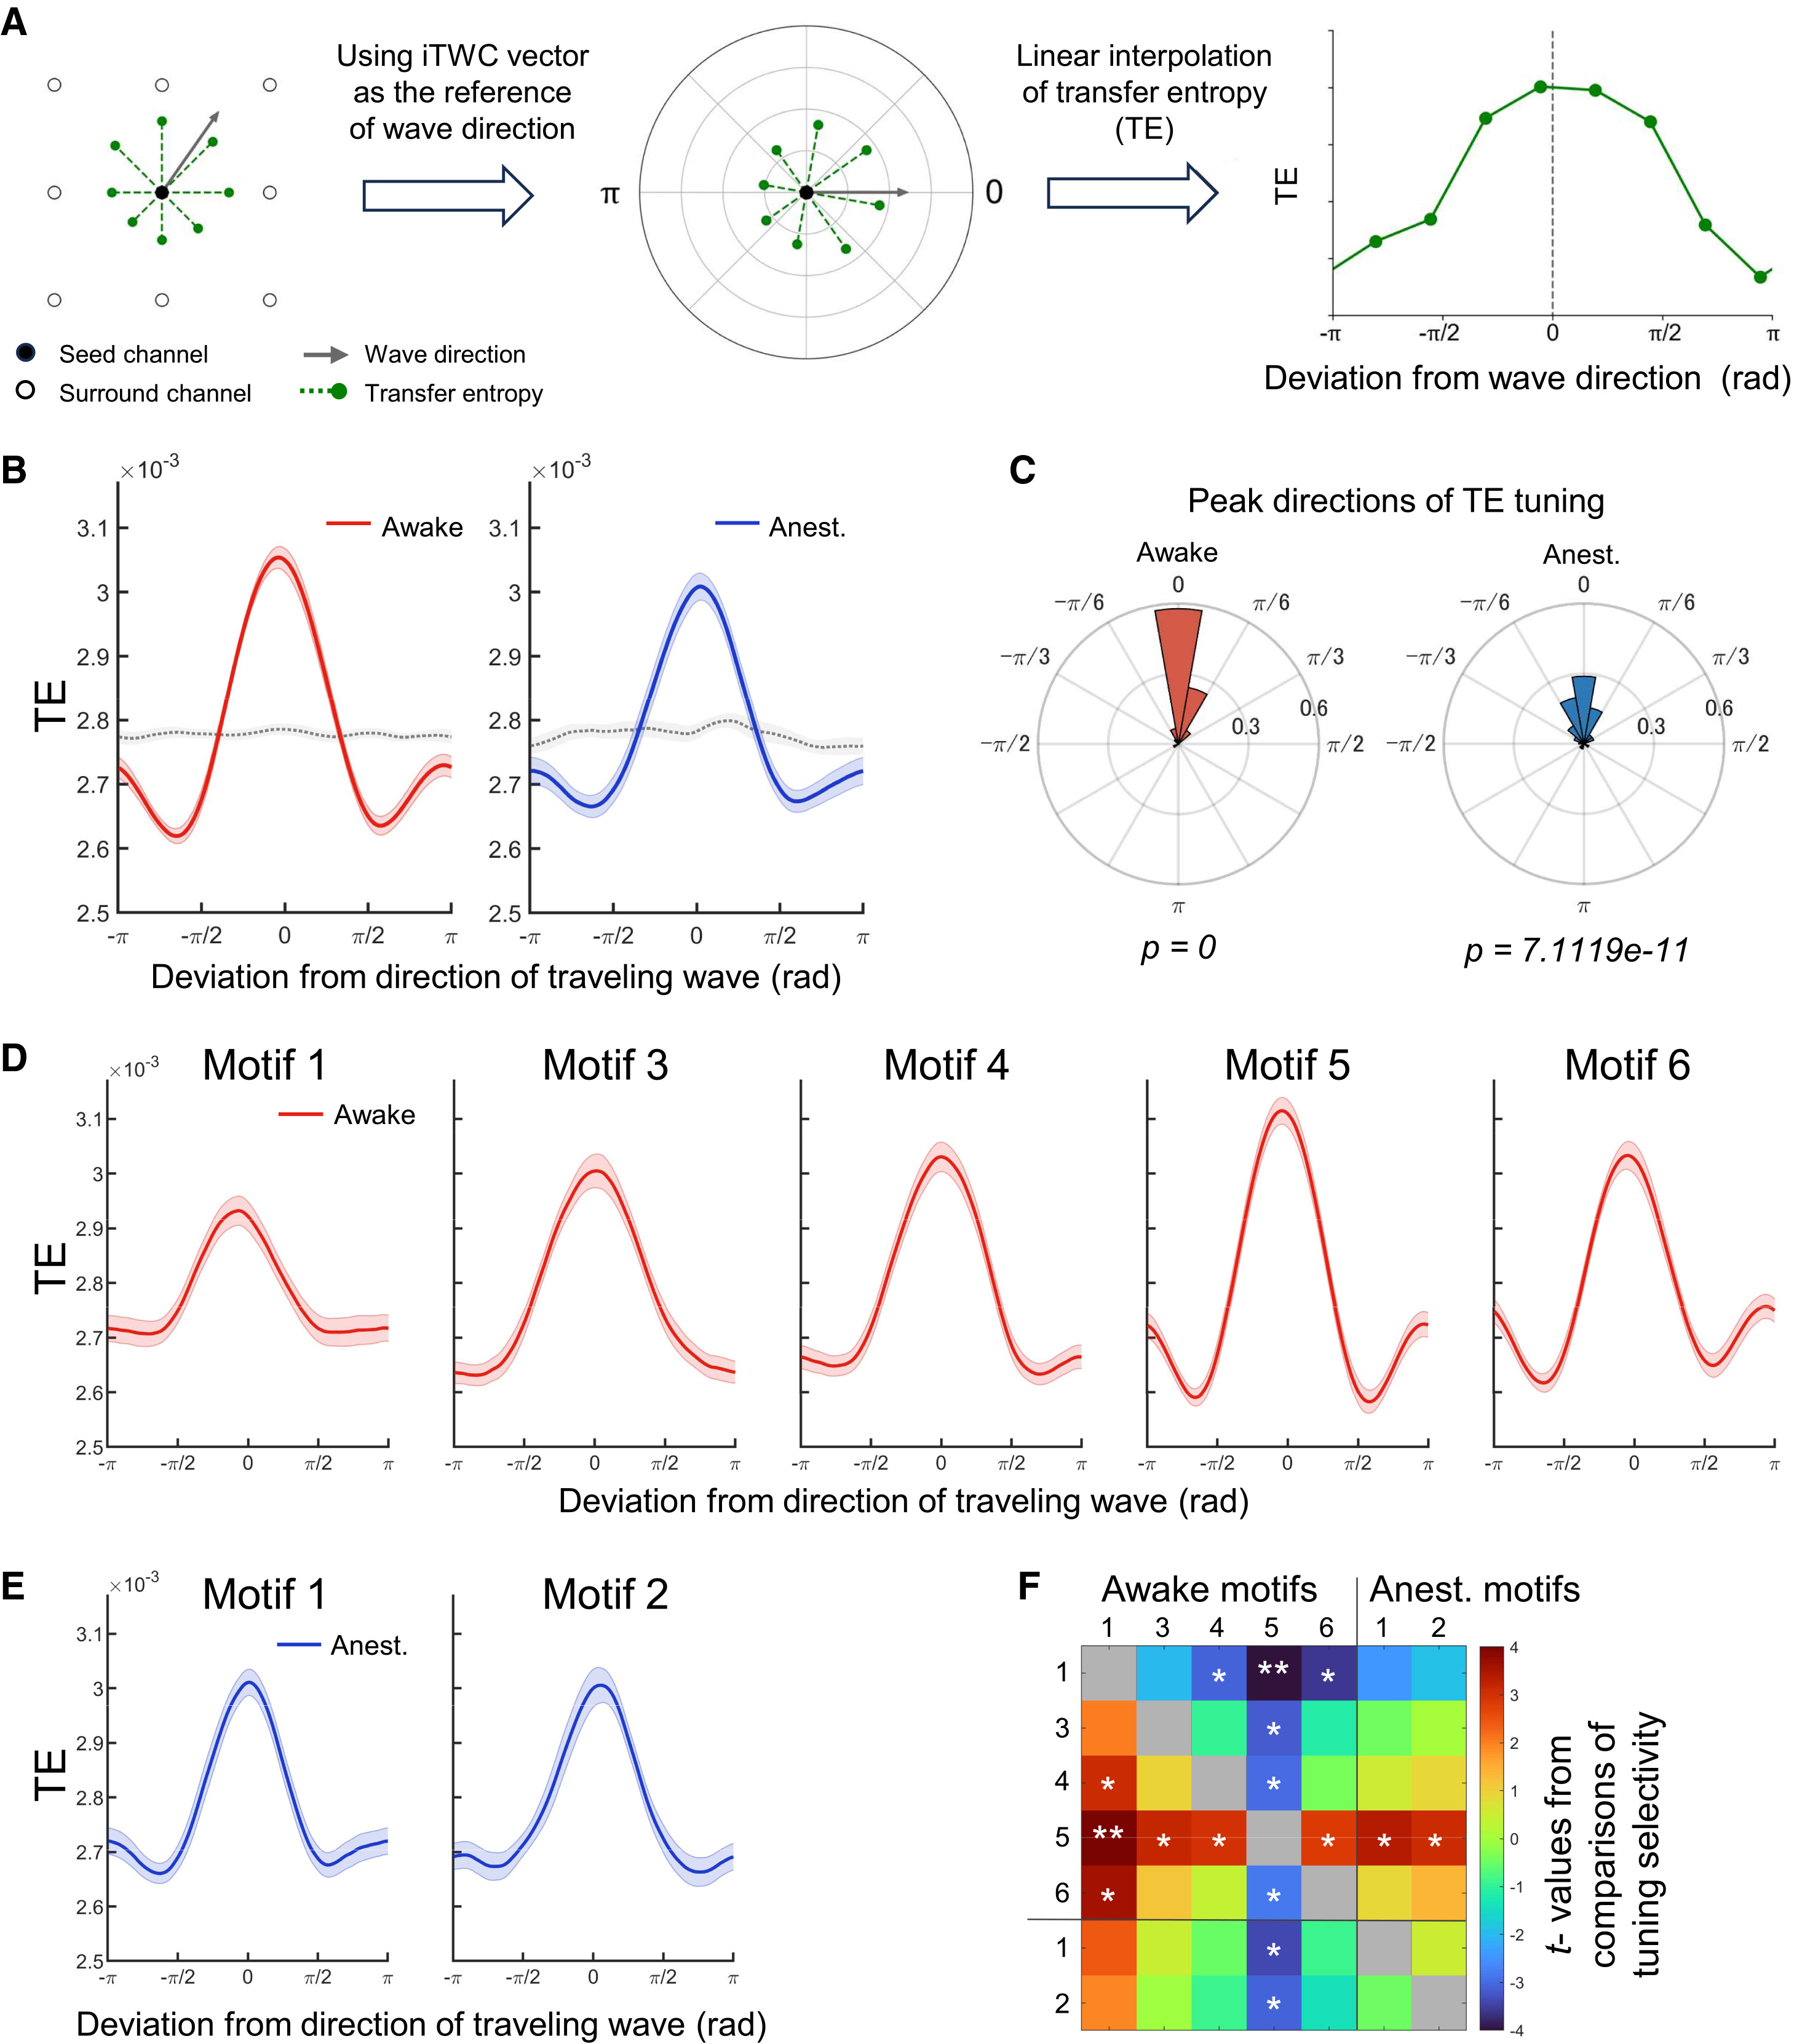
Объединив фазовый анализ движения волн с расчетом трансферной энтропии, ученые получили фундаментальный результат. Бегущие волны в коре живого бодрствующего мозга действительно осуществляют перенос информации. Более того, этот перенос обладает строгой геометрической направленностью.
Исследователи брали каждый электрод на поверхности коры, определяли направление движения локального волнового фронта и вычисляли трансферную энтропию к восьми соседним электродам, расположенным вокруг него по кругу. Затем систему координат поворачивали так, чтобы направление движения волны соответствовало углу ноль радиан.
Выяснилось, что поток информации не расходится во все стороны равномерно. График распределения трансферной энтропии показал резкий пик: перенос данных достигал абсолютного максимума строго вдоль вектора движения волны. При отклонении от направления волны в стороны передача информации резко падала, а в направлении, противоположном движению волны, снижалась до минимума.
Авторы назвали этот феномен информационной избирательностью или информационной настройкой.
Смысл этого понятия заключается в следующем. Классическая нейрональная избирательность описывает, на какой признак внешнего стимула реагирует отдельная клетка. Информационная избирательность описывает работу совершенно другого масштаба: она показывает, как популяция нейронов формирует направленный канал передачи данных между функциональными областями мозга. Сдвиг электрического потенциала, создаваемый волной, синхронизирует готовность нейронов принимать и обрабатывать сигналы, создавая выделенную траекторию для движения информации.
Семь сценариев активности: почему затухает наркоз
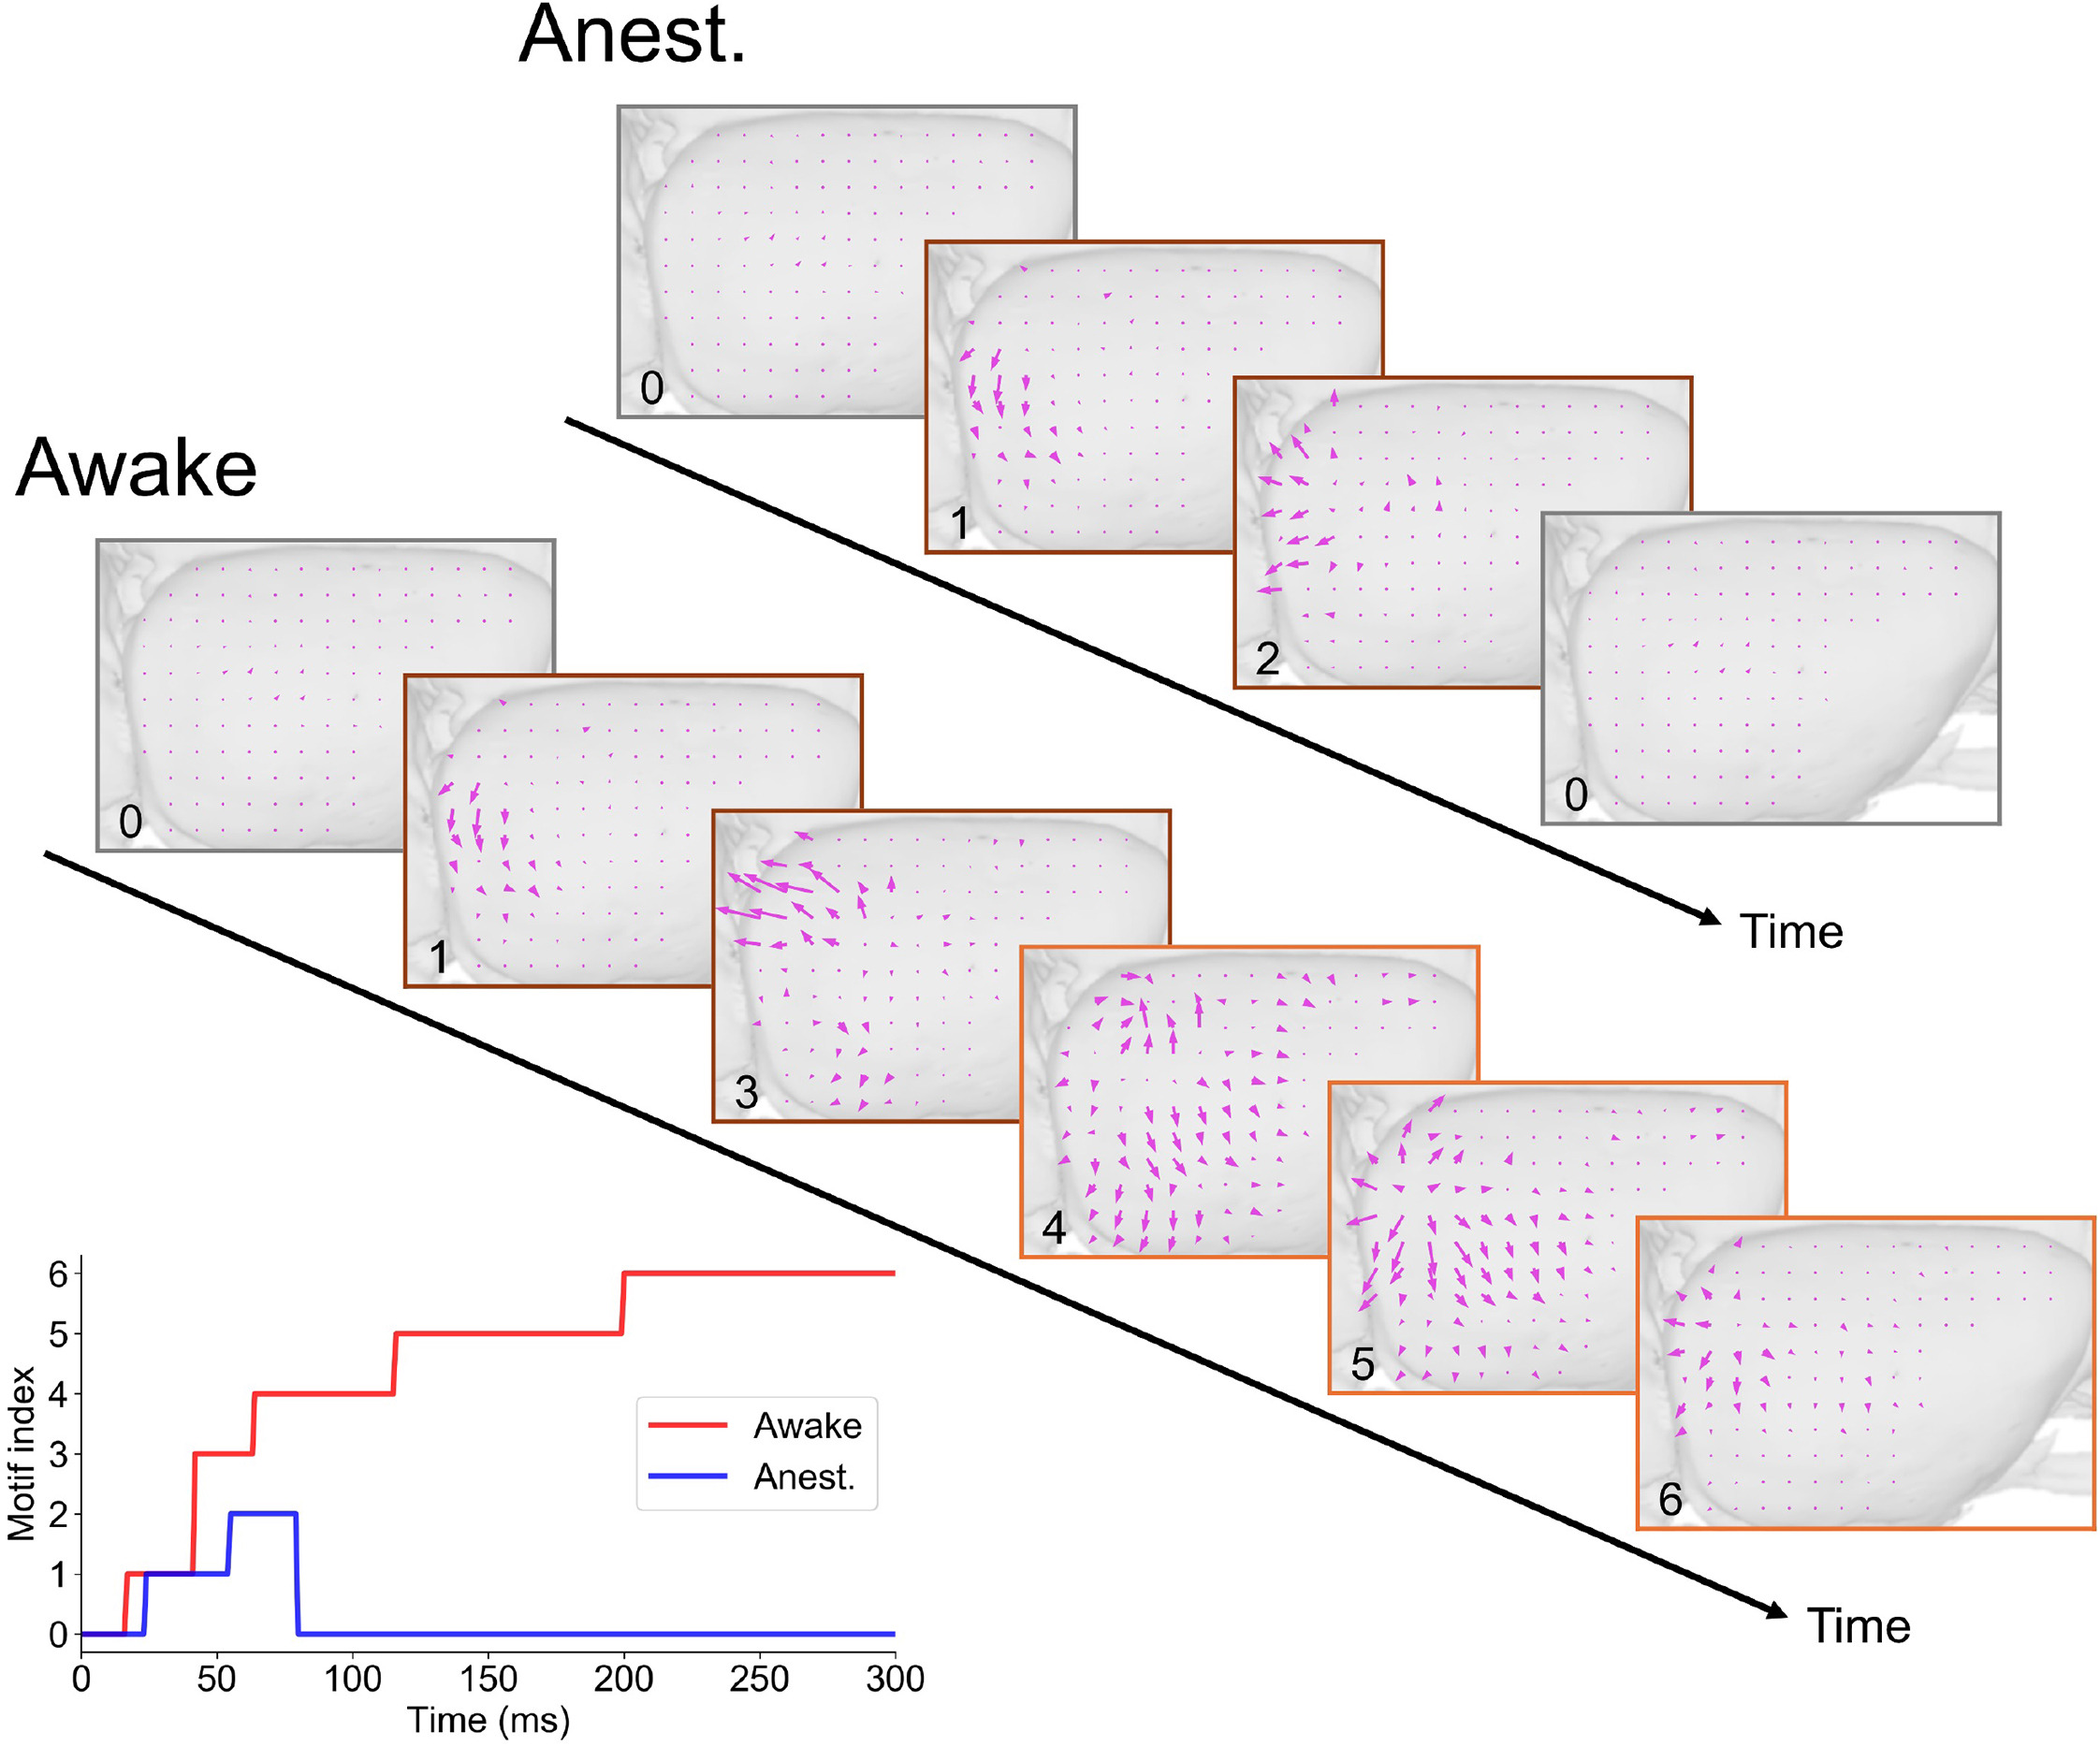
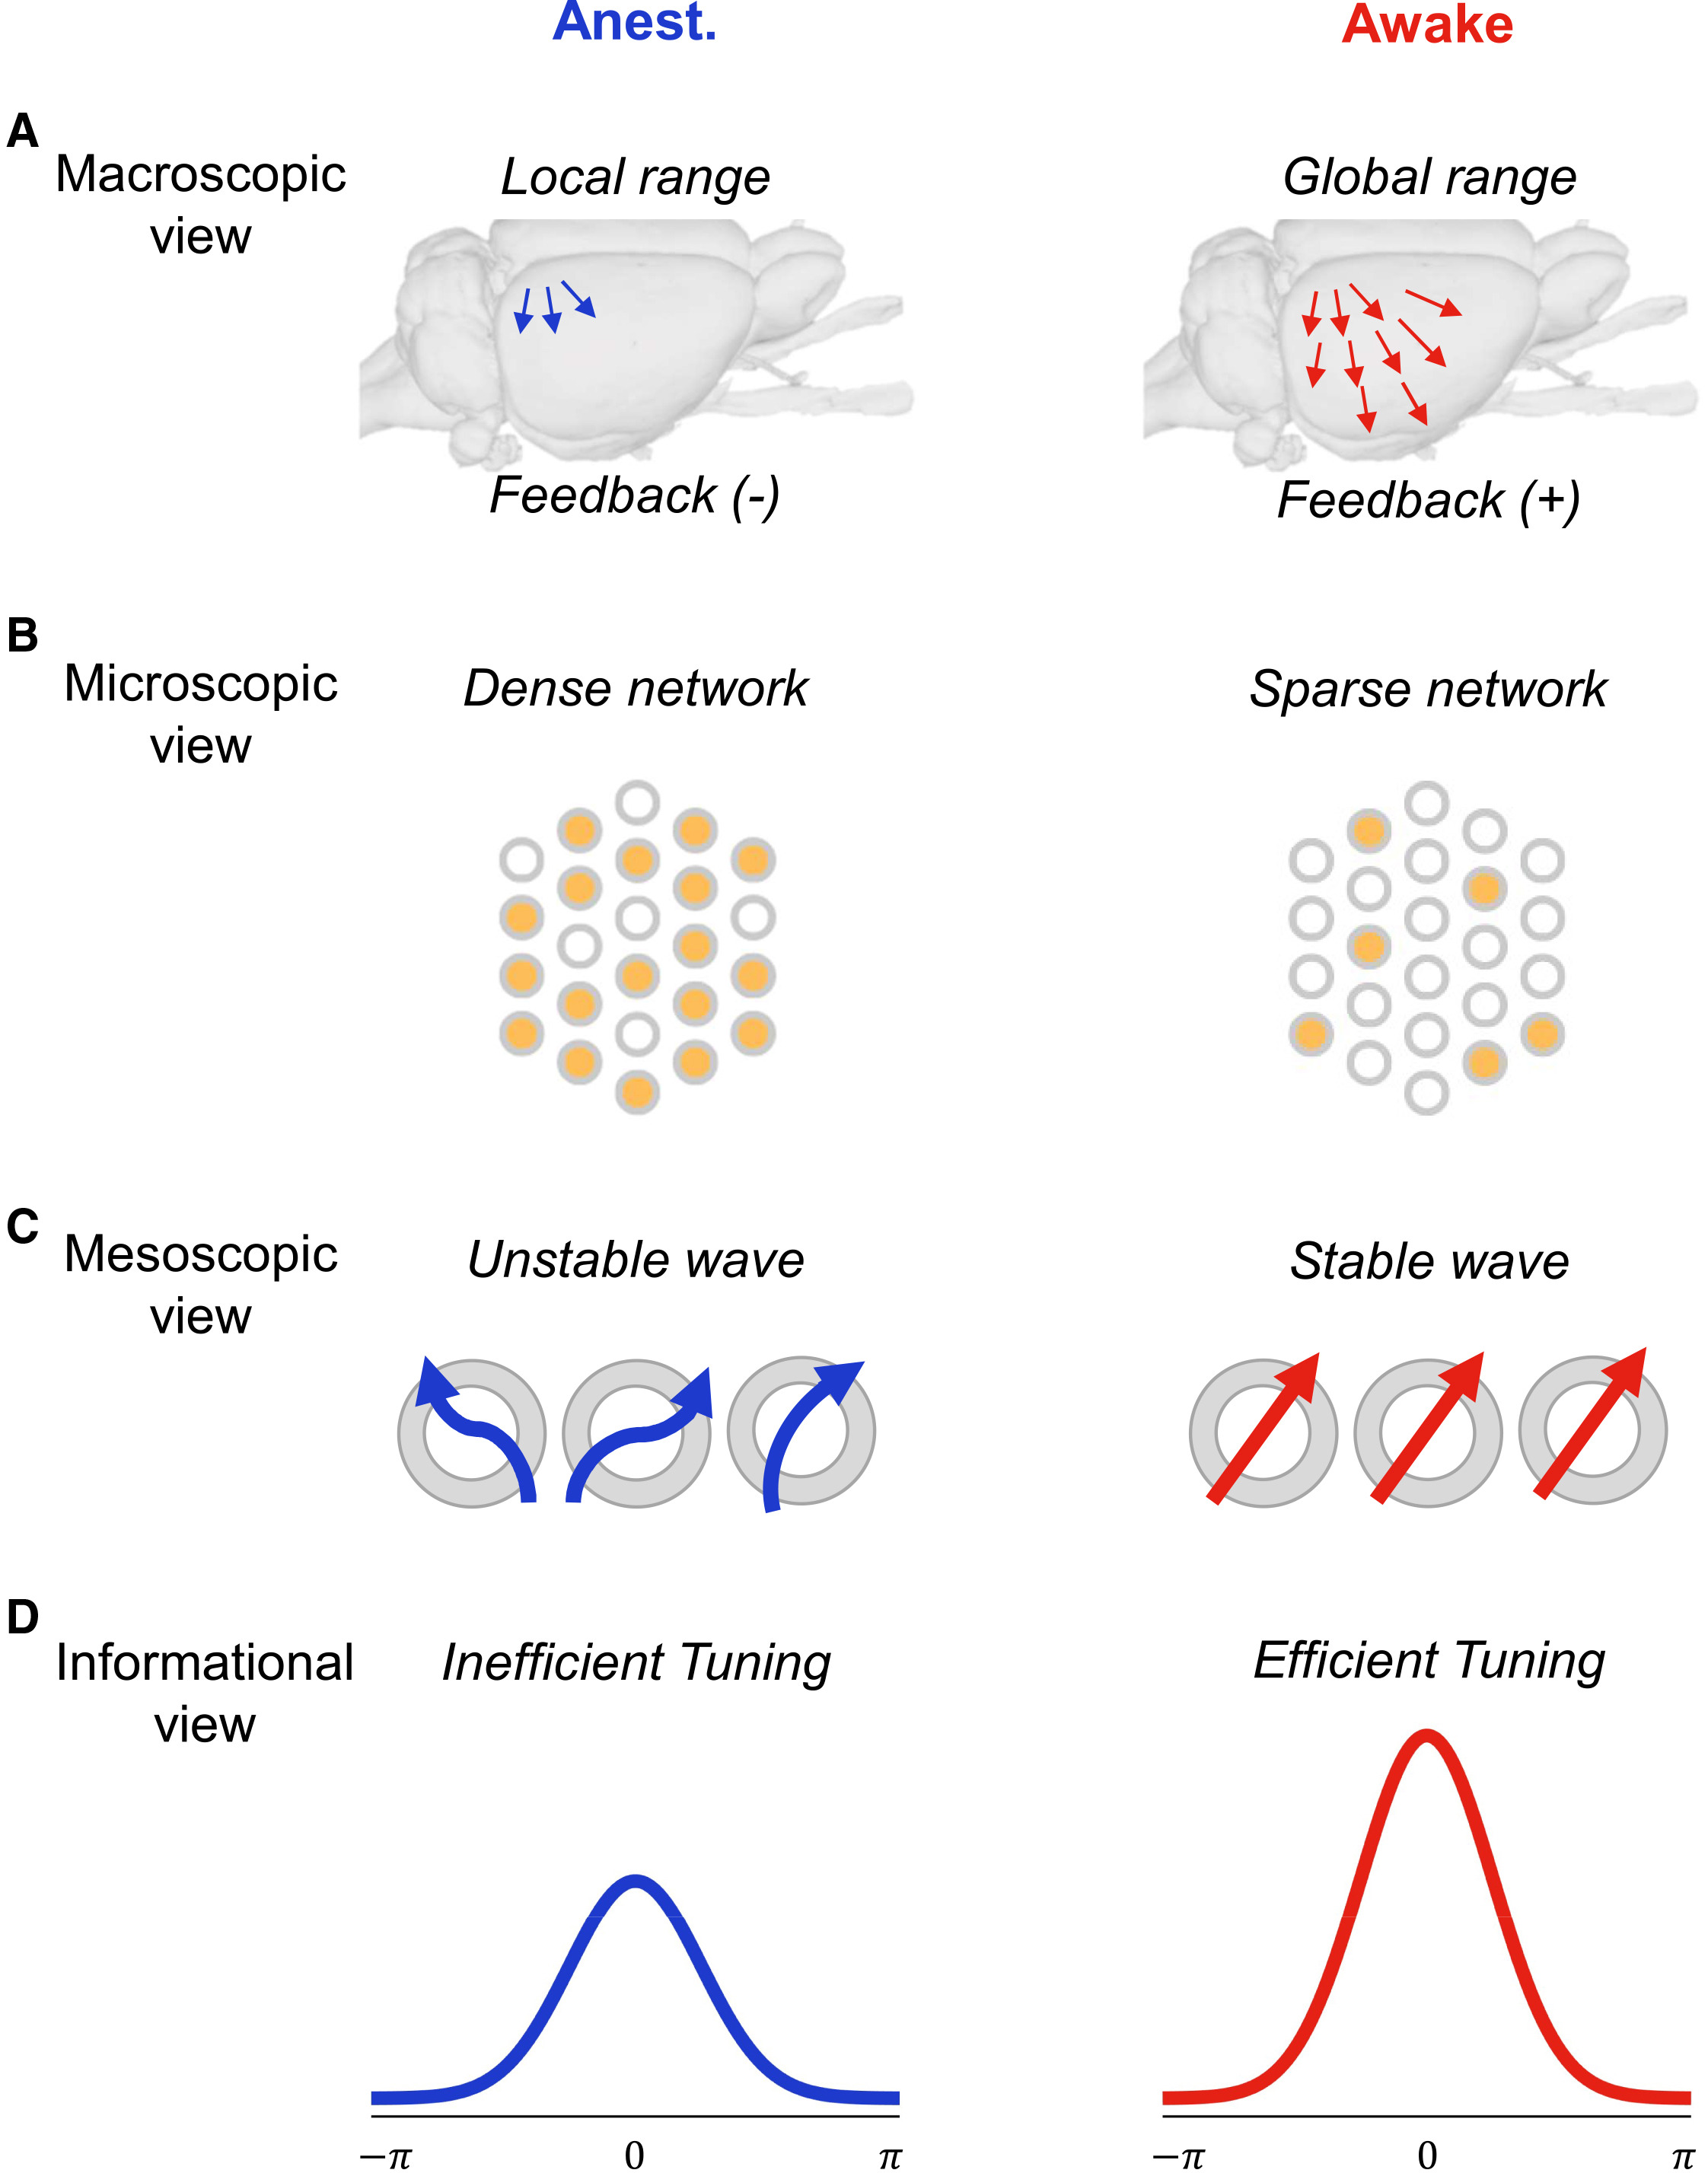
Характер распространения волн кардинально отличался в зависимости от того, спало животное под наркозом или бодрствовало. Авторы применили метод иерархической кластеризации и разделили пространственно-временные картины волн в первые триста миллисекунд после вспышки света на семь устойчивых типов — так называемых волновых мотивов.
Развитие реакции на зрительный стимул в состоянии бодрствования происходило по сложной траектории:
- Сначала (0-18 миллисекунд) наблюдалась фоновая активность.
- Затем (18-42 миллисекунды) возникал первичный зрительный ответ: волна зарождалась в первичной зрительной коре и шла во вторичную зрительную кору.
- Далее (43-64 миллисекунды) происходил разворот волны: фронт активности двигался от передней границы зрительной зоны к задней.
- После 65 миллисекунд начиналось глобальное распространение: волновые фронты выходили далеко за пределы затылочной доли и последовательно охватывали теменную, слуховую и соматосенсорную кору вплоть до 450 миллисекунд.
Под изофлурановым наркозом картина была принципиально иной:
- После фоновой активности первичный зрительный ответ возникал в первые 25-55 миллисекунд.
- Затем следовал короткий угасающий локальный ответ на 56-80 миллисекундах.
- После 80-120 миллисекунд наступала полная остановка процесса. Волна ни разу не покинула пределы зрительной зоны.
Особое внимание привлек поздний мотив 5, который формировался только у бодрствующих животных в интервале от ста пятидесяти до двухсот пятидесяти миллисекунд после стимула. Этот мотив продемонстрировал наивысшую степень информационной избирательности среди всех состояний. Поток трансферной энтропии во время этого мотива был максимально сконцентрирован вдоль вектора распространения волны, соединяя зрительные зоны с ассоциативными центрами.
Исследователи отметили важную деталь: общая суммарная величина трансферной энтропии под наркозом была даже выше, чем при бодрствовании. Но эта энтропия распределялась во всех направлениях хаотично. В заснувшем мозге присутствовал электрический сигнал высокой мощности, но он был полностью лишен пространственной организации. Бодрствующий мозг тратил меньше энергии на хаотическую активность, направляя меньший по амплитуде сигнал строго по целевым траекториям.
Клеточный фундамент: где находится биологический переключатель
Чтобы объяснить, почему наркоз разрушает глобальные волны, авторы сопоставили свои макроскопические наблюдения с известными данными клеточной нейробиологии.
Главную роль в формировании поздних широкомасштабных волн играют крупные пирамидные нейроны пятого слоя коры. Эти клетки имеют специфическую архитектуру. Их тела находятся глубоко в ткани мозга, а длинные отростки — апикальные дендриты — тянутся вертикально вверх, достигая самых верхних слоев: второго и первого.
Верхние слои коры служат зоной приема нисходящих регуляторных сигналов (top-down feedback). Эти сигналы поступают от высших ассоциативных и лобных центров обратно в первичные сенсорные зоны.
В бодрствующем мозге нисходящий сигнал обратной связи активирует тормозные вставочные нейроны (интернейроны) в слоях 2/3. Это торможение избирательно подавляет активность большинства фоновых клеток. Происходит процесс, который нейробиологи называют прореживанием активности (sparsification).
В результате прореживания плотная сеть неконтролируемого возбуждения превращается в разреженную структуру с выверенным балансом возбуждения и торможения. В такой обстановке импульс, приходящий на верхушку пирамидного нейрона, вызывает генерацию мощного кальциевого спайка. Этот спайк беспрепятственно доходит до тела клетки в пятом слое.
Активированный пирамидный нейрон передает возбуждение в соседние вертикальные колонки коры. За счет этого процесса волна стабилизируется, усиливается и приобретает способность перемещаться на расстояния в десятки миллиметров, выходя за пределы зрительной зоны.
Изофлуран и большинство других средств для общего наркоза вмешиваются именно в этот механизм. Наркоз вызывает явление, описанное в литературе как дендритное разобщение (dendritic decoupling). Под действием анестетика нарушается передача электрического потенциала между верхушечными дендритами и телом пирамидной клетки.
Обратная связь от высших зон перестает управлять нижними слоями. Тормозные интернейроны не получают команды на прореживание сети. В слоях 2/3 возникает избыточное диффузное возбуждение. Без точечного контроля кальциевые спайки перестают генерироваться, баланс между возбуждением и торможением рушится. В таких условиях устойчивая волна сформироваться не может: локальный зрительный сигнал угасает в затылочной коре, не успев передать свои данные остальному мозгу.
Мост к теориям сознания
Результаты работы ученых из Киотского университета вносят конкретику в главные современные концепции природы сознания: в теорию глобального нейронального рабочего пространства Станисласа Деана и теорию интегрированной информации Джулио Тонони.
Обе теории связывают сознание со способностью мозга объединять множество состояний в единое целое. Косвенным подтверждением этого служит индекс пертурбационной сложности (PCI). Он оценивает алгоритмическую сложность электрического эха в ответ на стимуляцию: если отклик локализован, индекс низок (нет сознания), если отклик разнообразен и охватывает всю кору, индекс высок (сознание есть).
В эксперименте на крысах индекс PCI у бодрствующих животных оказался закономерно выше, чем под изофлураном. Но исследование японских нейрофизиологов впервые показало точный физический механизм этой интеграции:
Бегущие электрические волны коры представляют собой рабочий способ маршрутизации информации. Согласованный фазовый градиент волны определяет направление переноса сигналов между анатомически удаленными зонами. Потеря сознания при общей анестезии вызвана распадом пространственной геометрии этих волн: сигналы запираются в локальных сенсорных границах, и мозг теряет способность связывать их в целостный опыт.
Источник: iScience
0 комментариев
Добавить комментарий