Куда на самом деле исчезают забытые воспоминания? Ученые нашли нейроны, управляющие правдой и ложью в памяти
Когда человек пытается вспомнить детали давнего разговора или обстановку в комнате, где он был несколько лет назад, его мозг не воспроизводит готовую сцену. Вместо этого нервная система заново собирает событие из отдельных фрагментов информации, хранящихся в разных синаптических сетях.
Этот процесс называют реконструкцией памяти. У него есть фундаментальная особенность: в момент восстановления воспоминание становится нестабильным. Если в этот момент человеку задать наводящий вопрос или поместить его в определенную обстановку, в структуру воспоминания могут встроиться детали, которых никогда не существовало в реальности. Так формируются ложные воспоминания.
Психологи доказали этот эффект еще в конце двадцатого века. Однако нейробиология долгое время не могла ответить на базовые физиологические вопросы: что именно происходит с клетками мозга, когда мы забываем информацию? Где физически находится воспоминание, если поведение на него больше не указывает? И какие конкретные нейронные цепи отвечают за то, чтобы восстановить реальный факт или, напротив, создать ложный?
Исследовательская группа под руководством Йоханнеса Фельзенберга из Института биомедицинских исследований Фридриха Мишера в Базеле опубликовала в журнале Nature Neuroscience работу, в которой впервые описала этот механизм на уровне отдельных клеток и синапсов. Объектом исследования стала плодовая мушка Drosophila melanogaster. Мозг этого насекомого содержит около ста сорока тысяч нейронов, а его анатомические связи полностью картированы, что дает возможность избирательно включать, отключать и наблюдать отдельные клетки в живом организме.
Содержание
- Эксперимент: как зафиксировать забывание
- Скрытый след: почему забытое не исчезает
- Архитектура грибовидного тела и разделение нейронов
- Дофаминовый переключатель: как мозг считывает обстановку
- Формирование ложной памяти: сбой реконструкции
- Два раздельных пути в одном мозге
- В чем смысл такой организации памяти
Эксперимент: как зафиксировать забывание
Чтобы изучить поведение памяти, исследователи использовали классическую методику отрицательного обучения с помощью Т-образного лабиринта.
Группу мух помещали в тренировочную камеру и подавали первый запах, одновременно воздействуя на их лапки серией коротких ударов электрического тока напряжением девяносто вольт. Этот запах становился для насекомых сигналом опасности. Затем следовала сорокапятисекундная пауза с подачей чистого воздуха, после чего мухам подавали второй запах, но уже без электрического тока. Этот второй запах служил безопасным фоновым сигналом.
Схема первичного обучения:
- Запах А (1 минута) + Электрический ток — Формирование реакции избегания
- Пауза (45 секунд)
- Запах Б (1 минута) без тока — Безопасный стимул в том же контексте
Одного такого сеанса достаточно, чтобы мухи начали уверенно избегать первого запаха. Если сразу после тренировки предоставить им выбор между двумя запахами в Т-образном лабиринте, подавляющее большинство выбирает сторону с безопасным запахом.
Однако память от однократного обучения недолговечна:
- Через полтора часа после тренировки реакция избегания заметно снижается.
- Через шесть часов реакция становится еще слабее.
- Спустя двадцать четыре часа мухи распределяются по рукавам лабиринта поровну. Поведенческий тест показывает нулевой результат: насекомые ведут себя так, будто никогда не получали ударов током.
Казалось бы, синаптические изменения, возникшие при обучении, полностью исчезли. Но последующие тесты показали обратное.
Скрытый след: почему забытое не исчезает
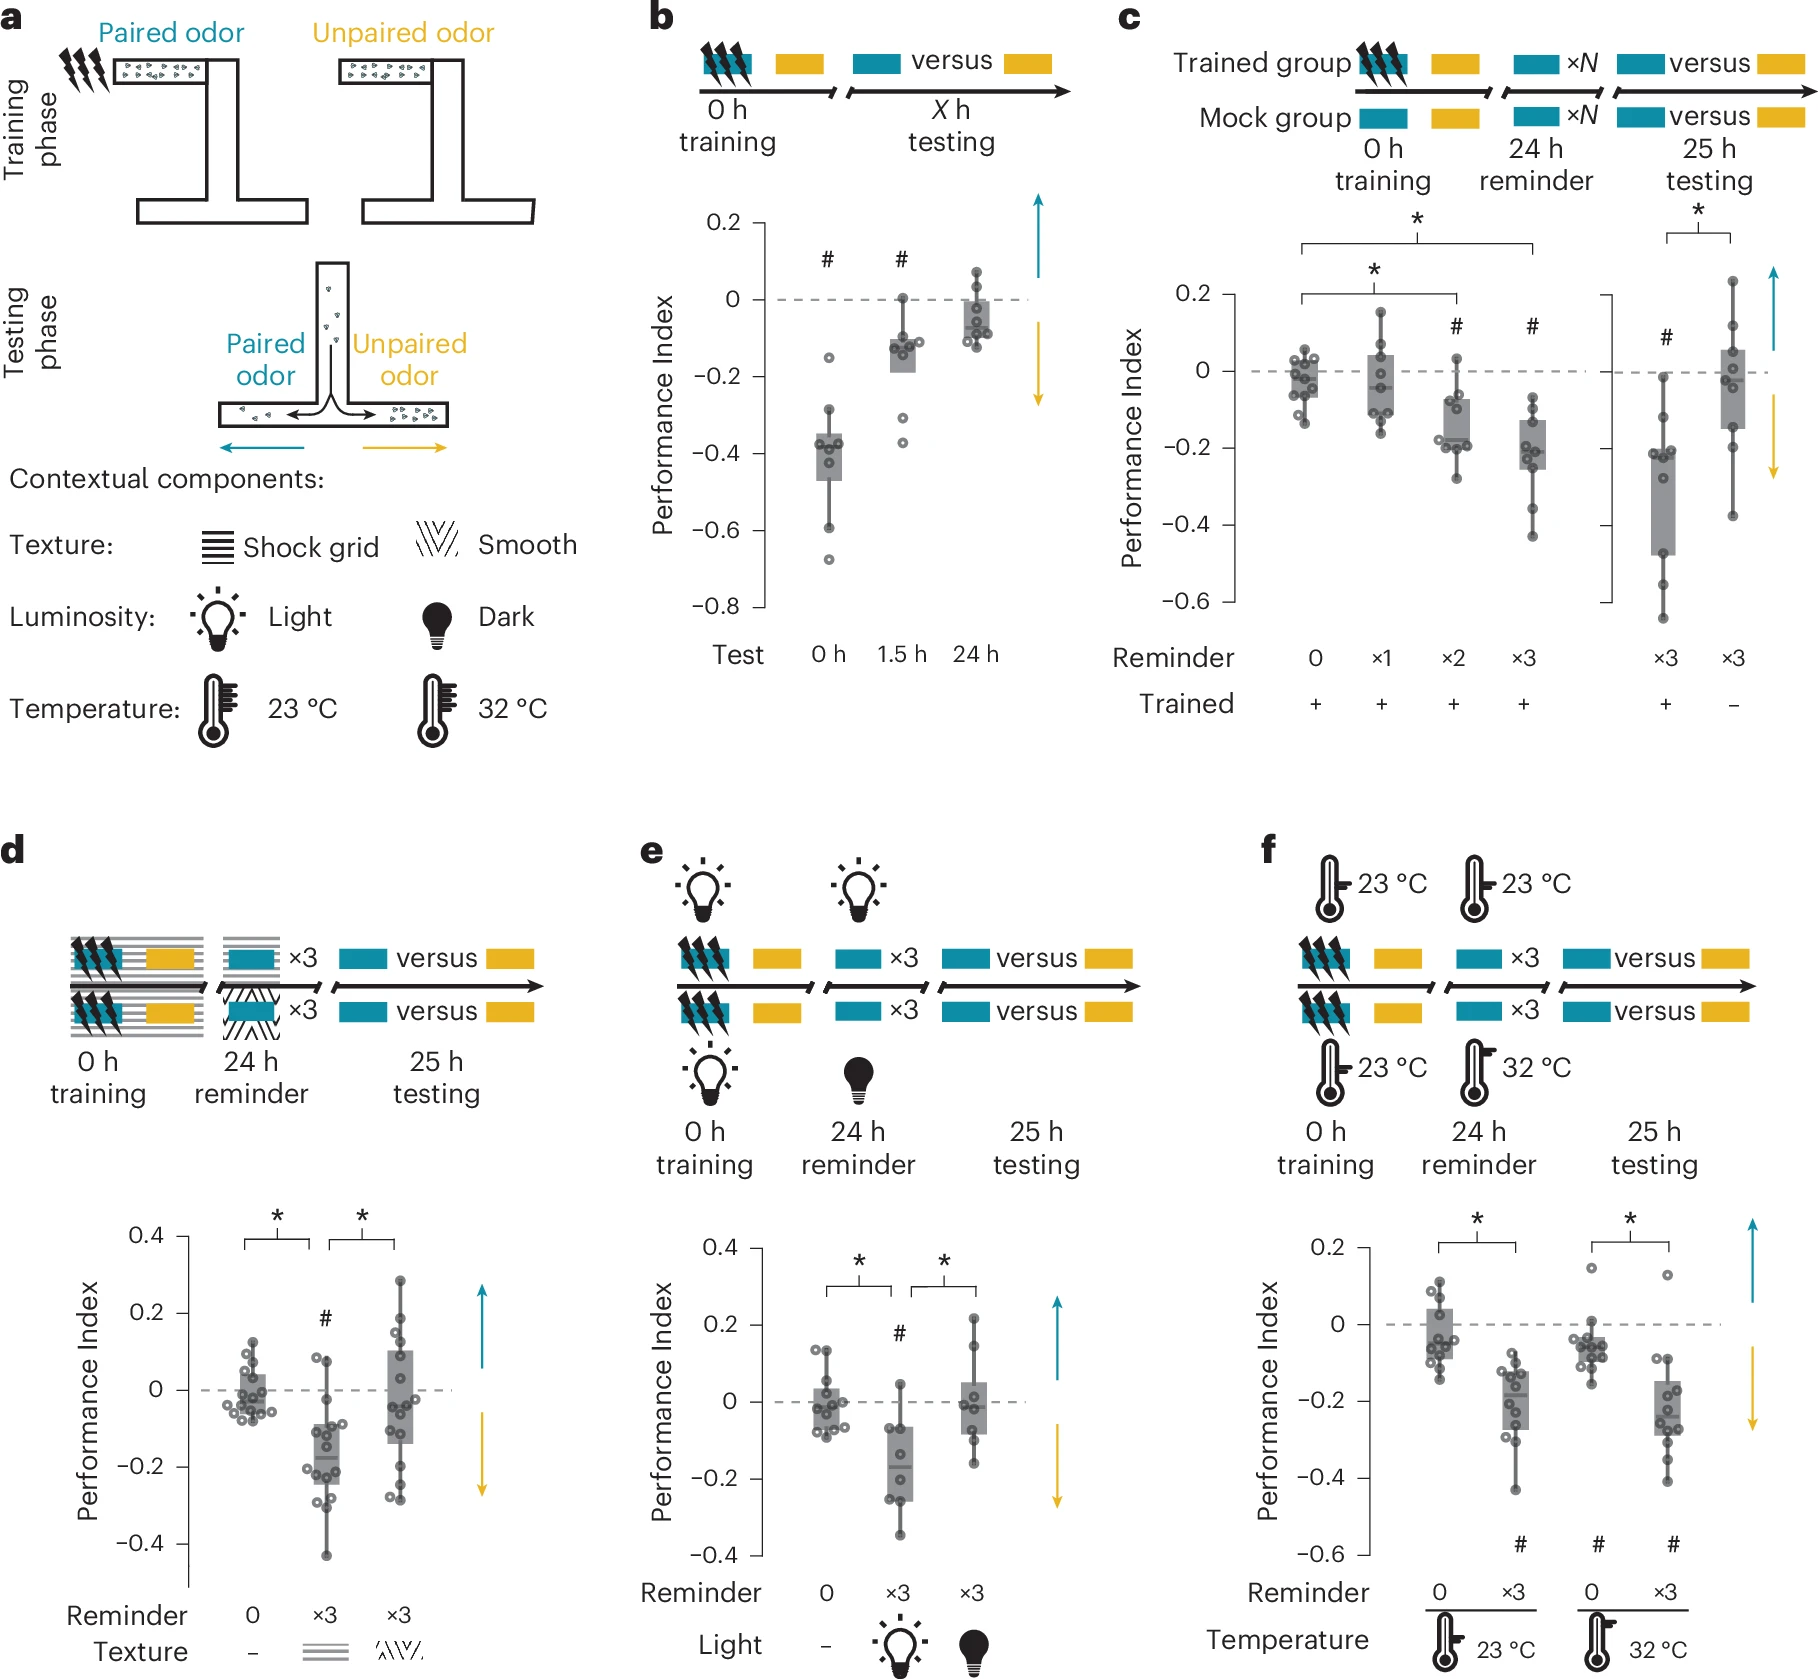
Исследователи взяли мух, которые после двадцати четырех часов полностью перестали реагировать на опасный запах, и поместили их обратно в тренировочную камеру. Там им трижды подали опасный запах по одной минуте, но без электрического тока. Это была процедура напоминания.
Через час после этой процедуры мух снова протестировали в Т-образном лабиринте. Насекомые вновь начали активно избегать опасного запаха. Повторение запаха без всякого физического наказания вернуло память в активное состояние.
Динамика проявления памяти:
- Обучение (0 часов) — Избегание есть
- Пауза (24 часа) — Избегания нет (память скрыта)
- Напоминание — Избегание полностью восстановлено
Чтобы исключить вероятность того, что процедура напоминания сама по себе испугала мух, ученые провели контрольные опыты:
- Мухам, которые во время первой тренировки не получали ударов током, провели процедуру напоминания. Они не начали избегать запаха.
- Процедуру напоминания провели через семь дней после обучения. Память все равно успешно вернулась.
Это доказало, что забывание информации не является ее физическим уничтожением в нервной системе. Память переходит из активной формы, управляющей поведением, в скрытую (латентную) форму, которая не проявляется в действиях, но сохраняется в нейронных цепях.
Архитектура грибовидного тела и разделение нейронов
Чтобы понять, как именно информация переходит из активного состояния в скрытое, необходимо разобрать устройство обонятельного центра насекомого — грибовидного тела.
Информация о запахах поступает в клетки Кеньона. Их тысячи, и каждая комбинация запахов активирует свой уникальный набор этих клеток. Затем сигналы от клеток Кеньона передаются на выходные нейроны грибовидного тела (MBON — Mushroom Body Output Neurons). Всего существует двадцать один тип таких нейронов.
Выходные нейроны делятся на три функциональные группы:
- Нейроны сближения. Их активация заставляет муху двигаться по направлению к запаху.
- Нейроны избегания. Их активация заставляет муху улетать или убегать от источника запаха.
- Нейтральные нейроны. Их прямая активация или выключение не вызывает у мухи выраженного движения в какую-либо сторону. Их роль долго оставалась непонятной.
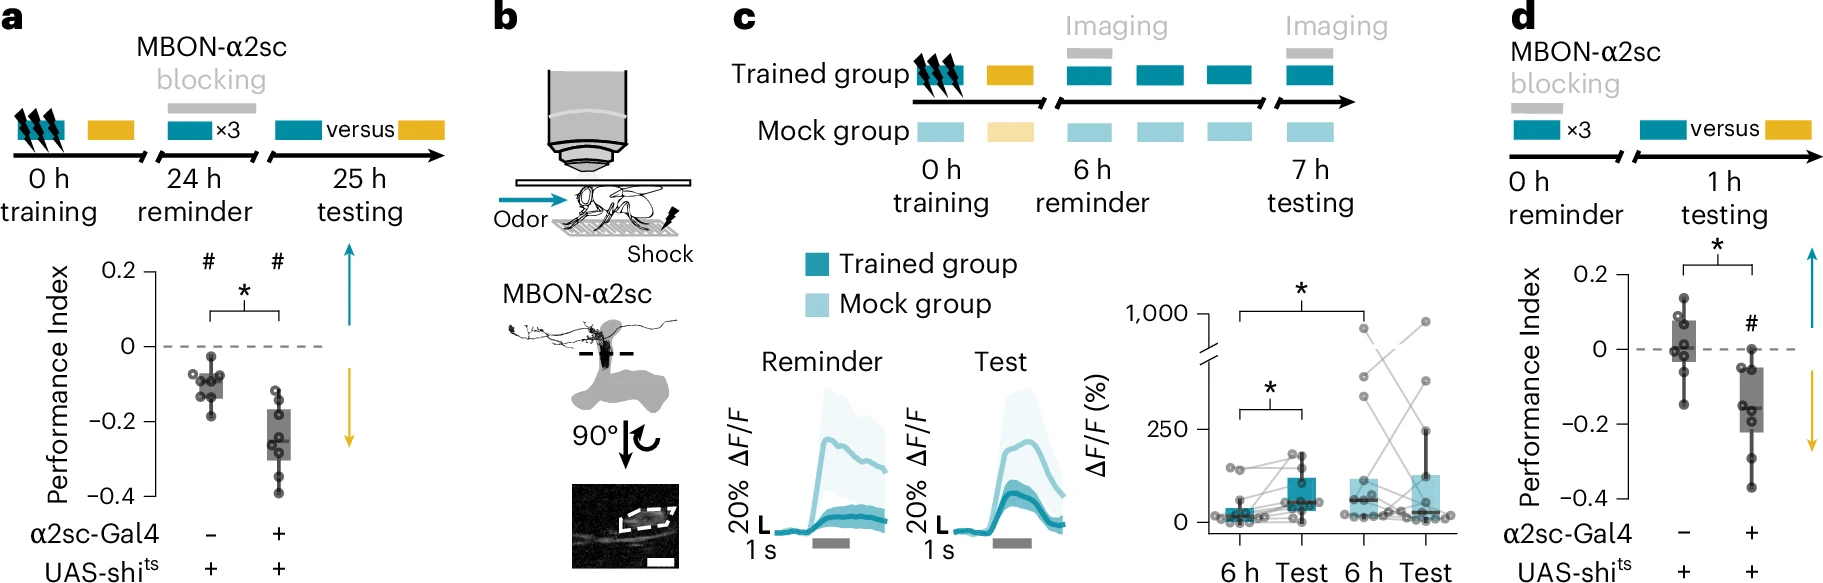
С помощью двухфотонного микроскопа и флуоресцентных кальциевых сенсоров GCaMP7s ученые измерили электрическую активность отдельных нейронов в мозге живых мух на разных этапах опыта.
Реакция нейронов при обучении и забывании
Сразу после обучения (0 часов):
- Клетки сближения MBON-γ1ped>αβ: активность подавлена (муха избегает запах)
- Нейтральные клетки MBON-α2sc: активность в норме
Через 6 часов (после забывания):
- Клетки сближения MBON-γ1ped>αβ: активность восстановилась (поведения нет)
- Нейтральные клетки MBON-α2sc: активность снизилась (сформирован скрытый след)
Сразу после удара током в нейронах сближения MBON-γ1ped>αβ падает чувствительность к опасному запаху. Сигнал сближения исчезает, сигнал избегания начинает преобладать, и муха убегает от запаха. Это активный след памяти.
Через два часа чувствительность MBON-γ1ped>αβ к запаху восстанавливается до исходного уровня. Муха перестает избегать стимул. В то же самое время во второй группе клеток — нейтральных нейронах MBON-α2sc — начинает медленно развиваться угнетение синаптического ответа на этот же запах.
Пока активный след угасает в поведенческих нейронах, в нейтральных нейронах формируется скрытый след.
Чтобы доказать причинную связь, ученые использовали трансгенный белок Shibire. При повышении температуры этот белок блокирует передачу сигналов в синапсах выбранных клеток. Исследователи искусственно выключили нейтральные нейроны MBON-α2sc у необученных мух в момент подачи запаха. Спустя час эти мухи начали демонстрировать избегание запаха, в точности повторяя поведение обученных особей.
Кроме того, ученые ввели в клетки Кеньона термочувствительный токсин рицин, блокирующий синтез новых белков. Если синтез белков подавлялся во время и сразу после тренировки, память через двадцать четыре часа восстановить не удавалось. Это доказало: чтобы скрытый след закрепился в нейтральных нейронах, мозгу требуется полноценный синтез белковых молекул.
Дофаминовый переключатель: как мозг считывает обстановку
Память не восстанавливается автоматически от одного лишь появления запаха. Для успешного считывания скрытого следа критически важен контекст среды.
Ученые меняли условия во время сеанса напоминания:
- Освещение. Если напоминание проводилось в темноте, а тренировка — при свете, память не восстанавливалась.
- Текстура поверхности. На полу тренировочной камеры находилась металлическая решетка для подачи тока. Если во время напоминания мух пересаживали в камеру с гладкими пластиковыми стенками, память не восстанавливалась.
- Температура. Изменение температуры воздуха не влияло на процесс: мухи успешно восстанавливали память как при двадцати трех, так и при тридцати двух градусах Цельсия.
Информация о шершавости решетки улавливается механорецепторами на лапках мухи, передается через сенсомоторный центр антенн (AMMC) в латеральный рог — зону мозга, объединяющую зрение, осязание и обоняние, — а оттуда направляется в грибовидное тело.
Сенсорная интеграция при восстановлении: механорецепторы лапок (текстура) и зрительные рецепторы (свет) передают сигналы через центр AMMC в латеральный рог. Оттуда информация о контексте вместе со скрытым следом из клеток Кеньона поступает на дофаминовые нейроны PPL1-α′2α2. Нейроны PPL1-α′2α2 реактивируют клетки MBON-γ1ped>αβ, возвращая реакцию избегания.
Главным связующим звеном этого процесса оказалась одна конкретная пара дофаминергических нейронов — PPL1-α′2α2.
Эти клетки обладают уникальными свойствами:
- Они не реагируют на удары электрического тока во время первичного обучения.
- Их искусственная стимуляция во время подачи запаха не заставляет муху бояться этого запаха.
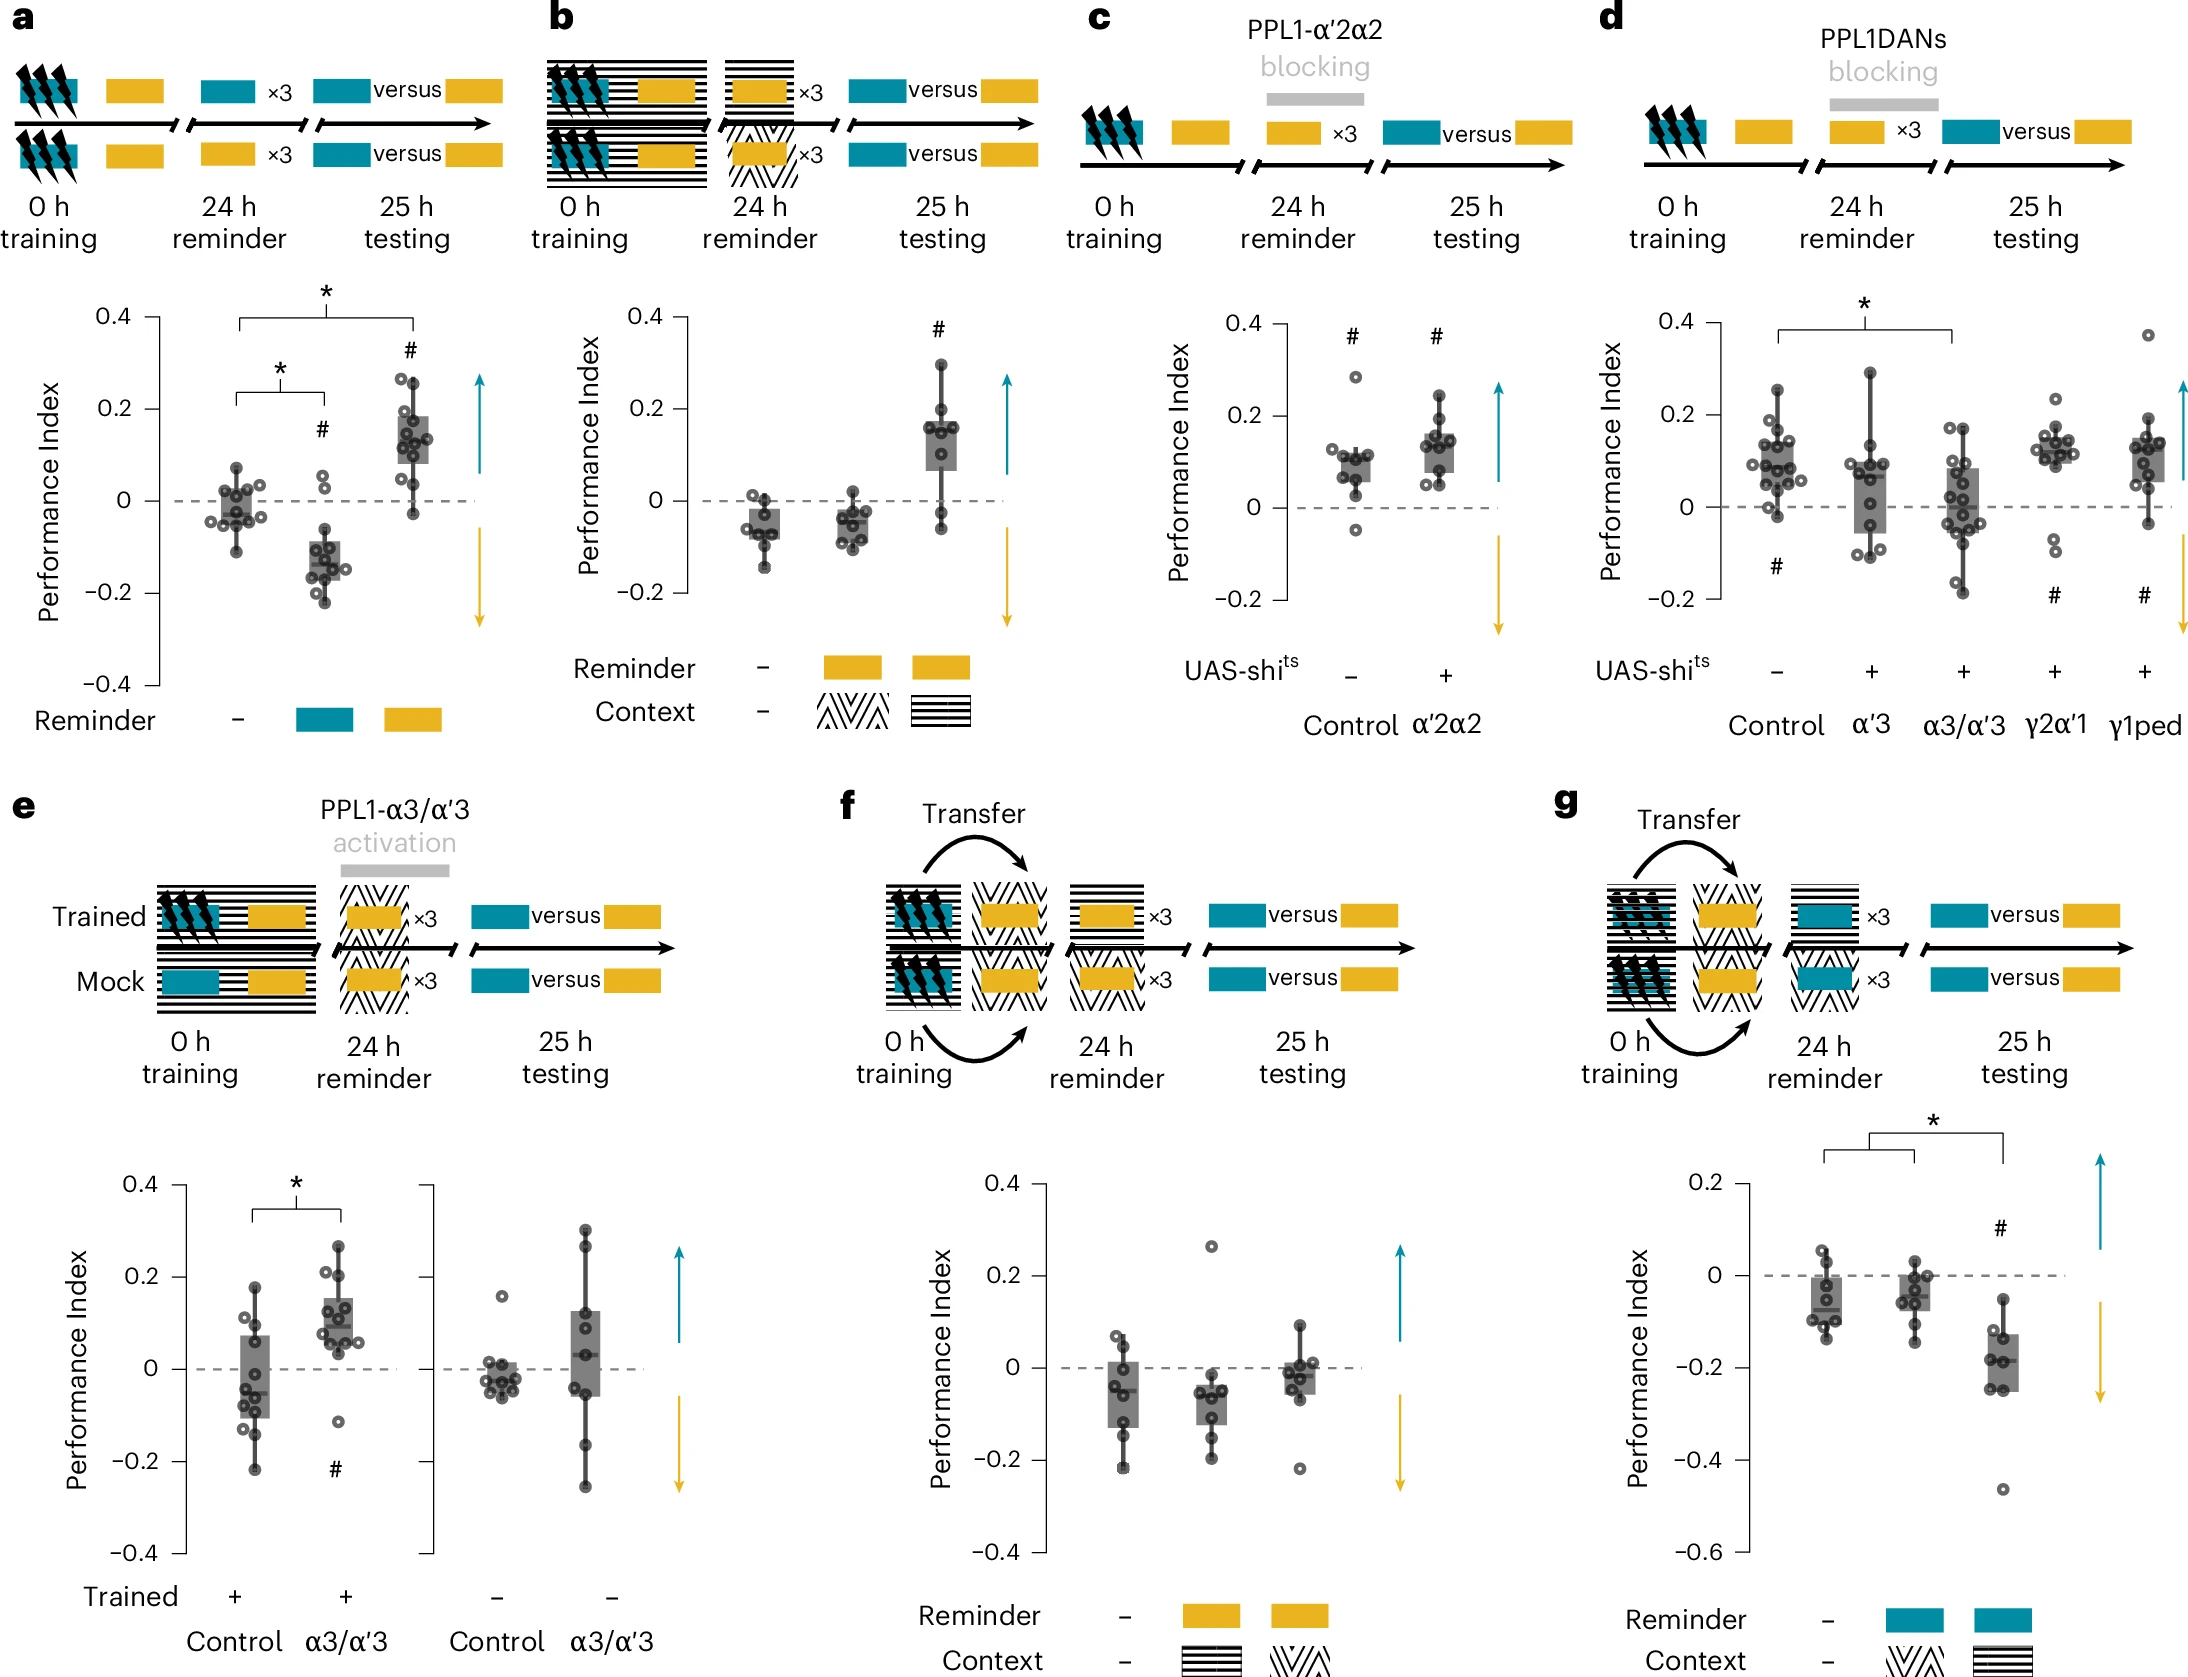
- Однако их выключение во время процедуры напоминания полностью блокирует восстановление забытой памяти.
Если же активировать нейроны PPL1-α′2α2 искусственно с помощью термогенетических каналов dTRPA1, мухи успешно восстанавливают память даже в неполном контексте — например, в гладкой камере без сетки.
Нейроны PPL1-α′2α2 работают как регуляторный узел: они сопоставляют сигналы среды от латерального рога и обонятельные сигналы от клеток Кеньона. Если контекст совпадает, они передают дофаминовый сигнал, который заново переводит синапсы нейронов сближения MBON-γ1ped>αβ в подавленное состояние. В результате реакция избегания возвращается в поведение.
Формирование ложной памяти: сбой реконструкции
Поскольку извлечение памяти требует активного участия контекстуальных сигналов и дофаминовой модуляции, эту систему можно заставить реконструировать события с ошибкой.
Ученые изменили протокол напоминания. Через двадцать четыре часа после обучения мух поместили в тренировочную камеру с решеткой и правильным освещением, но подали им не опасный запах, а второй — нейтральный, который во время тренировки подавался без удара током.
Результат: мухи начали устойчиво избегать этого нейтрального запаха. У них сформировалось ложное воспоминание. Они вели себя так, будто именно этот второй запах сопровождался ударами тока.
Эксперимент по индукции ложного следа:
- Тренировка: Запах А с током и Запах Б без тока (в камере с решеткой).
- Забывание: 24 часа паузы.
- Напоминание: Подача Запаха Б без тока в камере с решеткой.
- Результат: Мухи избегают Запах Б (формирование ложной памяти).
Это искажение имело строгие биологические ограничения:
- Если мухам в тренировочной камере подавали совершенно новый запах, которого не было на тренировке (например, этилбутират с фруктовым запахом), ложной памяти не возникало. Мухи не начинали его бояться.
- Если нейтральный запах подавали в другой обстановке (на гладких стенках), ложная память также не формировалась.
Чтобы ложное воспоминание закрепилось, стимул обязательно должен был присутствовать в исходном эпизоде обучения и предъявляться в той же обстановке. Мозг не выдумывает опыт заново, он ошибочно перераспределяет отрицательный знак опасности между объектами, которые находились в поле восприятия во время одного и того же события.
Два раздельных пути в одном мозге
Главный вопрос заключался в том, использует ли мозг одну и ту же дофаминовую систему для восстановления истинных воспоминаний и для создания ложных.
Эксперименты с избирательным генетическим выключением синапсов дали однозначный ответ: эти пути анатомически разделены.
Анатомическое разделение процессов:
- Истинное воспоминание: запах А (сочетался с током) активирует дофаминовые нейроны PPL1-α′2α2, запуская реакцию избегания.
- Ложное воспоминание: запах Б (подавался без тока) активирует дофаминовые нейроны PPL1-α3/α′3, запуская реакцию избегания.
- Блокировка нейронов PPL1-α′2α2: полностью останавливает восстановление истинной памяти при подаче опасного запаха, но никак не мешает формированию ложной памяти при подаче нейтрального запаха.
- Блокировка нейронов PPL1-α3/α′3: полностью предотвращает возникновение ложного воспоминания, но оставляет процесс истинного восстановления незатронутым.
Истинное восстановление и ложная генерация контролируются параллельными парами дофаминергических нейронов, которые проецируются в разные участки долей грибовидного тела. Мозг дрозофилы имеет независимые синаптические цепи для считывания исходного опыта и для переноса признака опасности на сопутствующие стимулы.
В чем смысл такой организации памяти
На первый взгляд, возможность создания ложных воспоминаний выглядит как дефект биологической системы. Однако на уровне выживания организма такая архитектура имеет четкую логику.
Если бы нервная система жестко фиксировала связь «один стимул — одна реакция» без возможности ее модификации, поведение животного стало бы негибким. В реальной природе условия постоянно меняются: источник опасности может сместиться, а сопутствующие признаки среды могут стать важнее первоначального фактора.
Разделение памяти на активный и скрытый компоненты решает сразу две задачи:
- Экономия ресурсов поведения. Животное не тратит энергию на постоянное избегание стимула, с которым давно не сталкивалось. Активный синаптический след угасает, освобождая нейроны управления движением для текущих задач.
- Сохранение информации. Опыт не стирается на молекулярном уровне. Он оседает в нейтральных нейронах в виде скрытого следа и может быть активирован за секунды при совпадении условий среды.
Ложная память в этих условиях — прямое следствие адаптивности. Когда контекст указывает на знакомую опасность, нервная система превентивно связывает отрицательное подкрепление со всеми стимулами, которые присутствовали в этом контексте ранее.
Это доказывает, что механизм реконструкции памяти, впервые подробно описанный у дрозофилы, представляет собой базовое эволюционное свойство нервных систем: память существует не для протоколирования прошлого, а для постоянного прогнозирования будущего на основе фрагментов накопленного опыта.
Источник: Nature Neuroscience




0 комментариев
Добавить комментарий