Как возникла сложная жизнь: ученые впервые сняли контакт микробов, сделавший возможной эволюцию человека
Все живые организмы на Земле разделены на две принципиально разные группы: прокариоты и эукариоты. Прокариоты — это бактерии и археи. Их клетки устроены относительно просто: они малы по размеру, лишены оформленного ядра, не имеют сложной сети внутренних мембран и развитого белкового скелета. Эукариоты — это растения, грибы, животные и одноклеточные простейшие. Их клетки крупнее на порядки, содержат замкнутые внутренние компартменты, органеллы и ядро с генетическим материалом.
Эволюционный переход от прокариот к эукариотам называют эукариогенезом. Согласно современным научным данным, он произошел примерно 2,1-2,3 миллиарда лет назад. В основе этого процесса лежало слияние двух разных микроорганизмов: клетка из группы архей стала организмом-хозяином, а поглощенная ею бактерия трансформировалась в митохондрию — клеточную структуру, обеспечивающую организм энергией за счет кислородного дыхания.
Долгое время биологи не могли определить, какая именно группа архей дала начало эукариотам. Прорыв произошел в 2015 году, когда при исследовании глубоководных донных осадков в Атлантическом океане ученые обнаружили генетические следы ранее неизвестных микроорганизмов. Эту группу назвали суперфилумом Асгард (в него входят локиархеи, торархеи, одинархеи и хеймдаллархеи). В их геномах впервые нашли гены белков, которые до этого момента считались исключительной особенностью сложных клеток: компоненты цитоскелета, системы внутреннего мембранного транспорта и сигнальные молекулы.
Однако обнаружение ДНК в донном иле не позволяло увидеть сами организмы. Чтобы понять форму клеток, принципы их деления и механизмы взаимодействия с другими микробами, их требовалось вырастить в лаборатории. Культивирование асгард-архей сопряжено с колоссальными техническими трудностями. Они живут в строго бескислородных условиях, растут крайне медленно (на одно деление клетки уходят недели), а главное — не могут существовать в изоляции, требуя присутствия строго определенных микроорганизмов-партнеров.
Первый лабораторный изолят асгард-архей (Promethearchaeum syntrophicum) японские исследователи получали более двенадцати лет. Второй (Lokiarchaeum ossiferum) также потребовал многолетней работы с осадками из прибрежных вод. В обоих случаях ученые наблюдали совместный рост архей с другими микроорганизмами, но зафиксировать структуру прямого межклеточного контакта между ними не удавалось.
В исследовании, опубликованном в научном журнале Current Biology, международная группа биологов под руководством Брендона Бернса и Дебната Госала из Австралии сообщила о выделении нового представителя асгард-архей из природного сообщества другого типа — мелководных микробных матов. Ученые не просто вырастили культуру высокой степени чистоты, но и впервые подробно описали механическое соединение между археей и бактерией-партнером на нанометровом уровне.
Содержание
Природная среда и пятилетний эксперимент
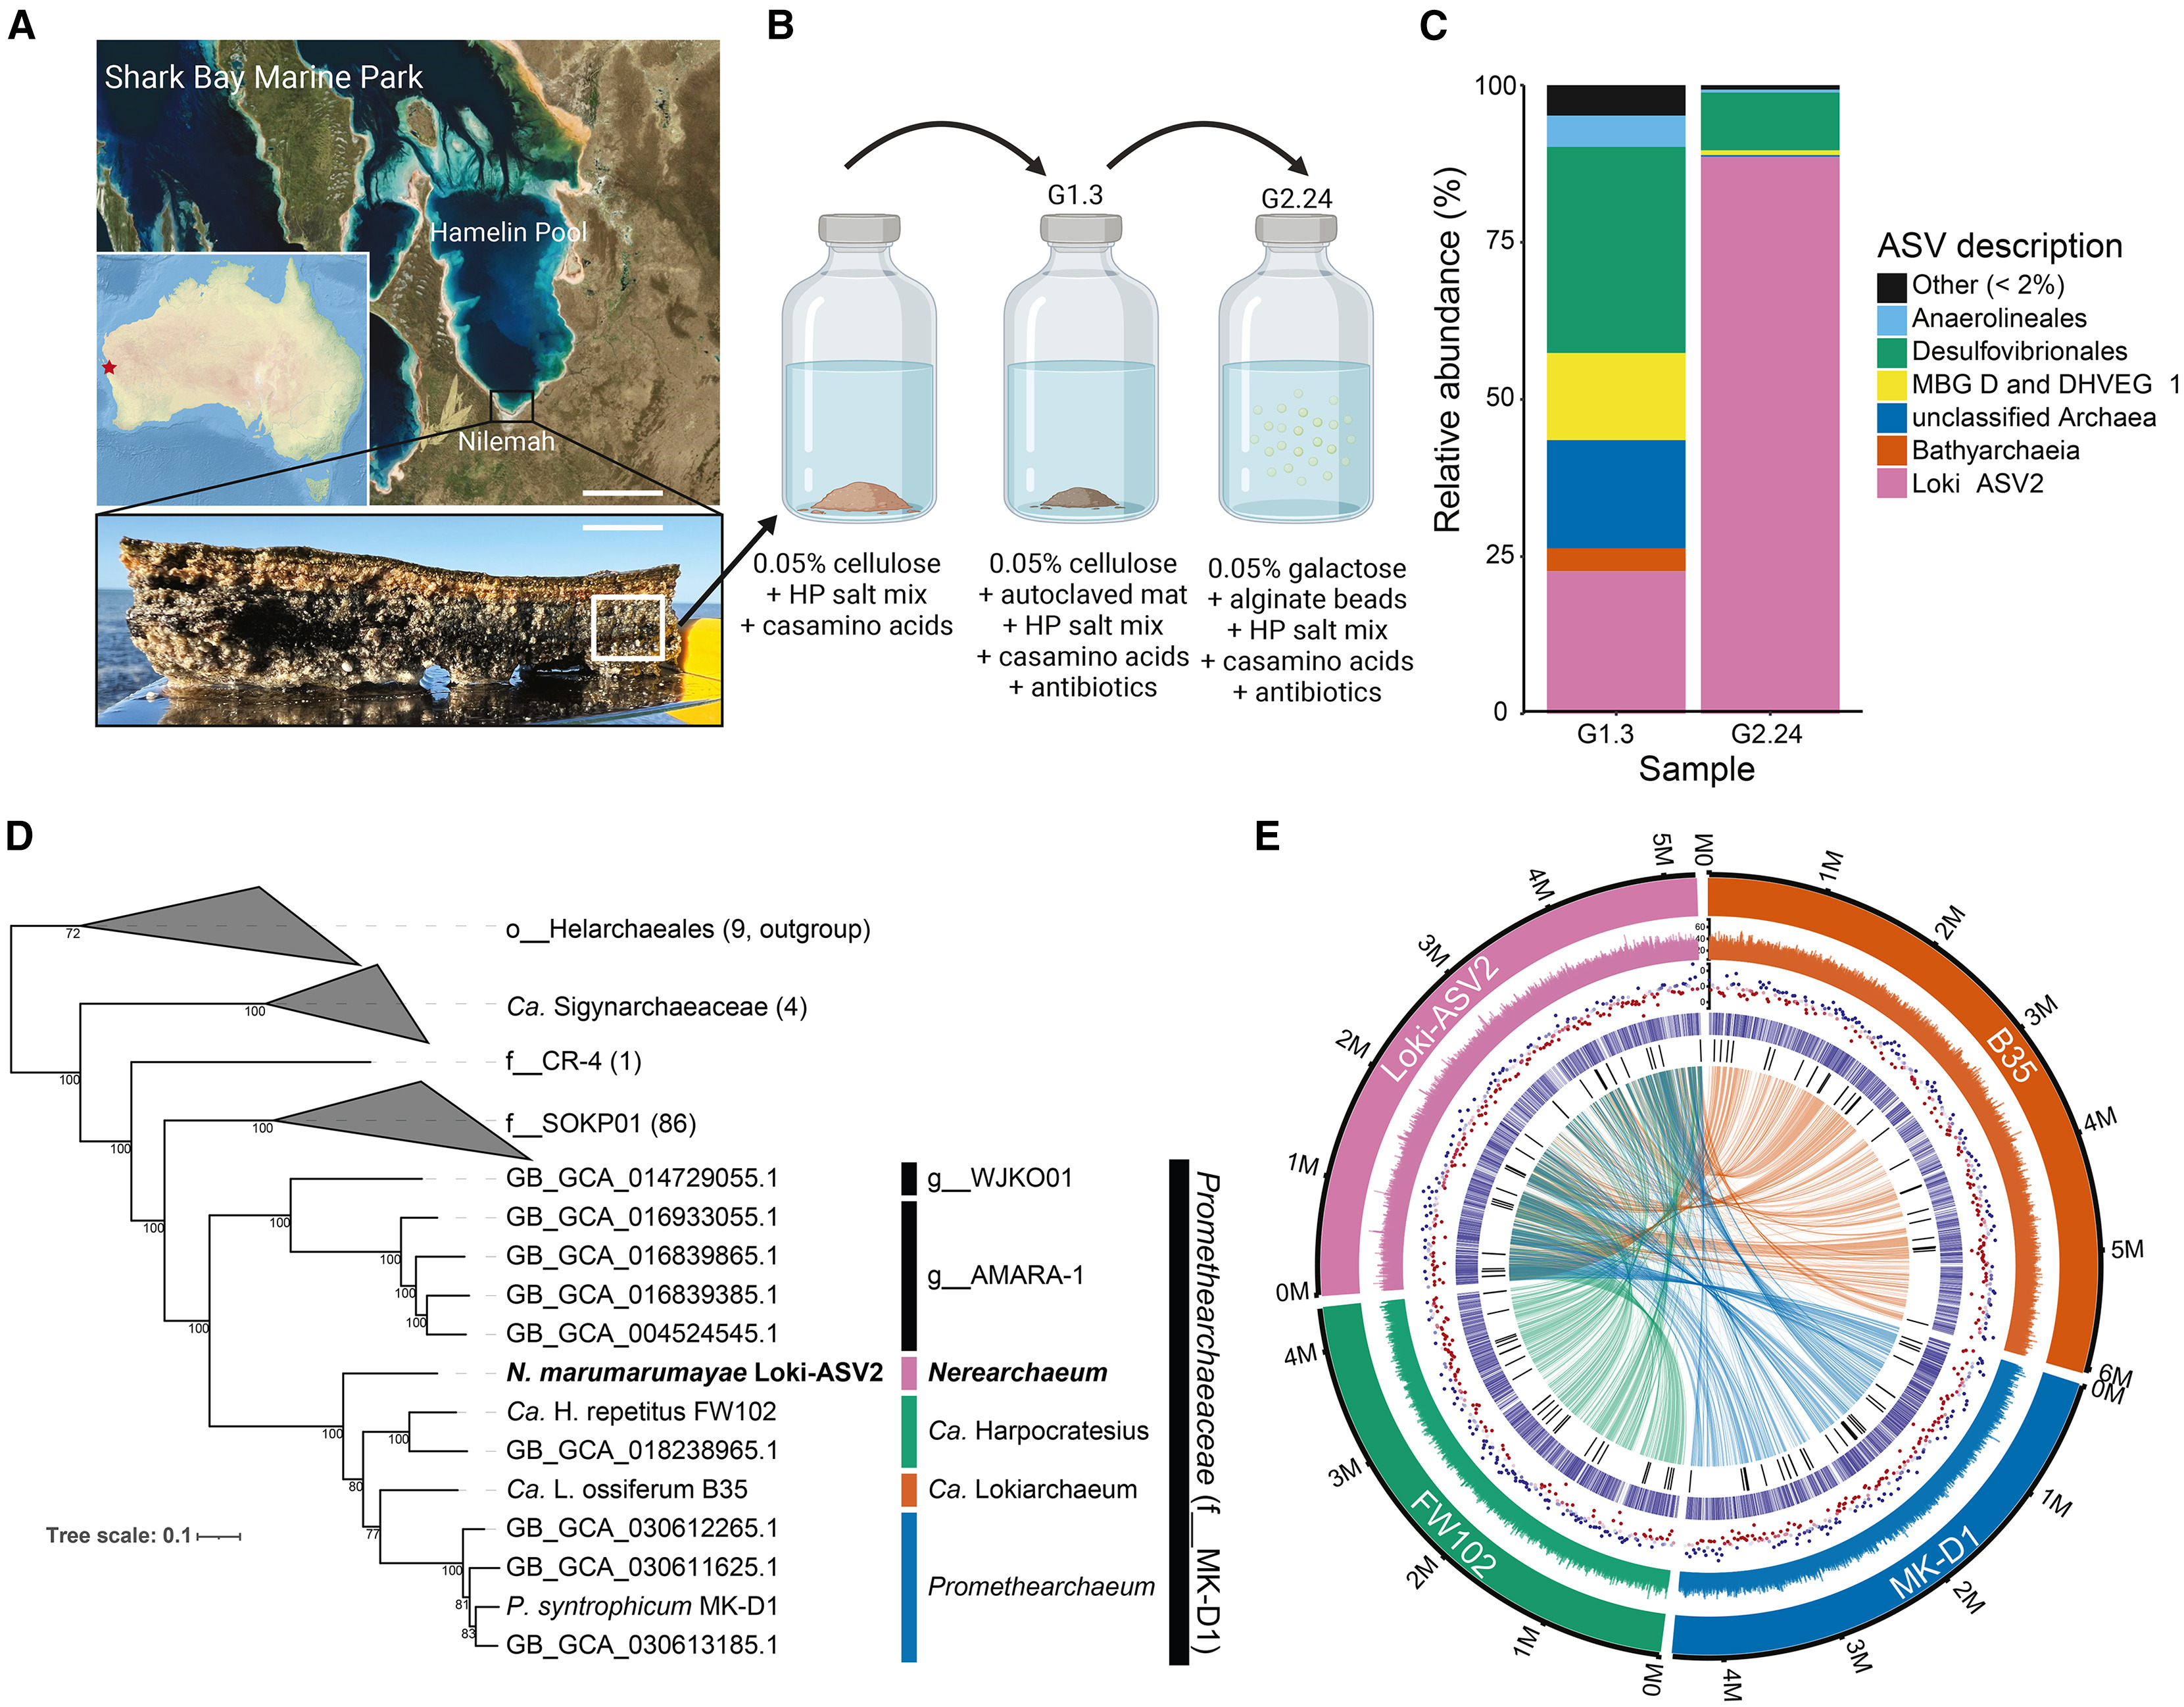
Большинство предыдущих поисков асгард-архей велось в глубоководных морских осадках. Авторы новой работы выбрали принципиально иную экосистему — залив Шарк в Западной Австралии. Местная лагуна Хэмелин-Пул отличается экстремальной соленостью: концентрация солей здесь достигает 7%, что вдвое превышает средние показатели открытого океана. В этих водах формируются строматолиты и микробные маты — плотные многослойные пленки толщиной в несколько сантиметров, состоящие из сотен видов переплетенных микроорганизмов.
Микробные маты залива Шарк считаются прямыми аналогами экосистем протерозойской эры. Поверхностные слои матов насыщены кислородом, который активно вырабатывают фотосинтезирующие цианобактерии. На глубине более десяти миллиметров кислород полностью исчезает. Там формируется восстановительная среда, богатая сероводородом и водородом. В этом темном и плотном осадке разные группы микробов выживают за счет синтрофии — метаболического сотрудничества, при котором продукты жизнедеятельности одних клеток служат единственным источником энергии и углерода для других.
В марте 2019 года исследователи отобрали образцы мата на участке Нилемах. Для посева использовали полосу осадка, расположенную на глубине 12-18 миллиметров от поверхности, где кислород полностью отсутствует.
Чтобы получить культуру, обогащенную асгард-археями, потребовалось пять лет последовательных пересевов. Эксперимент строился на следующих параметрах:
- Газовый состав и температура: культивацию вели строго без доступа кислорода в атмосфере из 80% азота и 20% углекислого газа при постоянной температуре 30 °C.
- Минеральная основа: питательная среда воспроизводила солевой состав залива Шарк с высокой концентрацией хлоридов натрия, магния, кальция и калия.
- Источники питания: на ранних этапах использовали целлюлозу и аминокислоты, но затем перешли на галактозу. Анализ геномов асгард-архей показал, что они кодируют множество ферментов для расщепления именно этого сахара.
- Антибиотики: ампициллин, канамицин, стрептомицин и тетрациклин добавляли в среду, чтобы подавить быстрорастущие бактерии, которые в обычных условиях вытесняют медленно делящиеся археи.
- Искусственный субстрат: вместо фрагментов природного грунта в колбы поместили пористые шарики из альгината кальция. Это создало механическую опору для прикрепления клеток без внесения посторонних органических примесей.
Каждые три месяца ученые оценивали долю организмов в культуре методом секвенирования гена 16S рРНК. К шестому месяцу непрерывного роста на среде с галактозой и альгинатными гранулами исследователи получили культуру G2.24. В ней 89% популяции составляла единая линия асгард-архей, получившая обозначение Loki-ASV2. Еще 9% биомассы приходилось на сульфатредуцирующую бактерию Desulfo-ASV1. Остальные 2% составляли следовые количества других бактерий и архей.
Ученые прочитали полные геномы обоих преобладающих микроорганизмов, объединив методы короткопрокатного и длиннопрокатного нанопорового секвенирования. Анализ показал, что перед ними два абсолютно новых биологических рода. По правилам Международного кодекса номенклатуры прокариот (SeqCode) организмам присвоили научные имена:
- архея названа Nerearchaeum marumarumayae (род назван в честь древнегреческого морского старца Нерея, а видовой эпитет происходит из языка коренных австралийцев малгана и переводится как «древний дом»);
- бактерия получила имя Stromatodesulfovibrio nilemahensis (указывает на происхождение из строматолитовых матов местности Нилемах и принадлежность к группе бактерий, восстанавливающих соединения серы).
Кольцевой геном Nerearchaeum marumarumayae содержит 5 262 386 пар нуклеотидов и кодирует 4544 белка. Это относительно крупный геном для свободноживущих прокариот.
Форма клеток и сложная поверхность
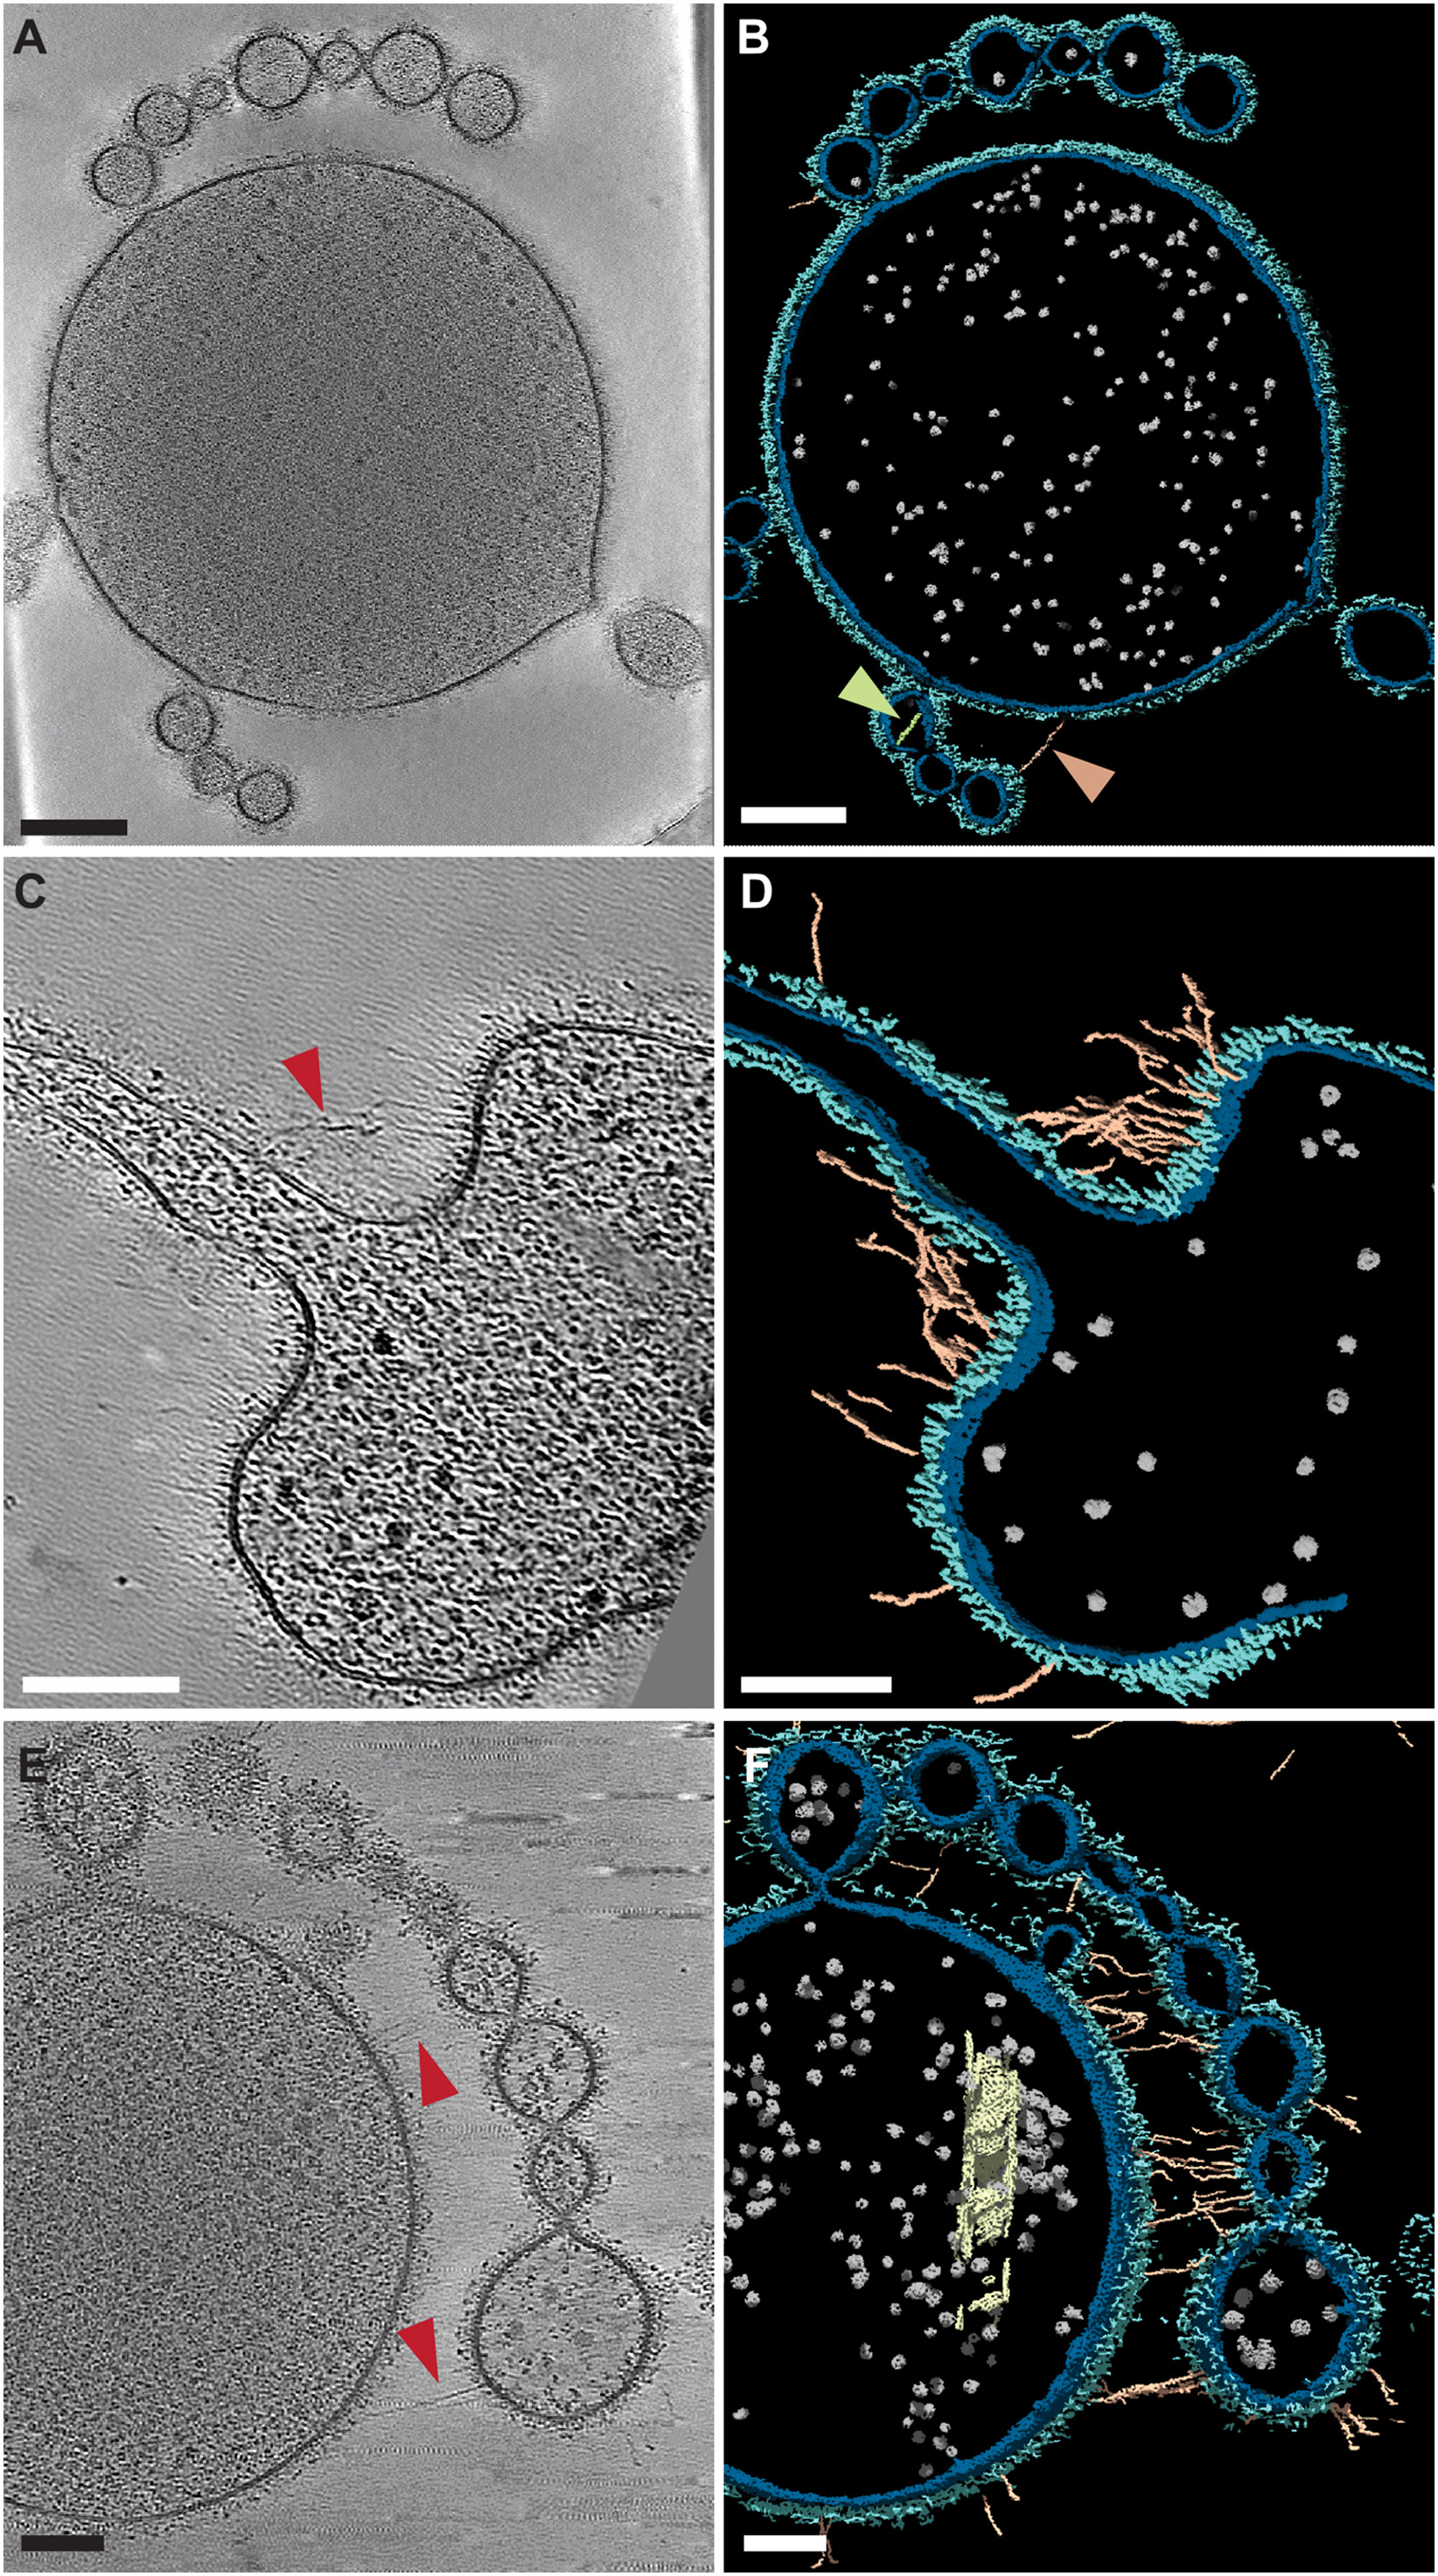
Чтобы рассмотреть строение клеток без повреждений, исследователи применили криоэлектронную томографию (крио-ЭТ). Образцы культуры G2.24 наносили на углеродные сетки и мгновенно замораживали в жидком этане при температуре около -180 °C. Вода переходила в аморфный лед, не образуя кристаллов, которые могли бы нарушить внутренние структуры. Затем образец сканировали под просвечивающим электронным микроскопом Titan Krios, поворачивая его с шагом в три градуса. Специальное программное обеспечение объединяло серию плоских снимков в трехмерную реконструкцию с нанометровым разрешением.
Томография показала, что клетки Nerearchaeum marumarumayae обладают высокой пластичностью. Основное тело клетки имеет форму неправильной сферы со средним диаметром 861 нанометр. От него отходят крупные мембранные выросты двух типов:
- прямые цитоплазматические трубки без перетяжек, связывающие между собой сразу несколько клеток; в одном из случаев авторы зафиксировали цепочку длиной 13 микрометров, состоящую из пяти соединенных клеточных тел;
- ветвящиеся нити, на которых формируются округлые мембранные пузырьки — везикулы со средним диаметром 100 нанометров.
Оболочка Nerearchaeum принципиально отличается от покровов большинства архей. У нее нет плотного кристаллического поверхностного слоя (S-слоя), который защищает обычные археи, но делает их оболочку жесткой. Вместо этого мембрана покрыта несимметричными Т-образными белковыми выступами высотой около 12 нанометров.
Везикулы на поверхности клеток удерживаются сетью ультратонких белковых волокон диаметром всего 3 нанометра. На участках отпочковывания везикул исследователи зафиксировали плотные белковые утолщения у основания мембранных перетяжек.
Анализ аминокислотных последовательностей показал, что гибкость мембраны и образование пузырьков обеспечиваются аппаратом, гомологичным эукариотической системе ESCRT. У эукариот эти комплексы белков отвечают за изгибание липидного бислоя, отпочковывание внутренних пузырьков и деление клетки. Кроме того, в геноме Nerearchaeum обнаружены малые ГТФазы семейств Arf и Ras с регуляторными доменами (longin и Rb/LC7), контролирующие везикулярный транспорт у высших организмов.
Внутри клеток ученые не обнаружили жесткого трубчатого каркаса, однако выявили нити толщиной 4,5 нанометра в цитоплазме перемычек между клетками. Геном кодирует полноценный актин и вспомогательные белки — профилин и гельзолин, которые у эукариот регулируют сборку и разборку актиновых нитей. Также обнаружены два гена тубулинов — белков, из которых в клетках растений и животных строятся микротрубочки. Структурное моделирование показало, что тубулины Nerearchaeum (AtubA и AtubB) объединяются в стабильный парный комплекс (гетеродимер), геометрия которого совпадает со структурой тубулинового димера млекопитающих.
Помимо компонентов цитоскелета, в цитоплазме археи обнаружены белковые контейнеры — инкапсулины. Они представляют собой полые правильные многогранники диаметром 20 нанометров. Внутри этих капсул находятся ферритин-подобные белки, связывающие свободные ионы железа (Fe²⁺). В микробных матах залива Шарк днем концентрация кислорода может резко возрастать. Если кислород реагирует со свободным железом, возникает реакция Фентона, порождающая высокотоксичные радикалы, повреждающие ДНК. Инкапсулины изолируют железо, защищая клетку от окислительной гибели. Дополнительно архея синтезирует светочувствительный белок хелиородопсин, который участвует в активации ферментов, восстанавливающих ДНК после ультрафиолетового облучения на мелководье.
На внешней поверхности мембраны Nerearchaeum найден гигантский белок LOKIASV2_19760. Он состоит из 5416 аминокислот и включает 54 фибронектиновых домена. По своей организации он похож на титин — самый крупный белок мышечных волокон человека. Выступая наружу на расстояние до 250 нанометров, этот молекулярный тяж работает как фиксатор, удерживающий клетку в плотном гелеобразном осадке микробного мата.
Межклеточные нанотрубки
Наиболее важной частью исследования стало обнаружение прямого механического контакта между археей и бактерией. До настоящего времени синтрофное взаимодействие асгард-архей подтверждалось только химическим составом среды: исследователи видели, что организмы потребляют метаболиты друг друга, но считали, что перенос веществ идет исключительно через окружающую жидкость путем свободной диффузии.
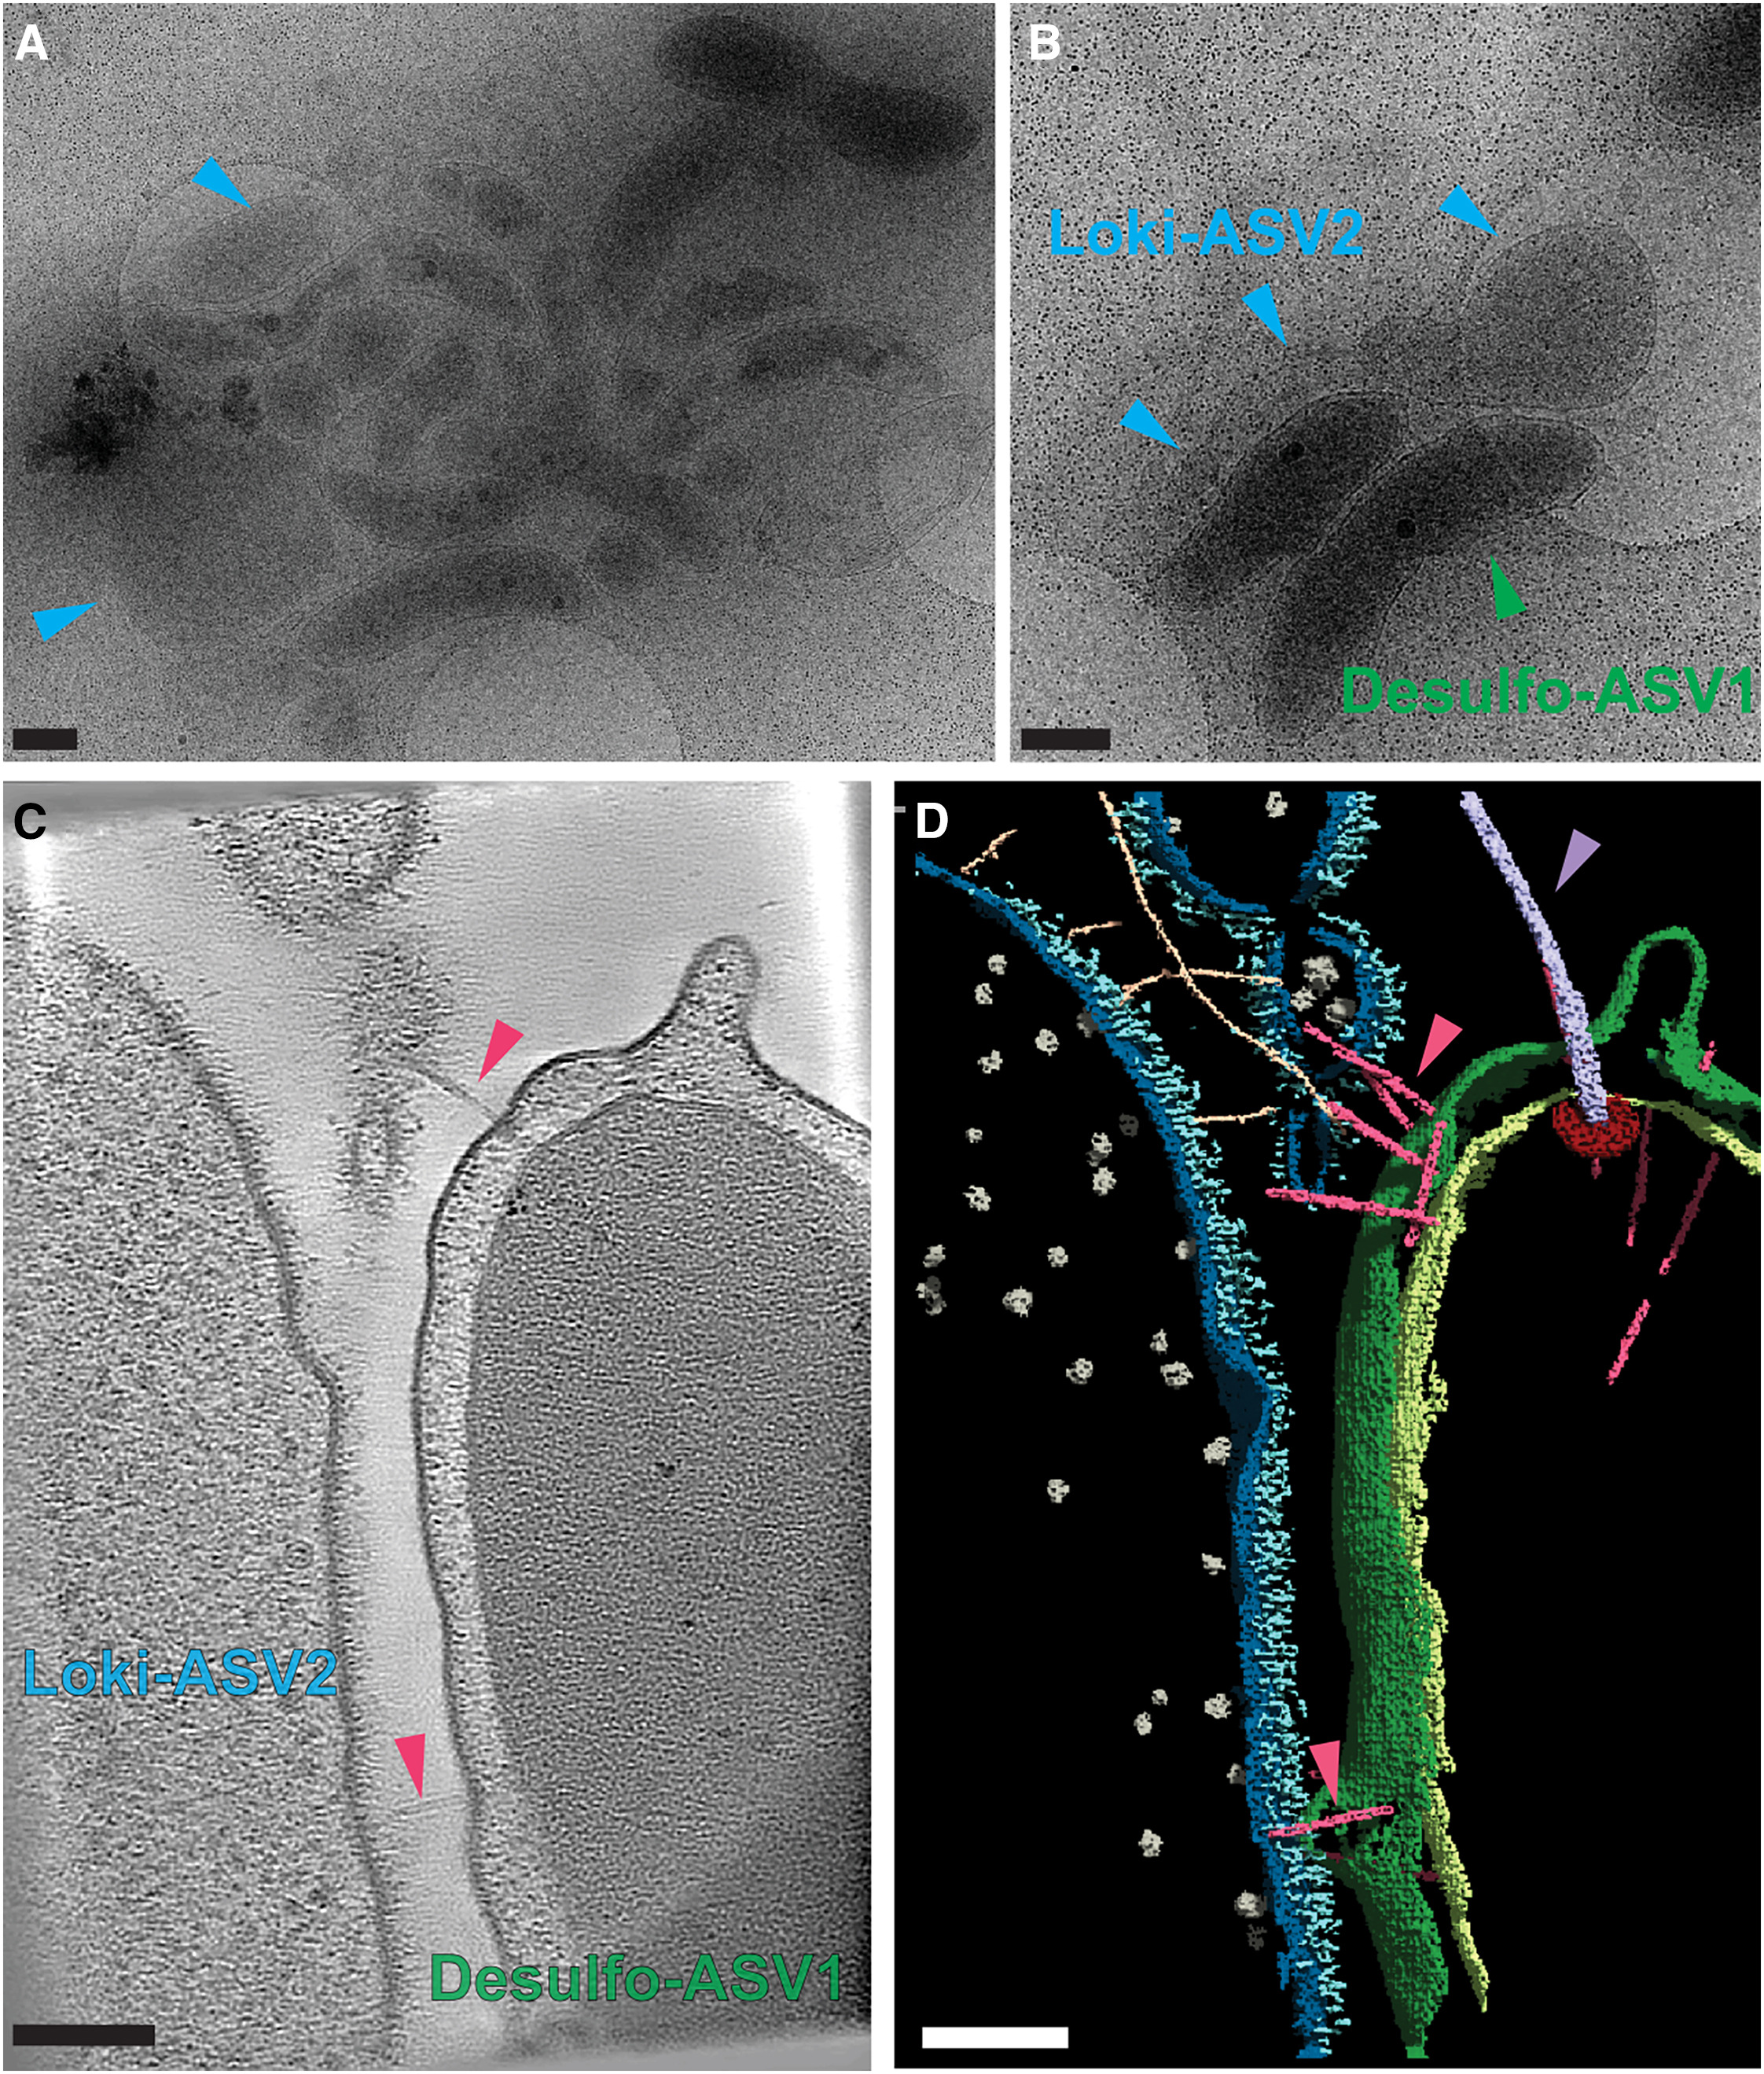
Криоэлектронные томограммы высокого разрешения показали, что клетки Stromatodesulfovibrio nilemahensis вступают в физический контакт с мембранами Nerearchaeum marumarumayae.
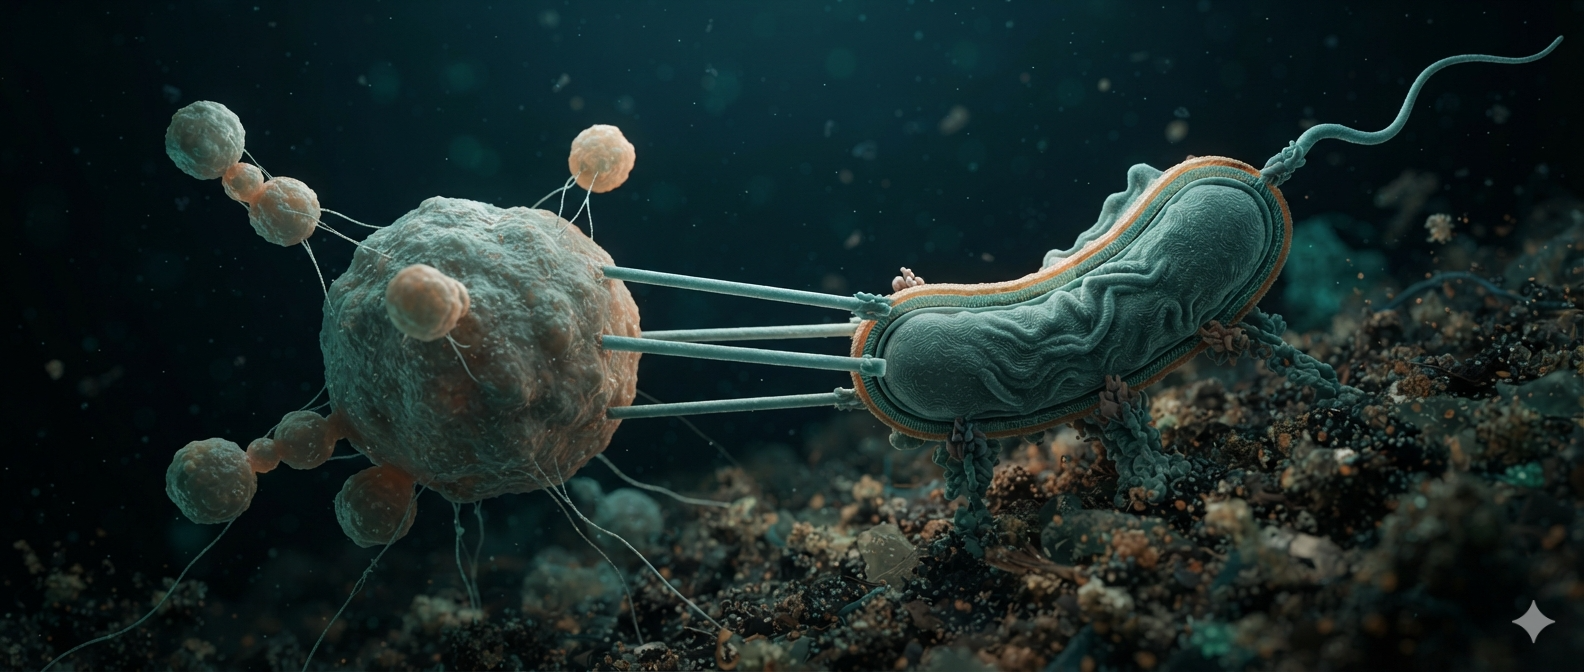
Бактерия представляет собой классическую грамотрицательную клетку с внутренней мембраной, тонким слоем пептидогликана, внешней мембраной и полярным жгутиком с роторным мотором. От ее поверхности отходят полые цилиндрические трубки диаметром 8,1 нанометра.
Эти структуры не являются выростами археи. Сегментация трехмерных изображений четко различила тонкие 3-нанометровые филаменты самой Nerearchaeum и 8-нанометровые трубки бактерии. Нанотрубки берут начало в плотном белковом комплексе, встроенном одновременно во внутреннюю и внешнюю мембраны бактерии, пересекают расстояние между клетками и прикрепляются к выростам и везикулам археи.
Наличие такого структурного комплекса указывает на то, что нанотрубки служат постоянным каналом межклеточной связи. Прямой трубчатый контакт предотвращает рассеивание нестабильных или дефицитных химических соединений в водную толщу, направляя их непосредственно от одной клетки к другой.
Метаболический механизм синтрофии
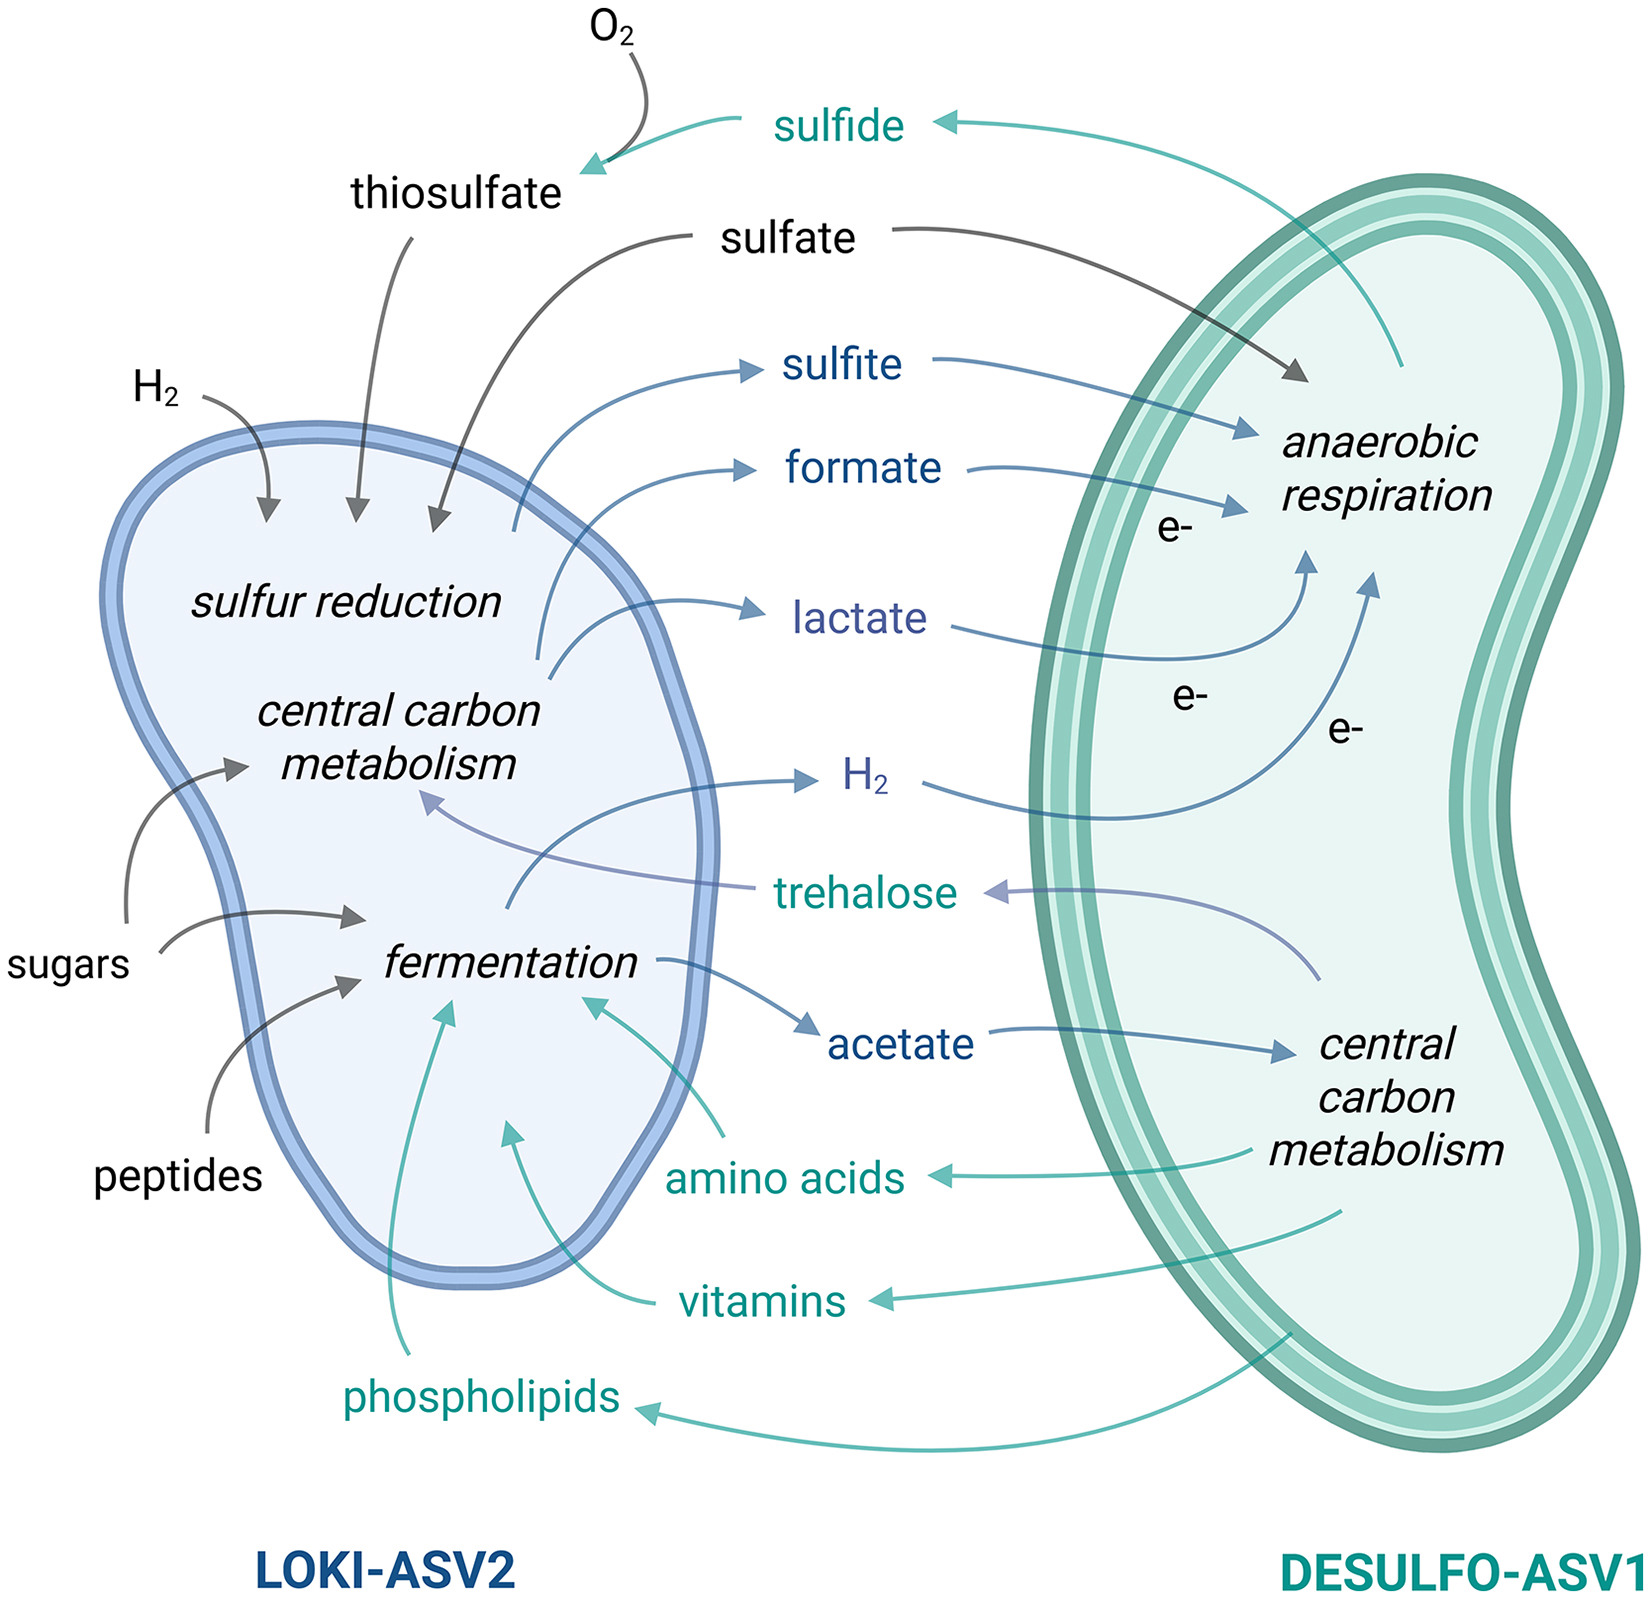
Реконструкция метаболизма на основе аннотированных геномов объясняет, почему эти два организма сформировали непрерывный физический контакт.
Nerearchaeum marumarumayae — облигатный бродильный гетеротроф. Она не умеет дышать кислородом и не использует свет для синтеза органики. Ее единственный источник энергии — расщепление поступающих снаружи сахаров, пептидов и длинноцепочечных жирных кислот. Метаболизм идет по пути ферментативного брожения с образованием ацетата (уксусной кислоты), формиата (муравьиной кислоты), лактата (молочной кислоты) и сульфита.
В процессе брожения клетка переносит электроны на протоны с помощью ферментов гидрогеназ, в результате чего образуется газообразный молекулярный водород (H₂).
В этом кроется критическое термодинамическое ограничение. Накопление водорода внутри клетки и в микроокружении резко сдвигает химическое равновесие: ферменты брожения больше не могут сбрасывать электроны, и выработка энергии в виде АТФ полностью блокируется. Чтобы процесс брожения продолжался, водород необходимо непрерывно удалять.
Эту функцию берет на себя бактерия Stromatodesulfovibrio nilemahensis:
- Потребление водорода: бактерия экспрессирует периплазматические [NiFe]-гидрогеназы, которые связывают молекулярный водород археи и окисляют его, используя полученные электроны для дыхания. Это устраняет торможение брожения у археи.
- Дыхание сульфитом: в качестве акцептора электронов бактерия использует сульфит, который также выделяет Nerearchaeum. Для обычных сульфатредуцирующих бактерий процесс дыхания сульфатом энергетически затратен: на первом этапе клетка вынуждена расходовать молекулу АТФ, чтобы активировать сульфат с помощью фермента АТФ-сульфурилазы. Поглощая готовый сульфит от археи, бактерия пропускает этот энергозатратный шаг и сразу направляет сульфит в дыхательную цепь.
- Усвоение углерода: выделяемый археей ацетат бактерия использует в качестве строительного материала для синтеза собственной биомассы.
В ответ бактерия обеспечивает архею критически важными веществами, которые та не может синтезировать самостоятельно:
- Незаменимые аминокислоты: анализ генома Nerearchaeum выявил полное отсутствие ферментных путей для синтеза четырех базовых аминокислот — аргинина, пролина, фенилаланина и триптофана. Геном Stromatodesulfovibrio, напротив, содержит полный набор генов для сборки всех 20 аминокислот.
- Витамины группы B: архея не способна производить жизненно необходимые коферменты: тиамин (B₁), рибофлавин (B₂), пиридоксин (B₆) и кобаламин (B₁₂). Все эти метаболические каскады присутствуют у бактериального партнера.
- Осмотическая защита: в гиперсоленой воде залива Шарк клетки постоянно теряют воду из-за осмотического давления. Бактерия синтезирует дисахарид трегалозу — защитное вещество, стабилизирующее белки и мембраны при высокой концентрации солей. Архея имеет специальный мембранный транспортный белок, захватывающий трегалозу из межклеточного пространства.
Таким образом, два микроорганизма заперты в циклической метаболической зависимости: архея поставляет бактерии восстановительные эквиваленты (водород), сульфит и органический углерод, а бактерия обеспечивает архею аминокислотами, коферментами и предотвращает токсическое накопление продуктов брожения.
Значение открытия для теории эволюции
Результаты исследования Nerearchaeum marumarumayae меняют научный взгляд на ранние этапы возникновения сложной жизни.
Прежняя гипотеза предполагала, что появление эукариот было внезапным событием, произошедшим в открытой воде: свободно плавающая примитивная архея случайно захватила свободно плавающую бактерию.
Новые структурные и геномные данные свидетельствуют о другом механизме. Эукариогенез разворачивался внутри плотных микробных матов и биопленок. В этих сообществах клетки не разделены большими расстояниями: они находятся в постоянном тесном механическом контакте, конкурируют за химические градиенты и зависят от диффузии молекул.
Сложные клеточные структуры асгард-архей — пластичная мембрана, способность формировать цепочки везикул, актиновые микрофиламенты и тубулиновые димеры — развились не для создания внутренней организации будущей эукариотической клетки. Они сформировались как специализированные приспособления для удержания симбиотических бактерий и стабилизации обмена метаболитами в условиях внешнего стресса.
Наличие межклеточных нанотрубок демонстрирует промежуточную стадию на этом пути. Эволюция шла последовательно:
- Организмы перешли от рассеянного обмена веществами в осадке к плотному механическому связыванию посредством поверхностных белков (таких как LOKIASV2_19760).
- Возникли мембранные нанотрубки, которые замкнули перенос водорода, электронов и витаминов в узкий изолированный канал.
- Пластичная внешняя мембрана археи, лишенная жесткого кристаллического каркаса, позволила увеличивать площадь контакта, формируя выросты, окружающие бактериальную клетку.
Следующим этапом стало полное охватывание бактерии выростами хозяина, что в конечном итоге привело к эндосимбиозу — погружению бактерии внутрь цитоплазмы археи. Сложная эукариотическая клетка сформировалась не в результате единичного случайного сбоя, а как закономерный итог многоступенчатого адаптивного процесса, направленного на максимально тесную интеграцию взаимозависимого метаболизма.
Источник: Current Biology
0 комментариев
Добавить комментарий