Как работает эволюция без естественного отбора: математики нашли скрытую причину устойчивости жизни
В стандартной теории эволюции главное правило формулируется просто: естественный отбор направляет развитие популяций исключительно туда, где возрастают шансы на выживание и размножение. Если мутация делает организм более эффективным, она закрепляется. Если мутация вредна, отбор ее уничтожает. Если же разные генетические варианты дают абсолютно одинаковый результат, то отбор перестает действовать.
В ситуации, когда несколько биологических признаков обеспечивают организму одну и ту же эффективность, классическая теория предсказывает абсолютную случайность. Предполагается, что в таких условиях популяция теряет вектор движения и начинает хаотично блуждать во всех доступных направлениях под действием случайных мутаций. Этот процесс называют нейтральным дрейфом.
Однако биологические системы устроены иначе. Исследователи из Израильского технологического института (Технион) Рази Фахарелдин и Наама Бреннер показали, что даже в условиях полного равенства по показателям выживаемости эволюция не становится случайной. Направление ее движения сохраняется благодаря скрытому математическому фактору — неоднородности геометрии биологического пространства.
Популяция всегда целенаправленно смещается туда, где свойства системы становятся наиболее устойчивыми к внешним и внутренним ошибкам. При этом для подобного смещения отбору не требуется никаких специальных регуляторных генов или давления со стороны окружающей среды.
Содержание
- Проблема множественных решений: феномен вырождения
- Различие между точкой и группой: роль изменчивости
- Механизм направленного движения: скрытая регуляризация
- Деформация изменчивости: как отбор настраивает поиск
- Сравнение физических, алгоритмических и биологических систем
- Прикладные выводы: устойчивость, шум и память
- Значение для эволюционной биологии
Проблема множественных решений: феномен вырождения
Чтобы разобраться в физической сути открытия, необходимо обратиться к структуре биологических систем. Организм человека, бактерии или растения зависит от одновременной работы миллионов молекулярных компонентов: белков, регуляторных РНК, метаболитов и ферментов. Все эти элементы взаимосвязаны.
Когда исследователи начали анализировать метаболические сети кишечной палочки (Escherichia coli) и дрожжей, они обнаружили закономерность: для выполнения одной и той же жизненной задачи клетка может использовать тысячи совершенно различных молекулярных комбинаций. Скорость потребления глюкозы, объем синтеза клеточной стенки и точность деления могут быть абсолютно одинаковыми при разных соотношениях внутренних ферментов.
В точных науках такую ситуацию называют вырождением. Вырождение означает, что одной и той же функции или одному и тому же уровню приспособленности соответствует огромное количество разных внутренних состояний.
Если нанести все возможные комбинации признаков на многомерный график, где высота каждой точки отражает приспособленность организма, то в классических представлениях ученые ожидали увидеть изолированные вершины. Предполагалось, что популяция шаг за шагом увеличивает свою эффективность, пока не достигнет одного конкретного локального максимума.
В действительности же биологические ландшафты содержат протяженные сплошные зоны, где показатели приспособленности абсолютно равны. Переход от одного состояния к другому внутри такой зоны не меняет биологическую эффективность: организм ничего не выигрывает и ничего не теряет. Наклон поверхности здесь равен нулю, а значит, отбор не может предпочесть одно состояние другому.
Логика нейтральной теории Кимуры гласит: внутри этой зоны организмы должны рассеиваться равномерно, а их средние характеристики — меняться хаотично. Однако вычисления израильских исследователей показали, что эта логика упускает из вида ключевую характеристику любой живой системы: популяция состоит не из одной особи, а из множества организмов, непрерывно порождающих отклонения от нормы.
Различие между точкой и группой: роль изменчивости
Главная ошибка упрощенного эволюционного взгляда заключалась в том, что эволюционирующий вид рассматривали как единичную точку, перемещающуюся по пространству признаков. Реальная популяция всегда представляет собой распределение особей с определенным разбросом параметров.
Даже если организмы в группе генетически идентичны, мутационные процессы и стохастические флуктуации в клетках приводят к тому, что параметры каждой отдельной особи слегка отличаются от среднего значения. Популяция занимает в пространстве состояний определенный объем. Границы этого объема определяются тем, насколько далеко мутации успевают разбросать организмы до того, как их отсеет смертность.
Пока мы рассматриваем лишь одно идеальное состояние, в котором находится центр популяции, приспособленность кажется неизменной на всем протяжении зоны вырождения. Но если учесть, что особям свойственно отклоняться от центра, результат меняется коренным образом.
Здесь вступает в силу кривизна поверхности. В математике кривизна функции определяется ее вторыми производными (матрицей Гессе). В биологии кривизна показывает, с какой скоростью падает приспособленность организма, если он отклоняется от оптимального состояния в сторону неэффективных вариантов.
Даже если вдоль центральной линии зоны вырождения приспособленность строго постоянна, поперечная кривизна вокруг нее может колоссально различаться на разных участках:
- Участки с высокой кривизной. На таких отрезках оптимальная зона крайне узкая. Стоит организму отклониться в сторону хотя бы на незначительную величину, как жизнеспособность мгновенно падает до критических значений.
- Участки с низкой кривизной. На этих отрезках оптимальная зона широкая и пологая. При отклонении в сторону приспособленность снижается крайне медленно. Организмы с заметными мутациями продолжают нормально функционировать и размножаться.
Для одиночного идеального организма разницы между этими участками нет: находясь строго в центре, он имеет одинаковую жизнеспособность. Но для реальной популяции разница становится критической.
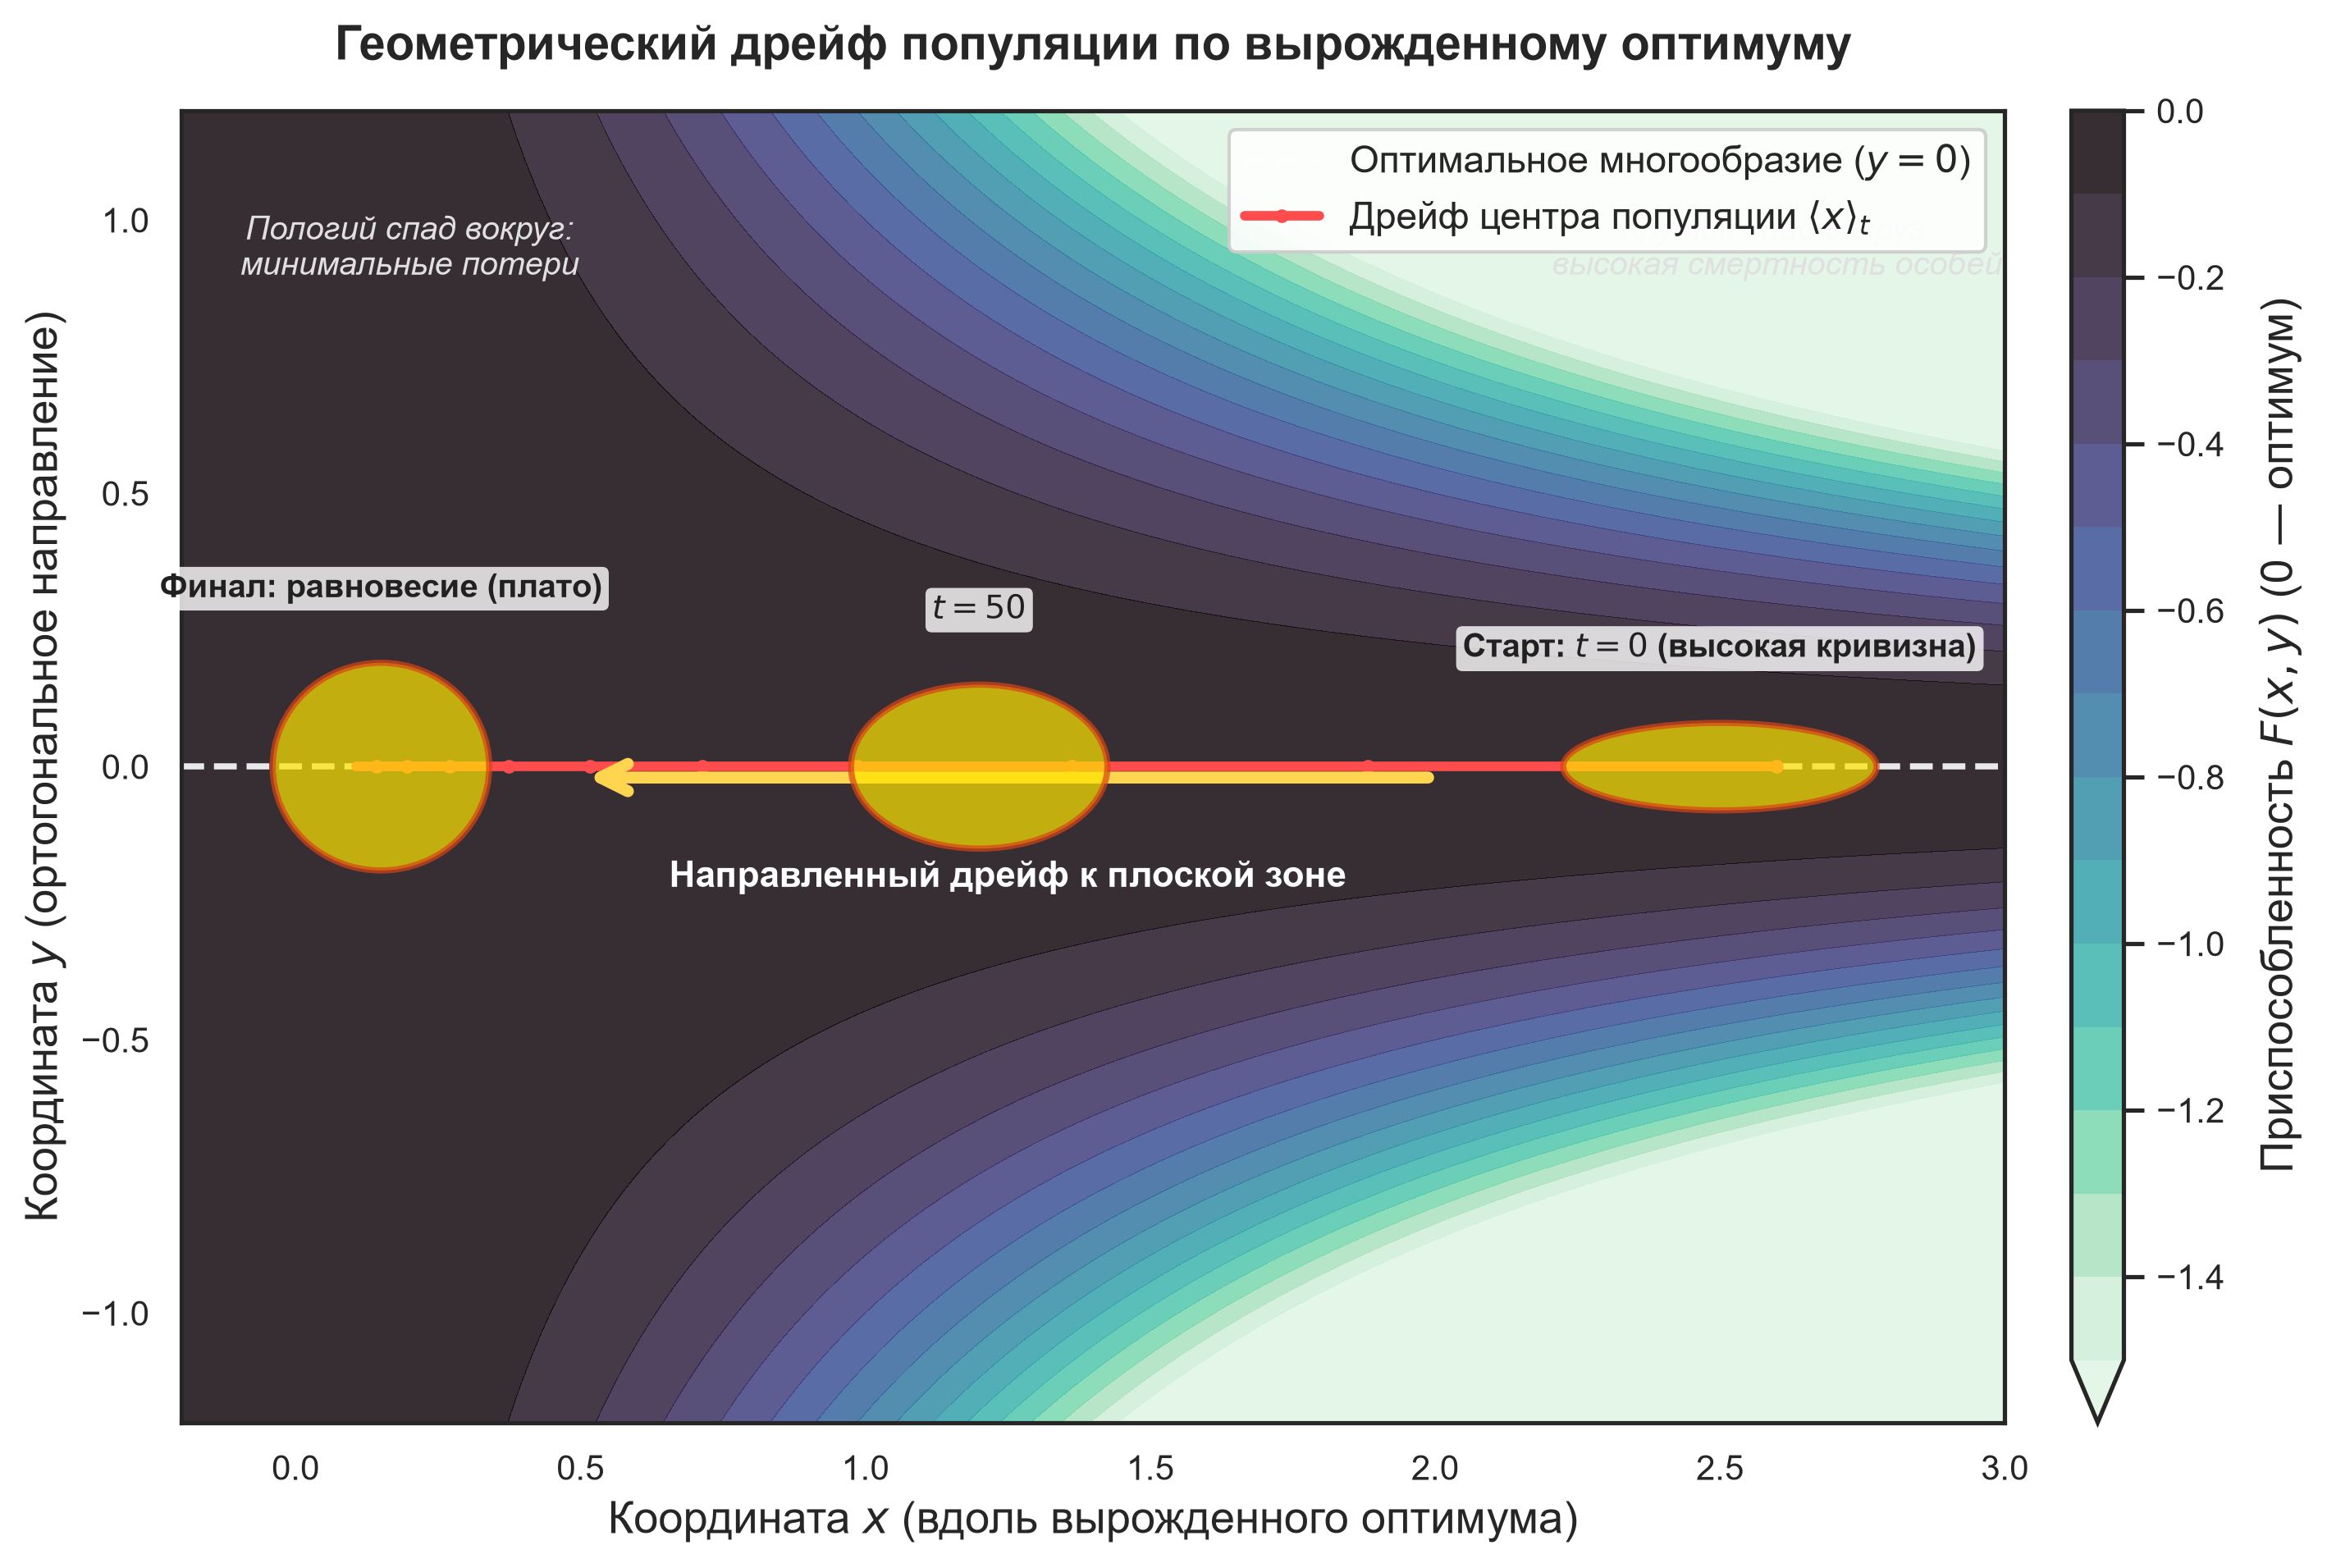
Когда центр популяции находится в области с высокой крутизной окружающего спада, особи на краях распределения постоянно получают летальные или полулетальные мутации и гибнут. В результате средняя приспособленность всей группы резко падает.
Когда же центр популяции оказывается на пологом участке, те же самые по силе мутации не приводят к гибели особей на краях. Средняя приспособленность группы остается высокой.
Механизм направленного движения: скрытая регуляризация
Фахарелдин и Бреннер математически вывели уравнения, описывающие смену поколений в популяции с непрерывным распределением признаков. В модели использовались два последовательных шага:
- шаг мутации, который добавляет к признакам особей случайные изменения;
- шаг отбора, который умножает долю каждого варианта на его относительную эффективность.
Когда исследователи рассчитали скорость изменения среднего состояния популяции за одно поколение, они обнаружили, что в уравнении движения появляется дополнительный член. К стандартному градиенту эффективности добавляется составляющая, которая связывает матрицу разброса признаков популяции с матрицей локальной кривизны.
Эта составляющая вычитает из средней приспособленности величину, пропорциональную локальной крутизне спада. Поскольку приспособленность падает вокруг оптимальных состояний во все стороны, значение кривизны математически отрицательно. Чем круче спад, тем сильнее штраф, налагаемый на среднее выживание популяции.
Возникает постоянная сила, которая не зависит от изменения индивидуальной приспособленности в центральных точках. Эта сила определяется исключительно разницей в потерях на периферии популяции. Центр распределения начинает направленно дрейфовать из областей, где края распределения обрезаются высокой смертностью, в сторону областей, где спад вокруг является наиболее мягким.
Дрейф продолжается до тех пор, пока популяция не достигнет точки с наименьшей возможной кривизной. Достигнув этой области, движение останавливается, и популяция образует стабильное, устойчивое распределение вокруг самого пологого участка.
Эволюция находит самое устойчивое к ошибкам состояние не потому, что она целенаправленно оптимизирует устойчивость, а потому, что во всех менее устойчивых точках популяция несет непрерывные статистические потери.
Деформация изменчивости: как отбор настраивает поиск
В процессе этого движения меняется не только среднее положение популяции, но и сама структура ее изменчивости.
Изначально мутационный шум не имеет предпочтений: мутации возникают случайно и с одинаковой вероятностью меняют любые биохимические параметры во всех направлениях. Однако взаимодействие мутаций с локальной кривизной пространства полностью разрушает эту симметрию.
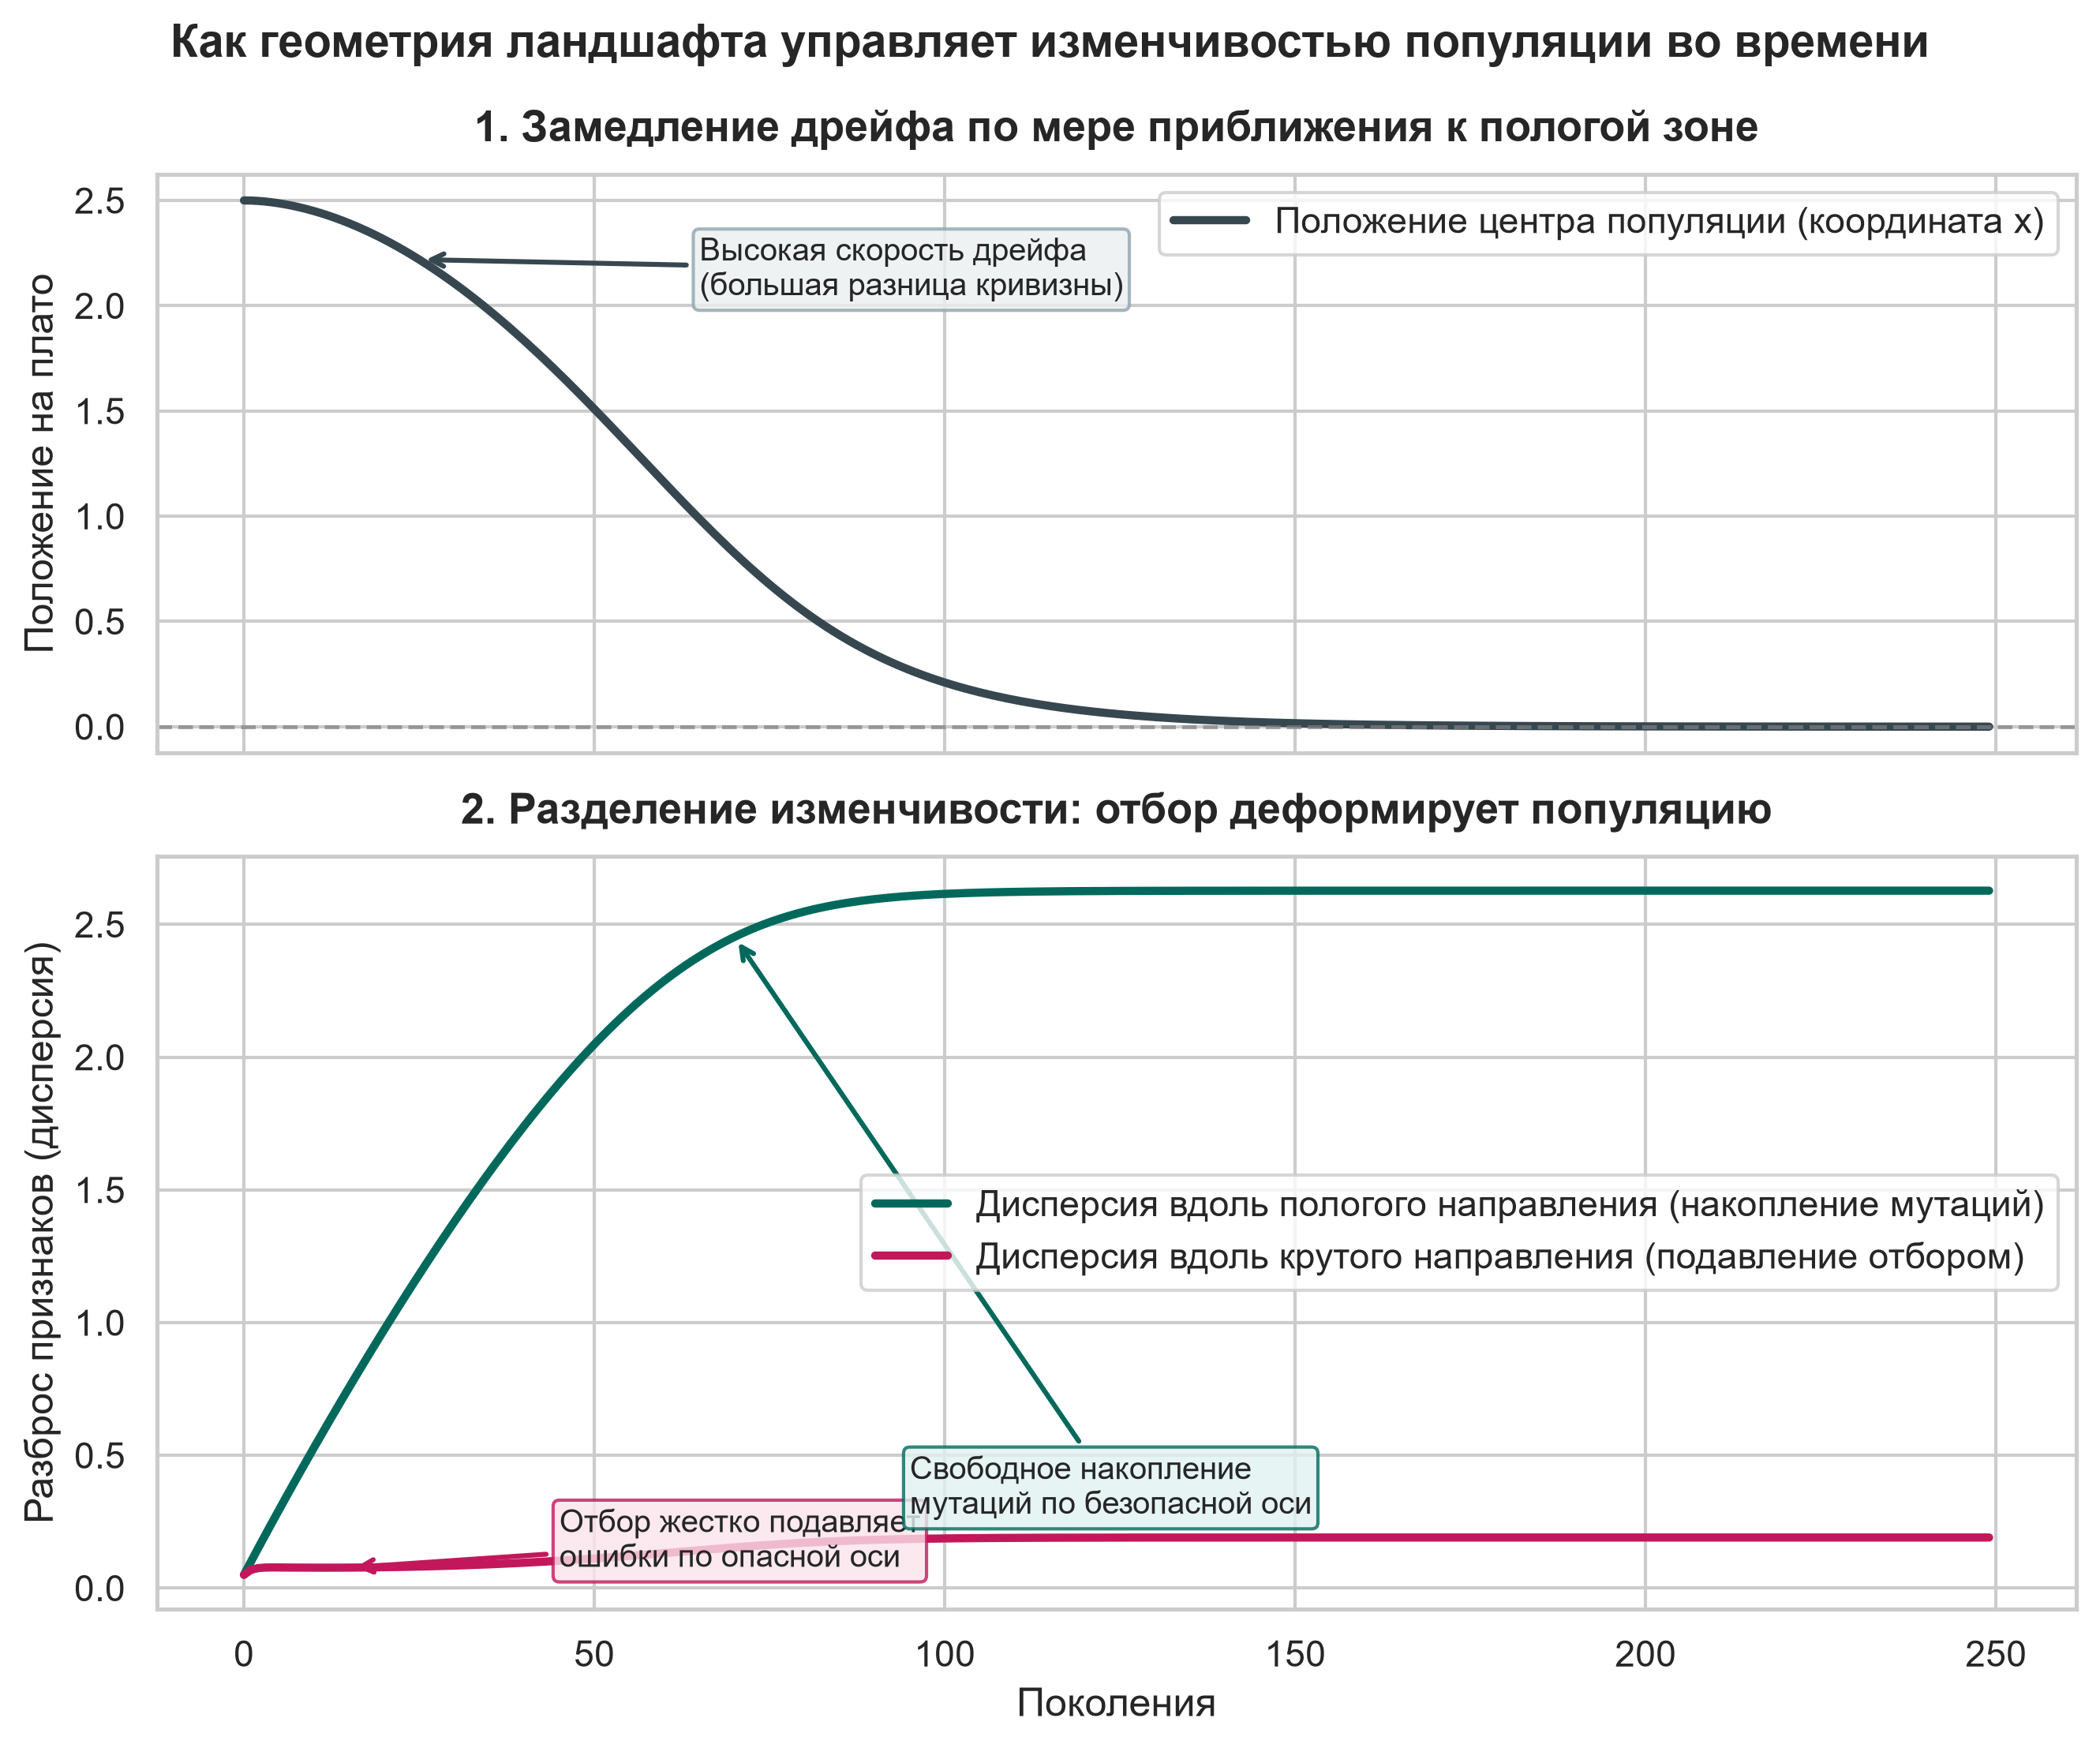
Вдоль направлений с высокой крутизной спада отбор действует максимально жестко. Любая особь, получившая мутацию в этом направлении, быстро элиминируется. В результате разброс признаков внутри популяции по этой оси искусственно сжимается до минимальных значений. Популяция теряет разнообразие по опасным параметрам.
Вдоль пологих направлений отбор практически не ограничивает изменчивость. Мутации накапливаются свободно, и разброс признаков возрастает.
В итоге распределение популяции вытягивается вдоль тех осей, где изменения безопасны для функционирования. Хотя мутации остаются ненаправленными, сам субстрат, на котором они происходят — совокупность выживших организмов, — оказывается деформирован геометрией ландшафта. Популяция начинает гораздо глубже исследовать именно безопасные направления пространства признаков, что дополнительно ускоряет ее движение к самым пологим областям.
Сравнение физических, алгоритмических и биологических систем
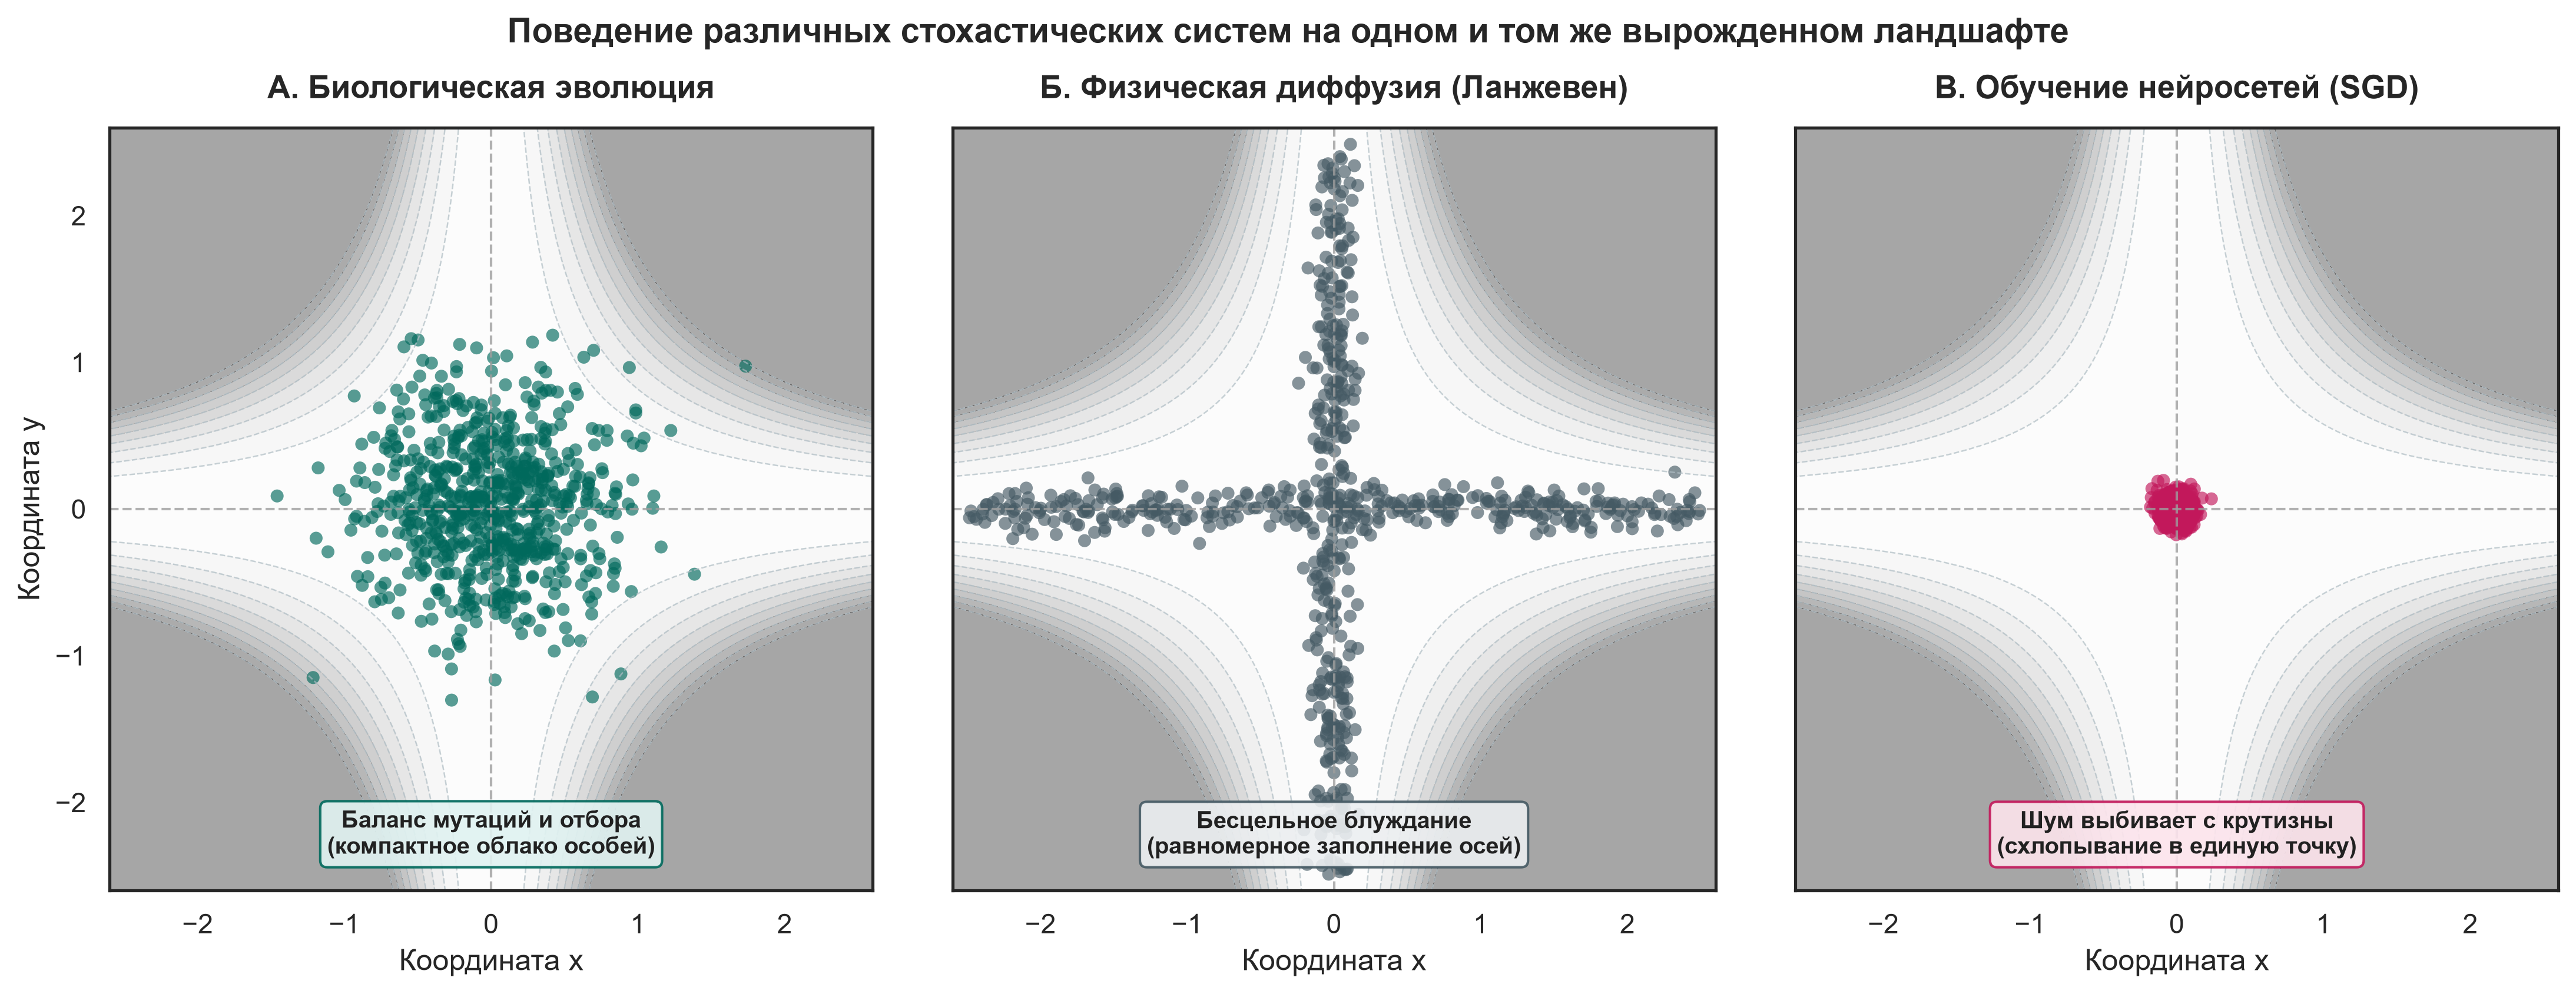
Тенденция сложных систем концентрироваться на пологих участках многомерных пространств известна не только в биологии. В теории машинного обучения и в статистической физике исследователи регулярно сталкиваются со сходными задачами оптимизации. Авторы работы провели сравнительный анализ того, как три принципиально различные системы ведут себя на одном и том же вырожденном тестовом ландшафте.
Сравнительные характеристики типов движения на многомерных ландшафтах
- Физическая диффузия (уравнение Ланжевена):Источник случайности: внешний тепловой шум окружающей среды. Связь с геометрией: интенсивность шума полностью независима от кривизны силового поля. Поведение на плато: равномерное рассеивание частиц во всех доступных направлениях. Итог: бесконечное блуждание без формирования устойчивой компактной области.
- Стохастический градиентный спуск (SGD в искусственных нейросетях):Источник случайности: внутренний шум вычисления градиента по ограниченным подвыборкам данных (мини-батчам).Связь с геометрией: амплитуда флуктуаций резко возрастает на участках с высокой крутизной склонов. Поведение на плато: кинетическое выталкивание параметров из зон высокой кривизны за счет сильных скачков ошибки. Итог: фиксация оптимизатора практически в единичной точке на дне наиболее пологого минимума.
- Популяционная эволюция (биологические системы):Источник случайности: ненаправленный мутационный процесс внутри организмов. Связь с геометрией: естественный отбор непрерывно сжимает или расширяет дисперсию популяции в зависимости от локальной кривизны. Поведение на плато: направленный дрейф первого порядка в сторону пологих зон из-за систематической элиминации особей на краях распределения. Итог: поддержание стабильной ограниченной группы особей в точке равновесия между мутациями и отбором вокруг зоны минимальной кривизны.
В статистической физике классическим описанием движения является динамика Ланжевена: частица перемещается в потенциальном поле под воздействием постоянных случайных толчков молекул окружающей среды. В этой системе внешний шум совершенно не зависит от того, насколько изогнуто силовое поле под частицей.
Когда физическая частица попадает в плоскую зону равной потенциальной энергии, никакого направленного смещения не возникает. Частица блуждает по доступной области бесконечно, равномерно заполняя пространство. Физическая диффузия не ищет участков с наименьшей кривизной.
В машинном обучении ситуация иная. Алгоритм стохастического градиентного спуска (SGD), который настраивает веса современных глубоких нейросетей, рассчитывает поправки не по всей базе данных сразу, а по малым порциям (батчам). Это вносит в процесс оптимизации шум.
Математический анализ показывает: на крутых склонах этот искусственный шум становится колоссальным по амплитуде. Вычисления постоянно бросают параметры нейросети из стороны в сторону, буквально выталкивая систему из узких долин потерь. На пологих участках градиенты малы, шум затухает, и система оседает в наиболее плоском минимуме.
Именно поэтому нейросети успешно обобщают информацию: они останавливаются в широких минимумах функции ошибок, которые устойчивы к шуму во входных данных.
Биологическая эволюция демонстрирует третий, уникальный механизм. В биологии нет внешнего толчка, выбивающего организм из узких мест, как в SGD, и нет чистого безразличия к форме поверхности, как в физике частиц.
Биологическая популяция перемещается в пологие области за счет того, что естественный отбор динамически меняет ширину и форму самой популяции в каждом поколении. Разреженная группа превращается в устойчивый инструмент анализа кривизны пространства. В точке с минимальной кривизной устанавливается равновесие между притоком новых мутаций и скоростью их отсева.
Прикладные выводы: устойчивость, шум и память
Математическое доказательство того, что популяции неизбежно смещаются в зоны минимальной кривизны, меняет интерпретацию целого ряда базовых биологических явлений.
Устойчивость без специальных механизмов
Живые организмы демонстрируют колоссальную фенотипическую стабильность: они сохраняют форму, метаболизм и жизненные циклы при серьезных колебаниях температуры, состава питательной среды и при накоплении мутаций.
Десятилетиями биологи искали конкретные молекулярные механизмы, которые должны отвечать за эту стабильность: белки теплового шока, дублирующие биохимические пути, специализированные регуляторные контуры обратной связи.
Новая модель показывает, что устойчивость (робастность) может возникать вообще без специализированных генетических приспособлений. Если пространство возможных состояний вырождено, популяция неизбежно мигрирует в участки ландшафта, где наклон спада минимален.
Находясь в этой зоне, организм автоматически становится устойчивым к мутациям и внешним возмущениям: мелкие сдвиги параметров просто не вызывают заметного падения жизнеспособности. Устойчивость оказывается прямым результатом долгосрочного дрейфа популяции по вырожденным поверхностям.
Переосмысление внутрипопуляционного шума
В генетических экспериментах исследователи регулярно фиксируют существенные различия между особями, обладающими абсолютно идентичным геномом и живущими в строго одинаковых условиях. Долгое время считалось, что этот разброс признаков — следствие термодинамического шума, несовершенства ферментов копирования или случайных сбоев регуляции.
Геометрический подход позволяет взглянуть на этот шум иначе. Если признак сильно варьирует внутри популяции в стабильных условиях, это не означает, что система не оптимизирована или работает с ошибками. Напротив, высокая вариативность напрямую указывает на то, что популяция заняла участок пространства с крайне низкой кривизной по данной координате.
Большой разброс признака служит доказательством того, что отбор снял ограничения на эту степень свободы. Разнообразие фенотипов отражает геометрию пространства возможностей, а не биологическую неполноценность организмов.
Дрейф нейронных репрезентаций
Выводы авторов находят применение и за пределами генетики. Одно из самых интригующих явлений современной нейробиологии — это так называемый репрезентативный дрейф (representational drift).
Эксперименты с регистрацией активности нейронов в гиппокампе и коре головного мозга показывают: когда мышь изо дня в день ориентируется в одном и том же лабиринте, конкретные нейроны, отвечающие за распознавание углов или ориентиров, непрерывно меняют свою активность. Спустя несколько недель за воспоминание об одном и том же месте отвечает уже совершенно другая группа клеток, хотя поведение животного остается безупречно стабильным.
Мозг представляет собой многомерную вычислительную систему с огромным уровнем вырождения. Существуют миллионы способов распределить синаптические веса между нейронами так, чтобы результирующий функциональный навык сохранялся неизменным.
Если синаптическая сеть обучается на вырожденном функциональном ландшафте, пластичность синапсов неизбежно подвергается дрейфу, вызванному локальной кривизной внутренних связей. Точно так же, как биологическая популяция мигрирует по плоскому плато в сторону наименьшей чувствительности к мутациям, конфигурация нейронных связей медленно скользит по эквивалентным состояниям, сохраняя функции памяти стабильными при непрерывной смене работающих клеток.
Значение для эволюционной биологии
Работа Фахарелдина и Бреннер разрешает старое теоретическое противоречие между строгим адаптационизмом и концепцией нейтральности. На протяжении десятилетий считалось, что эволюция делится на два четких режима: либо действует жесткий естественный отбор, толкающий систему вверх по градиенту эффективности, либо отбор бессилен, и все решает ненаправленный случай.
Математический анализ показывает, что эта дихотомия была следствием чрезмерного упрощения. Пространства биологических параметров обладают высокой размерностью. В них градиенты первого порядка могут отсутствовать, но кривизна второго порядка практически никогда не бывает постоянной.
Как только мы начинаем рассматривать популяцию как протяженную систему организмов, распределенную по объему признаков, геометрия ландшафта начинает работать как активный регулятор. В отсутствие прямой разницы в жизнеспособности решающим фактором становится разница в локальной устойчивости к ошибкам.
Эволюция живых систем определяется не только тем, насколько выгодно то или иное биологическое состояние само по себе, но и тем, насколько безопасны неизбежные отклонения от него. Популяции выживают в меняющемся мире не потому, что целенаправленно изобретают средства защиты, а потому, что сама механика естественного отбора на вырожденных поверхностях неизбежно оставляет жизнь в тех координатах, где ошибки перестают быть смертельными.
Источник: biorxiv
0 комментариев
Добавить комментарий