Как один муравей заставляет сотни сородичей двигаться синхронно: физики смоделировали скрытые законы колонии
В поведении многих видов общественных насекомых существует особенность, которая долгое время оставалась нерешенной задачей для биологии и физики сложных систем. Речь идет о периодических всплесках активности у мелких древесных муравьев, таких как представители родов Temnothorax и Leptothorax.
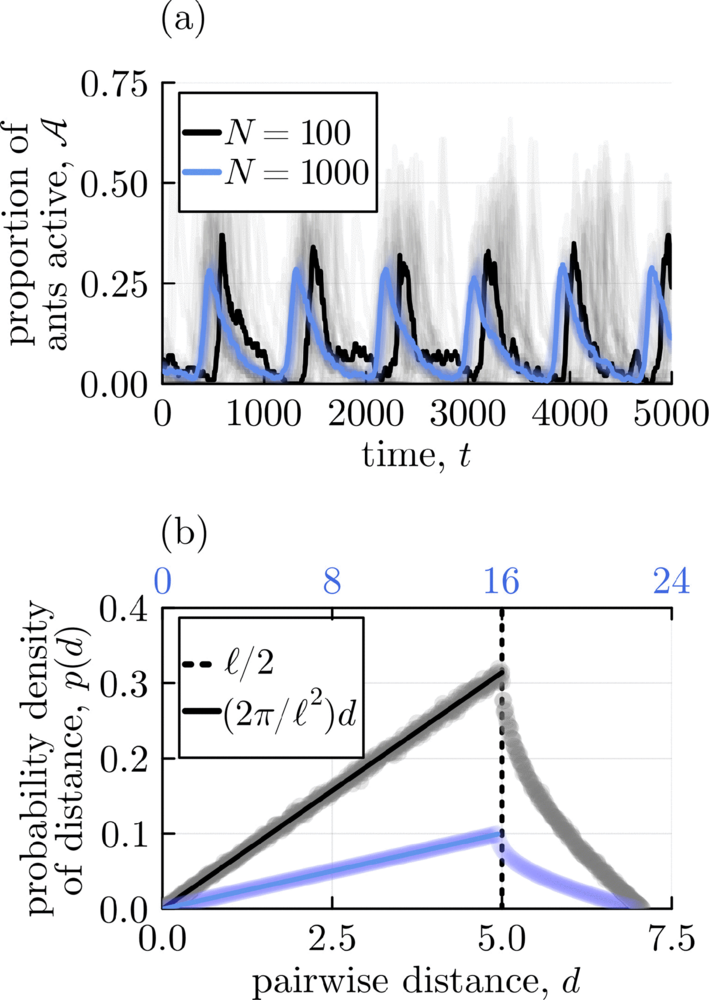
Если наблюдать за их гнездом в лабораторных условиях, можно зафиксировать четкую циклическую закономерность. На протяжении нескольких десятков минут колония находится в состоянии глубокого покоя: практически все рабочие особи сидят неподвижно. Затем за короткий промежуток времени почти вся колония начинает одновременно двигаться, перемещаясь по гнезду и вступая в контакты друг с другом. Спустя некоторое время движение затухает, и муравьи снова замирают. Этот цикл повторяется регулярно с интервалом от одного до полутора часов.
Такой процесс называют синхронизацией активности. Главная сложность в его научном объяснении заключалась в том, что в колонии нет управляющего центра. Матка не отдает команды на начало движения, а у отдельных рабочих муравьев нет внутренних биологических часов достаточной точности, чтобы отсчитывать одинаковые интервалы времени независимо друг от друга.
Исследователи из Нью-Йоркского университета и Технологического института Нью-Джерси опубликовали в журнале PRX Life работу, которая объясняет этот феномен с точки зрения статистической механики. Авторы построили пространственную математическую модель и доказали, что периодический ритм в гнезде возникает в результате фазового перехода — процесса, при котором система скачкообразно меняет свое общее состояние при плавном изменении внешних параметров. Это состояние определяется базовыми характеристиками: скоростью движения насекомых, плотностью популяции и обязательным периодом покоя после активности.
Содержание
- Почему прежние теории были неполными
- Три поведенческих состояния рабочего муравья
- Роль первого муравья и структура волны активности
- Условия синхронизации: баланс передачи сигнала и времени отдыха
- Почему не все виды муравьев живут по единому ритму
- Практическое значение: распределенные автономные системы и робототехника
- Заключение
Почему прежние теории были неполными
Синхронные процессы в природе изучаются давно. Классическим примером служат механические маятники, закрепленные на одной подвижной балке: за счет передачи слабых колебаний через общую опору они постепенно подстраивают фазы и начинают двигаться согласованно. В живой природе похожие процессы происходят в клетках сердечной мышцы, в нейронных сетях головного мозга или при одновременном свечении некоторых видов светляков.
Первые попытки объяснить ритмы муравьев предпринимались еще в конце 1980-х и начале 1990-х годов. Тогда ученые предложили концепцию автокаталитической реакции. Предполагалось, что активный муравей при случайном столкновении с неподвижным соседом может побудить его к движению. Возникает цепная передача активности, которая охватывает все гнездо. Когда запас энергии истощается, муравьи останавливаются на отдых, после чего цикл повторяется.
Однако у этих ранних моделей был существенный недостаток: они не учитывали реальное физическое пространство гнезда. Математически колония описывалась как однородный объем, где любая особь в любой момент времени могла с одинаковой вероятностью провзаимодействовать с любой другой.
В реальном гнезде муравьи распределены по плоскости, имеют ограниченный радиус восприятия и перемещаются по сложным траекториям. Без учета пространственных ограничений, скорости перемещения и геометрии контактов было невозможно определить точные условия, при которых хаотическое движение превращается в синхронный ритм, или понять, почему этот ритм пропадает у других близких видов.
Три поведенческих состояния рабочего муравья
Чтобы решить эту задачу, исследователи создали агентную модель, опирающуюся на экспериментальные измерения движения муравьев вида Temnothorax albipennis. В модели поведение каждой особи описывается через три последовательных состояния:
1. Активное состояние. Муравей перемещается внутри двухмерного пространства гнезда. Он двигается отдельными отрезками — короткими пробежками постоянной скорости, после которых меняет направление движения на случайный угол. Длительность каждого движения подчиняется логнормальному статистическому распределению, а скорость напрямую связана с длительностью: более продолжительные перемещения совершаются с более высокой средней скоростью.
2. Рефрактерное состояние (период нечувствительности). После завершения периода активности муравей останавливается и переходит в режим обязательного отдыха на строго фиксированное время. В течение этого интервала особь полностью невосприимчива к внешним раздражителям. Даже если активный сородич заденет рефрактерного муравья, тот останется неподвижным. Этот период необходим для восстановления внутренних ресурсов организма.
3. Пассивное состояние. После завершения времени обязательного отдыха муравей остается неподвижным, но переходит в восприимчивое состояние. Теперь он готов снова начать движение, если с ним физически проконтактирует активная особь. Также сохраняется крайне малая вероятность того, что он начнет движение самостоятельно, без внешнего воздействия.
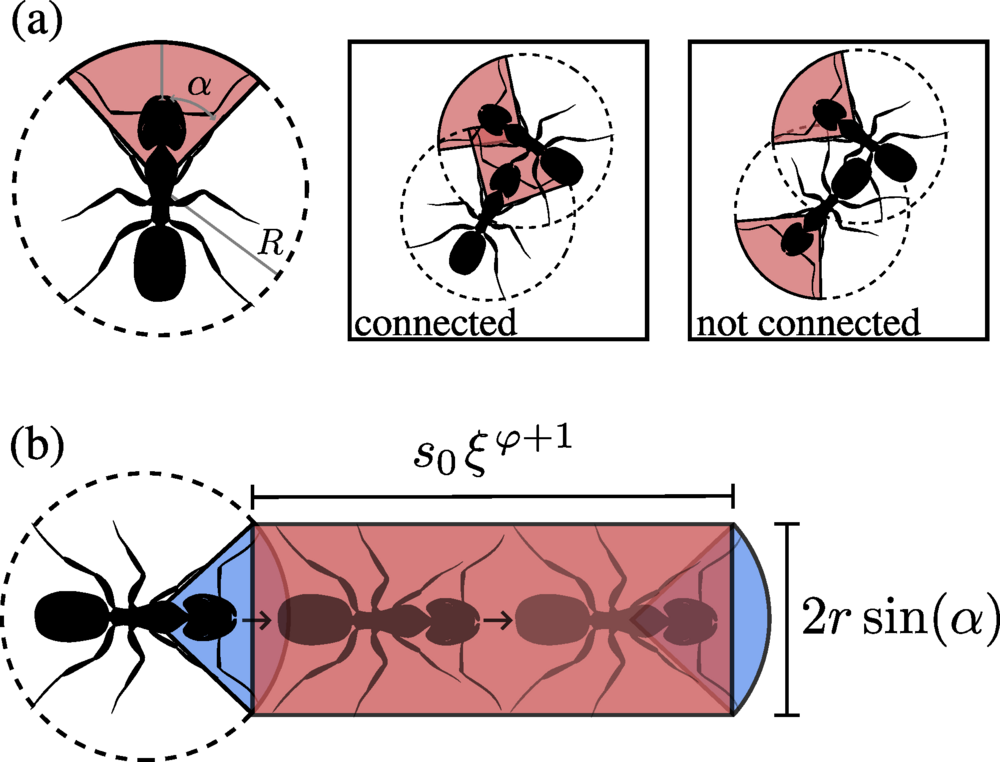
Контакт между особями регистрируется с помощью геометрических параметров: особь считается обнаруженной, если она попадает в сектор чувствительности антенн движущегося муравья. Эта зона задается длиной антенн и углом обзора перед головой насекомого.
Роль первого муравья и структура волны активности
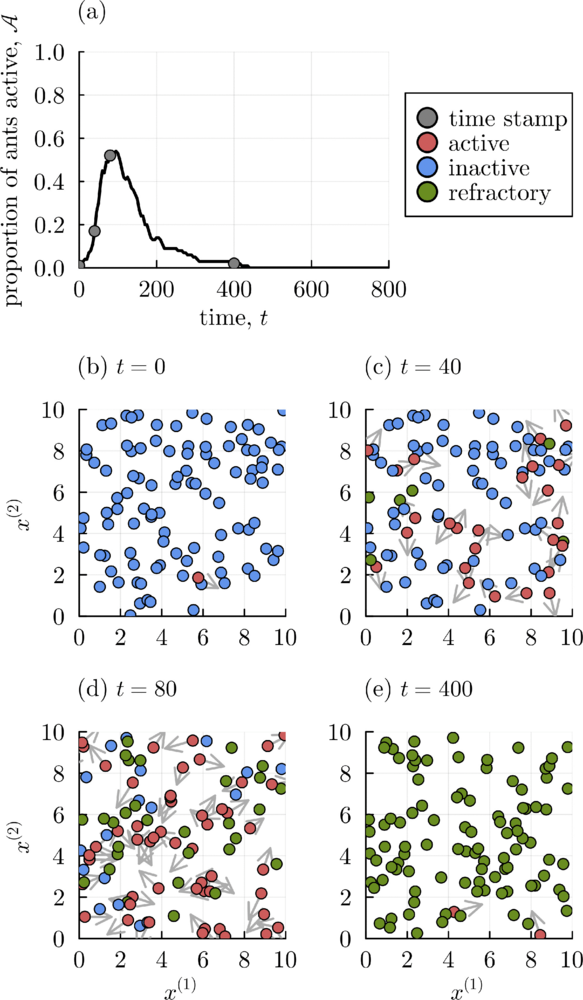
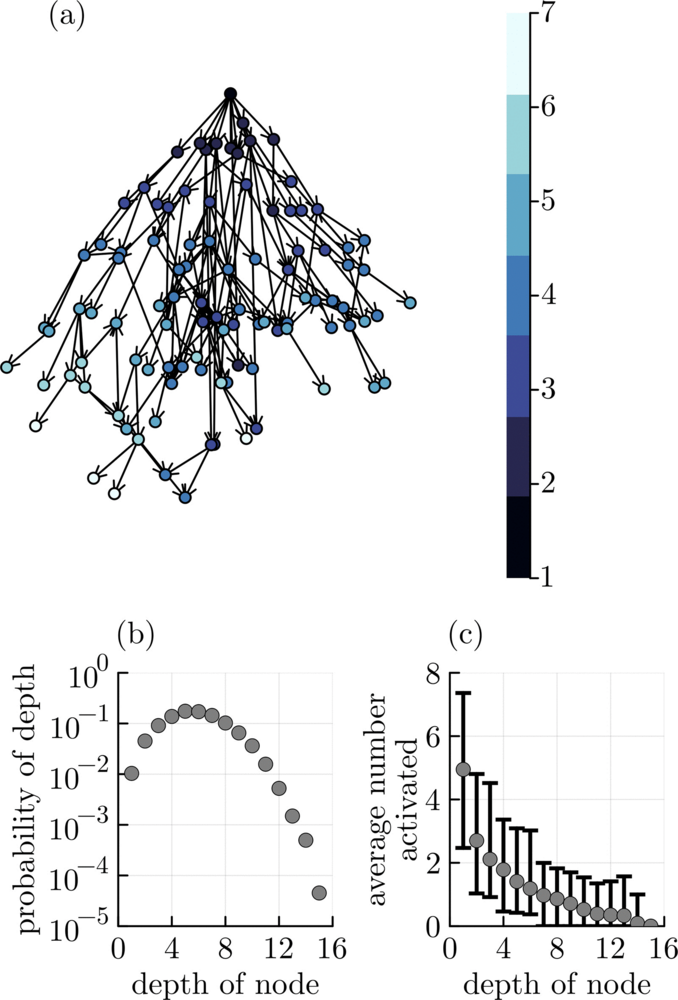
Моделирование показало, что общий всплеск активности колонии не требует одновременного старта множества особей. Всплеск всегда начинается с одной-единственной особи — первого активировавшегося муравья.
В фазе всеобщего покоя вероятность того, что пассивный муравей спонтанно придет в движение, исчезающе мала. Однако в группе из десятков или сотен особей через определенное время один из муравьев неизбежно начинает двигаться в силу случайных внутренних факторов.
Этот первый муравей перемещается по гнезду, где подавляющее большинство соседей находится в пассивном состоянии и готово реагировать на контакт. При столкновении он передает активность неподвижным особям. Те, в свою очередь, начинают движение и активируют следующих соседей.
Авторы работы детально изучили структуру передачи активности и выявили несколько ключевых закономерностей:
- Первый муравей передает активность наибольшему числу особей по сравнению с любым другим участником всплеска, поскольку перемещается среди полностью восприимчивых соседей.
- Скорость нарастания активности достигает максимума примерно через 4-5 шагов передачи контакта от первого муравья. На этой стадии система достигает пика плотности движения.
- Вероятность того, что во время развития каскада где-то в другой части гнезда спонтанно проснется второй независимый муравей, крайне мала и обратно пропорциональна общему размеру колонии. Это означает, что вторичные спонтанные очаги практически отсутствуют: весь всплеск является прямым следствием действий одного инициатора.
Каскад не длится бесконечно. По мере движения муравьи постепенно останавливаются и переходят в рефрактерное состояние нечувствительности. Число восприимчивых особей быстро падает до нуля. Волна движения затухает, и гнездо погружается в состояние полного покоя до тех пор, пока у всех особей не закончится время обязательного отдыха.
Условия синхронизации: баланс передачи сигнала и времени отдыха
Центральный результат исследования заключается в определении точных физических условий, при которых в колонии возникает устойчивый синхронный ритм.
Ученые установили, что муравьи функционируют в так называемом высокоскоростном режиме взаимодействия. Это означает, что время, за которое муравей пересекает зону контакта с соседом, в несколько раз меньше общей продолжительности всплеска активности. Благодаря высокой относительной скорости перемещения особи быстро перемешиваются по площади гнезда, и локальные контакты без задержек транслируются на уровень всей группы.
Для возникновения регулярной синхронизации необходимо строгое динамическое равновесие между двумя противоположными силами:
Условие возникновения синхронного ритма:
1. Сила распространения активности
Определяется тем, сколько особей в среднем успевает разбудить первый муравей за время своего движения. Эта величина зависит от трех факторов:
- плотности расселения муравьев в гнезде;
- вероятности того, что контакт приведет к пробуждению соседа;
- ширины зоны обзора сенсорного аппарата муравья.
2. Сила возврата к покою
Определяется способностью колонии полностью отключить движение до начала следующего цикла. Эта величина зависит от трех параметров:
- времени обязательного рефрактерного отдыха особей;
- скорости, с которой активные муравьи самостоятельно прекращают движение;
- редкости случайных, спонтанных пробуждений в колонии.
Баланс системы
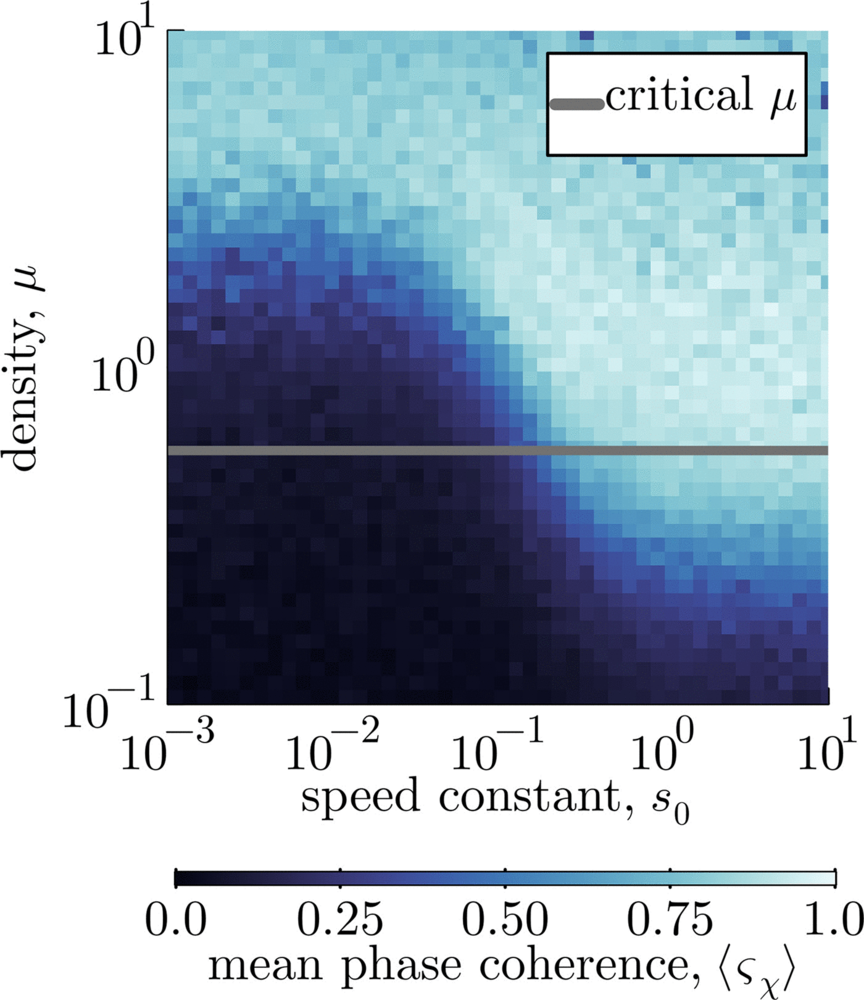
Система демонстрирует синхронные всплески только тогда, когда способность первого муравья запустить цепную реакцию точно уравновешивается временем, необходимым всей колонии для полной остановки и восстановления.
Если баланс смещается в сторону возбуждения (например, плотность муравьев слишком высока или они чрезмерно легко активируются от любого прикосновения), колония теряет способность возвращаться к покою. Муравьи непрерывно будят друг друга, и синхронизация разрушается: движение становится постоянным и хаотичным.
Если же баланс смещается в сторону затухания (муравьи слишком быстро останавливаются или период отдыха чрезмерно затянут), единичный муравей не успевает передать активность критическому числу соседей. Волна затухает на первых шагах, и колония остается неподвижной.
Синхронные всплески возникают строго на границе раздела этих двух режимов — в точке фазового перехода. Статистический анализ показал, что вблизи этой границы частота появления различных уровней активности подчиняется закону Ципфа: вероятность определенного уровня активности обратно пропорциональна его порядковому номеру в рейтинге встречаемости. В физике сложных систем соответствие закону Ципфа служит прямым индикатором того, что система находится в критическом состоянии на грани между порядком и шумом.
Почему не все виды муравьев живут по единому ритму
Разработанная модель объясняет, почему ритмические всплески выражены не у всех видов общественных насекомых, а также почему они пропадают при изменении условий среды.
В качестве примера можно рассмотреть муравьев рода Pheidole. У них существует разделение рабочей касты на мелких обычных рабочих и крупных солдат с массивными головами. Эксперименты показывают, что колонии Pheidole не демонстрируют синхронных всплесков активности.
Причина заключается в высокой поведенческой инерции солдат. Чтобы побудить солдата к движению, требуется гораздо более интенсивный тактильный сигнал, чем для обычного рабочего. Из-за этого общая восприимчивость колонии к передаче активности падает ниже критического порога. Когда волна движения доходит до солдат, она затухает, не вызывая масштабного отклика всей группы.
У других видов, например у рыжих лесных муравьев Formica rufa, синхронизация внутри гнезда подавляется постоянным процессом добычи пищи. Сборщики возвращаются в гнездо непрерывным потоком на протяжении всего дня. Каждый входящий муравей создает локальное возмущение и активирует неподвижных сородичей в произвольные моменты времени.
В результате в гнезде не может сформироваться общее состояние покоя: пока одна часть колонии отдыхает, другая пробуждается под действием внешнего потока. В таких условиях система переходит в режим непрерывной фоновой активности.
Практическое значение: распределенные автономные системы и робототехника
Выводы, полученные при анализе биологической модели, имеют прикладное значение для проектирования автономных технических систем, состоящих из множества независимых устройств.
В современной робототехнике координация групп агентов — например, автоматизированных складских тележек, сельскохозяйственных дронов или автономных погрузчиков — традиционно строится на двух подходах:
- Централизованное управление. Все роботы непрерывно передают данные на центральный сервер, который рассчитывает траектории и отправляет команды обратно. При увеличении числа устройств до сотен и тысяч сервер перегружается, а система теряет устойчивость: поломка центрального узла останавливает работу всей группы.
- Полносвязная беспроводная сеть. Роботы постоянно обмениваются радиосигналами между собой. Этот подход перегружает радиоэфир и требует значительных затрат энергии на поддержание непрерывной связи.
Модель, описывающая поведение муравьиной колонии, предлагает альтернативный инженерный метод: организацию согласованных волн активности исключительно за счет локальных механических взаимодействий.
Чтобы группа автономных роботов согласованно чередовала периоды активной работы и накопления данных или подзарядки, нет необходимости устанавливать радиопередатчики дальнего действия или единый сервер. Достаточно настроить три локальных параметра:
- чувствительность бортовых датчиков ближнего действия (ширину зоны фиксации препятствий и соседей);
- рабочую скорость перемещения, гарантирующую эффективное перемешивание агентов в пространстве;
- фиксированный интервал аппаратного отключения реакции на внешние сигналы после выполнения очередного рабочего цикла.
При правильном расчете этих параметров система автономно переходит в режим периодической синхронной активации. Локальный сигнал одного робота запускает цепную реакцию активации всей группы, а обязательный период последующей блокировки автоматически возвращает систему в состояние покоя без использования внешних команд управления.
Заключение
Исследование коллективной активности муравьев демонстрирует, как сложное глобальное поведение группы формируется на основе простых физических и поведенческих правил.
Периодический ритм колонии не требует развитой нервной системы у отдельных особей, центрального контроля или синхронизированных внутренних часов. Он представляет собой естественный результат сочетания трех элементов: пространственного перемещения, передачи импульса при прямом контакте и обязательного периода временного покоя.
Этот механизм подтверждает универсальный принцип самоорганизации в природе: правильное соотношение локальных задержек и параметров взаимодействия способно переводить сложную децентрализованную систему из хаотического состояния в строго упорядоченный рабочий режим.
Источник: PRX Life

0 комментариев
Добавить комментарий