Ископаемый мозг возрастом 80 млн лет показал: ранние змеи параллельно осваивали жизнь под землей, на суше и в море

Пост опубликован в блогах iXBT.com, его автор не имеет отношения к редакции iXBT.com
| Статья | Наука и космос

Происхождение змей — достаточно сложная и обсуждаемая тема в эволюционной биологии позвоночных животных. Переход от четырехопорных ящериц к удлиненному телу без конечностей потребовал радикальной перестройки скелета, мускулатуры, нервной системы и органов чувств. Однако ученые долгое время не могли прийти к единому выводу о том, в какой именно среде обитания происходили эти изменения.

На протяжении десятилетий палеонтологи выдвигали три основные гипотезы. Согласно первой, змеи произошли от морских рептилий, близких к мозазаврам. Вторая гипотеза утверждала, что предки змей вели подземный, роющий образ жизни, в результате чего потеряли зрение и конечности. Третья гипотеза связывала происхождение змей с наземными бегающими или лазающими ящерицами.
Змея Tametara mirim в природе, вольная интерпретация
Автор: ИИ Copilot Designer//DALL·E 3 Источник: www.bing.com

Главным ограничением всех трех гипотез было представление о том, что ранняя эволюция змей шла по единой прямой линии: одна древняя группа постепенно адаптировалась к конкретным условиям и затем дала начало всем современным видам. Новое исследование ископаемой рептилии возрастом около 80 миллионов лет, опубликованное в журнале Nature, показывает, что эволюционный процесс был устроена иначе.

Находка в песчаниках Бразилии

В позднемеловых отложениях формации Адамантина в штате Сан-Паулу на юго-востоке Бразилии палеонтологи обнаружили окаменелые остатки древней рептилии. Новый вымерший вид получил название Tametara mirim. Название составлено из слов языка индейцев тупи-гуарани: «таметара» означает «украшенная» (указывая на выраженный костный гребень на верхней части черепа), а «мирим» — «маленькая».

Ископаемый образец представляет собой сочлененный скелет, включающий 103 позвонка и заднюю половину черепа. Сохраненная длина черепа составляет 17,8 миллиметра, а полная длина головы при жизни животного оценивается примерно в 33 миллиметра. Общая длина тела Tametara mirim составляла около 42 сантиметров. По степени слияния черепных костей и развитию позвонков исследователи установили, что найденная особь была взрослой.

В отличие от большинства других мезозойских змей, скелет Tametara mirim сохранился в трехмерном объеме, а не был раздавлен тяжестью горных пород. Чтобы изучить внутреннее строение окаменелости, не разрушая ее, авторы работы применили метод микрокомпьютерной томографии.

Рентгеновское сканирование с пространственным разрешением от 16 до 34 микрометров позволило разделить костные элементы и внутренние полости. На основе полученных томограмм исследователи построили точную трехмерную модель скелета, черепа и полости головного мозга.
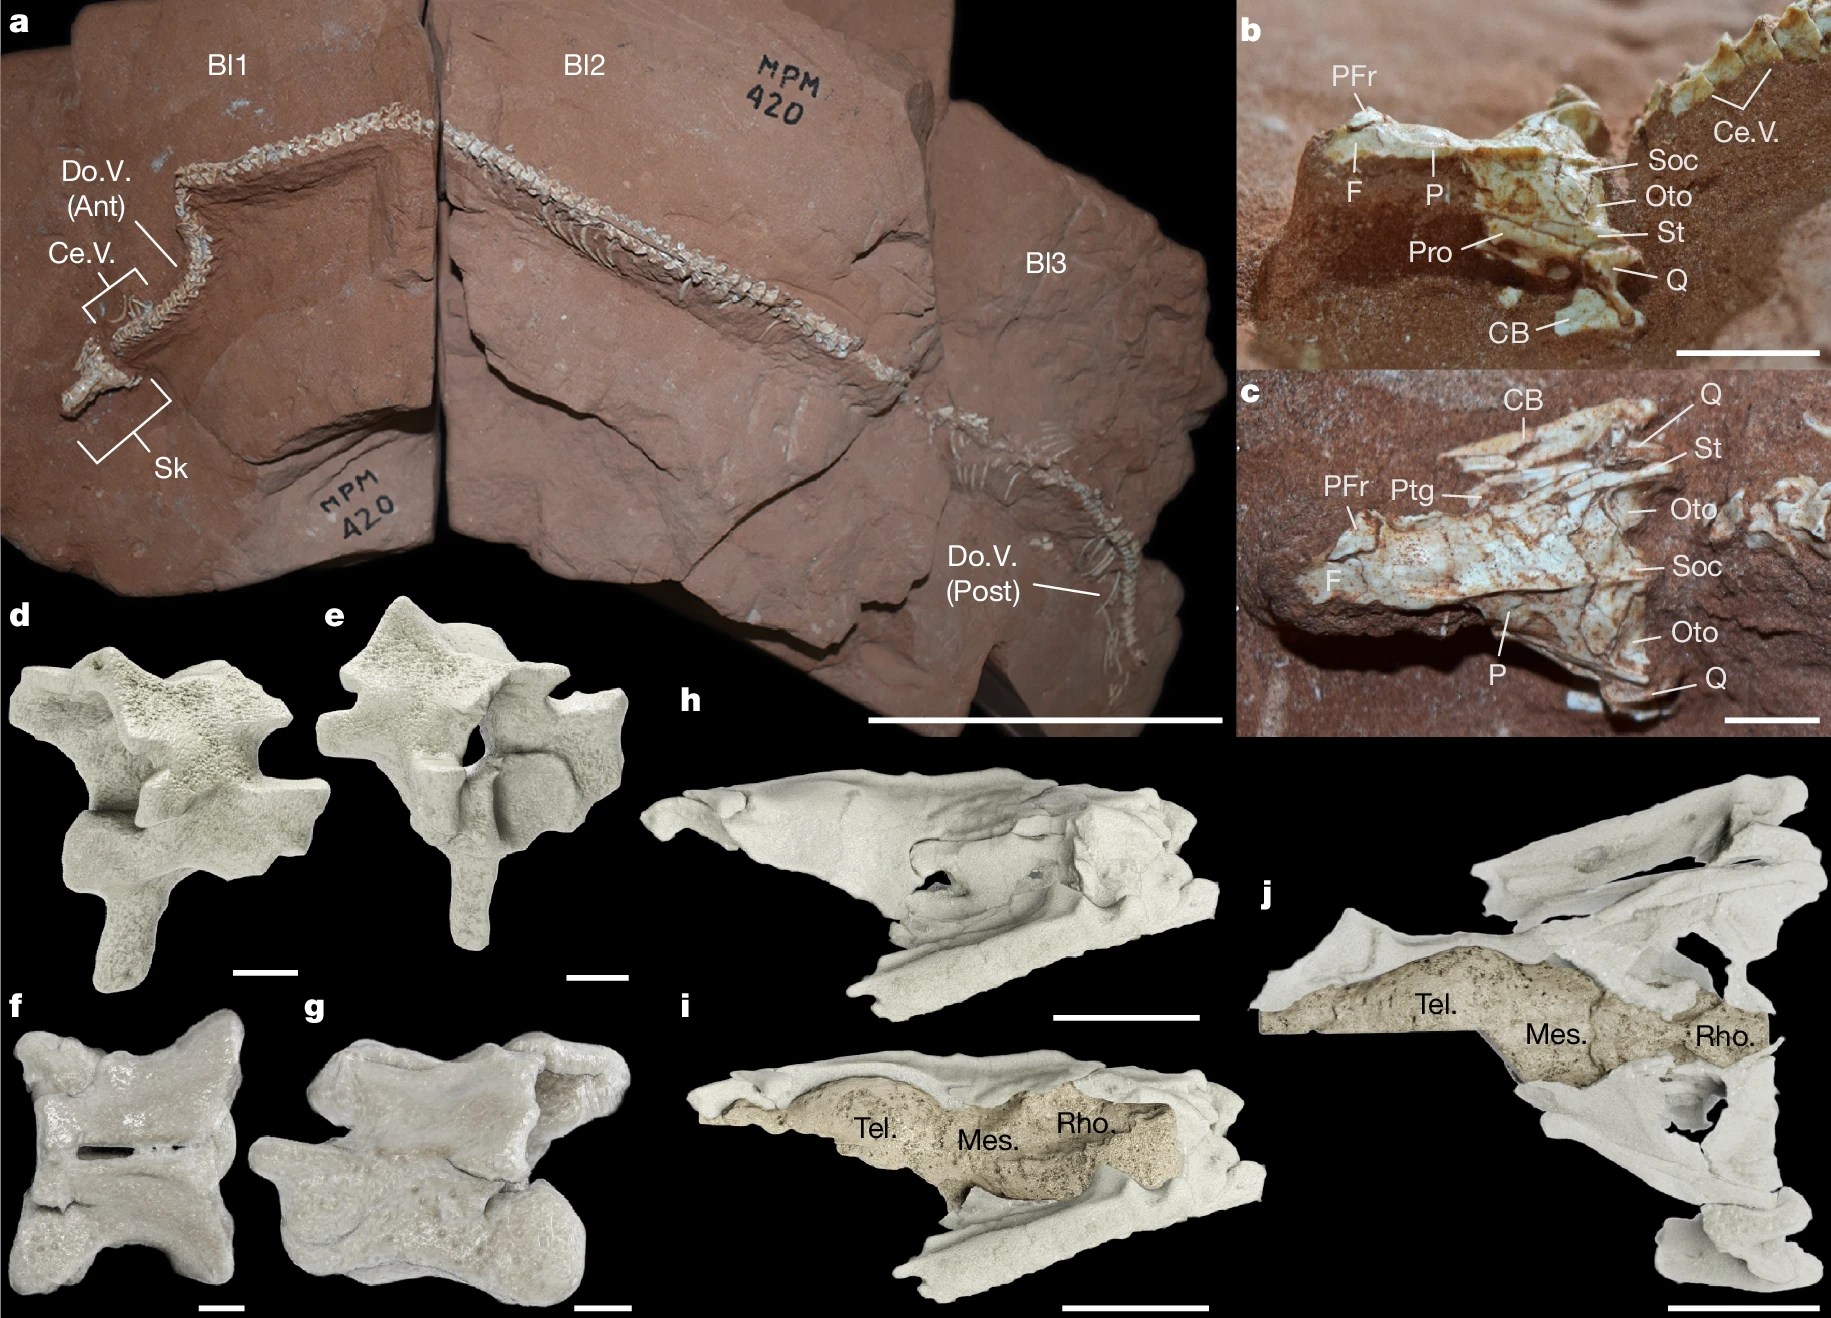
а — Фотография всего образца с соединенным черепом и скелетом (вид сверху). Обозначения: Ant — передняя часть; Bl — номер блока породы; Ce.V. — шейные позвонки; Do.V. — спинные позвонки; Post — задняя часть; Sk — череп. б, в — Фотографии черепа: вид сбоку (б) и вид сверху (в). Обозначения костей: CB — сложная челюстная кость; F — лобная кость; Oto — ушно-затылочная кость; P — теменная кость; PFr — заднелобная кость; Pro — переднеушная кость; Ptg — крыловидная кость; Q — квадратная кость; Soc — верхнезатылочная кость; St — надвисочная кость. г–ж — Трехмерные модели позвонков: передний («шейный») позвонок, вид сбоку (г) и спереди-сбоку (д); средний спинной позвонок, вид сверху (е) и слева сбоку (ж). з–к — Трехмерные модели черепа: вид справа сбоку (з), а также с открытой моделью мозга, вид справа сбоку (и) и сверху (к). Обозначения отделов мозга: Mes. — средний мозг; Rho. — задний мозг; Tel. — передний мозг. Масштабные отрезки: 100 мм (а), 5 мм (б, в, з–к) и 1 мм (г–ж). Фотографии: А. С. Хиоу.
а — Фотография всего образца с соединенным черепом и скелетом (вид сверху). Обозначения: Ant — передняя часть; Bl — номер блока породы; Ce.V. — шейные позвонки; Do.V. — спинные позвонки; Post — задняя часть; Sk — череп. б, в — Фотографии черепа: вид сбоку (б) и вид сверху (в). Обозначения костей: CB — сложная челюстная кость; F — лобная кость; Oto — ушно-затылочная кость; P — теменная кость; PFr — заднелобная кость; Pro — переднеушная кость; Ptg — крыловидная кость; Q — квадратная кость; Soc — верхнезатылочная кость; St — надвисочная кость. г-ж — Трехмерные модели позвонков: передний («шейный») позвонок, вид сбоку (г) и спереди-сбоку (д); средний спинной позвонок, вид сверху (е) и слева сбоку (ж). з-к — Трехмерные модели черепа: вид справа сбоку (з), а также с открытой моделью мозга, вид справа сбоку (и) и сверху (к). Обозначения отделов мозга: Mes. — средний мозг; Rho. — задний мозг; Tel. — передний мозг. Масштабные отрезки: 100 мм (а), 5 мм (б, в, з-к) и 1 мм (г-ж). Фотографии: А. С. Хиоу.
Автор: Simões, T.R., Sobral, G., Macrì, S. et al. Источник: www.nature.com
Как ученые исследуют мозг вымерших животных

Мягкие ткани головного мозга и нервов не сохраняются в окаменелостях: они разлагаются в течение нескольких дней или недель после гибели организма. Однако у рептилий головной мозг достаточно плотно прилегает к внутренним стенкам черепной коробки. Кости черепа формируют отпечаток внешней поверхности мозга, его основных отделов, крупных нервов и органов внутреннего уха.

Этот виртуальный отпечаток внутренней полости черепа называют эндокастом. Сканирование полости черепа с помощью компьютерной томографии позволяет восстановить форму и пропорции головного мозга вымершего животного с высокой точностью.

У современных чешуйчатых рептилий (ящериц и змей) форма конечного мозга и органов слуха строго соответствует их образу жизни и способу добычи пищи. Сравнивая цифровые модели полостей черепа вымерших видов с аналогичными данными современных рептилий, палеонтологи могут определять, в какой среде обитало ископаемое животное.
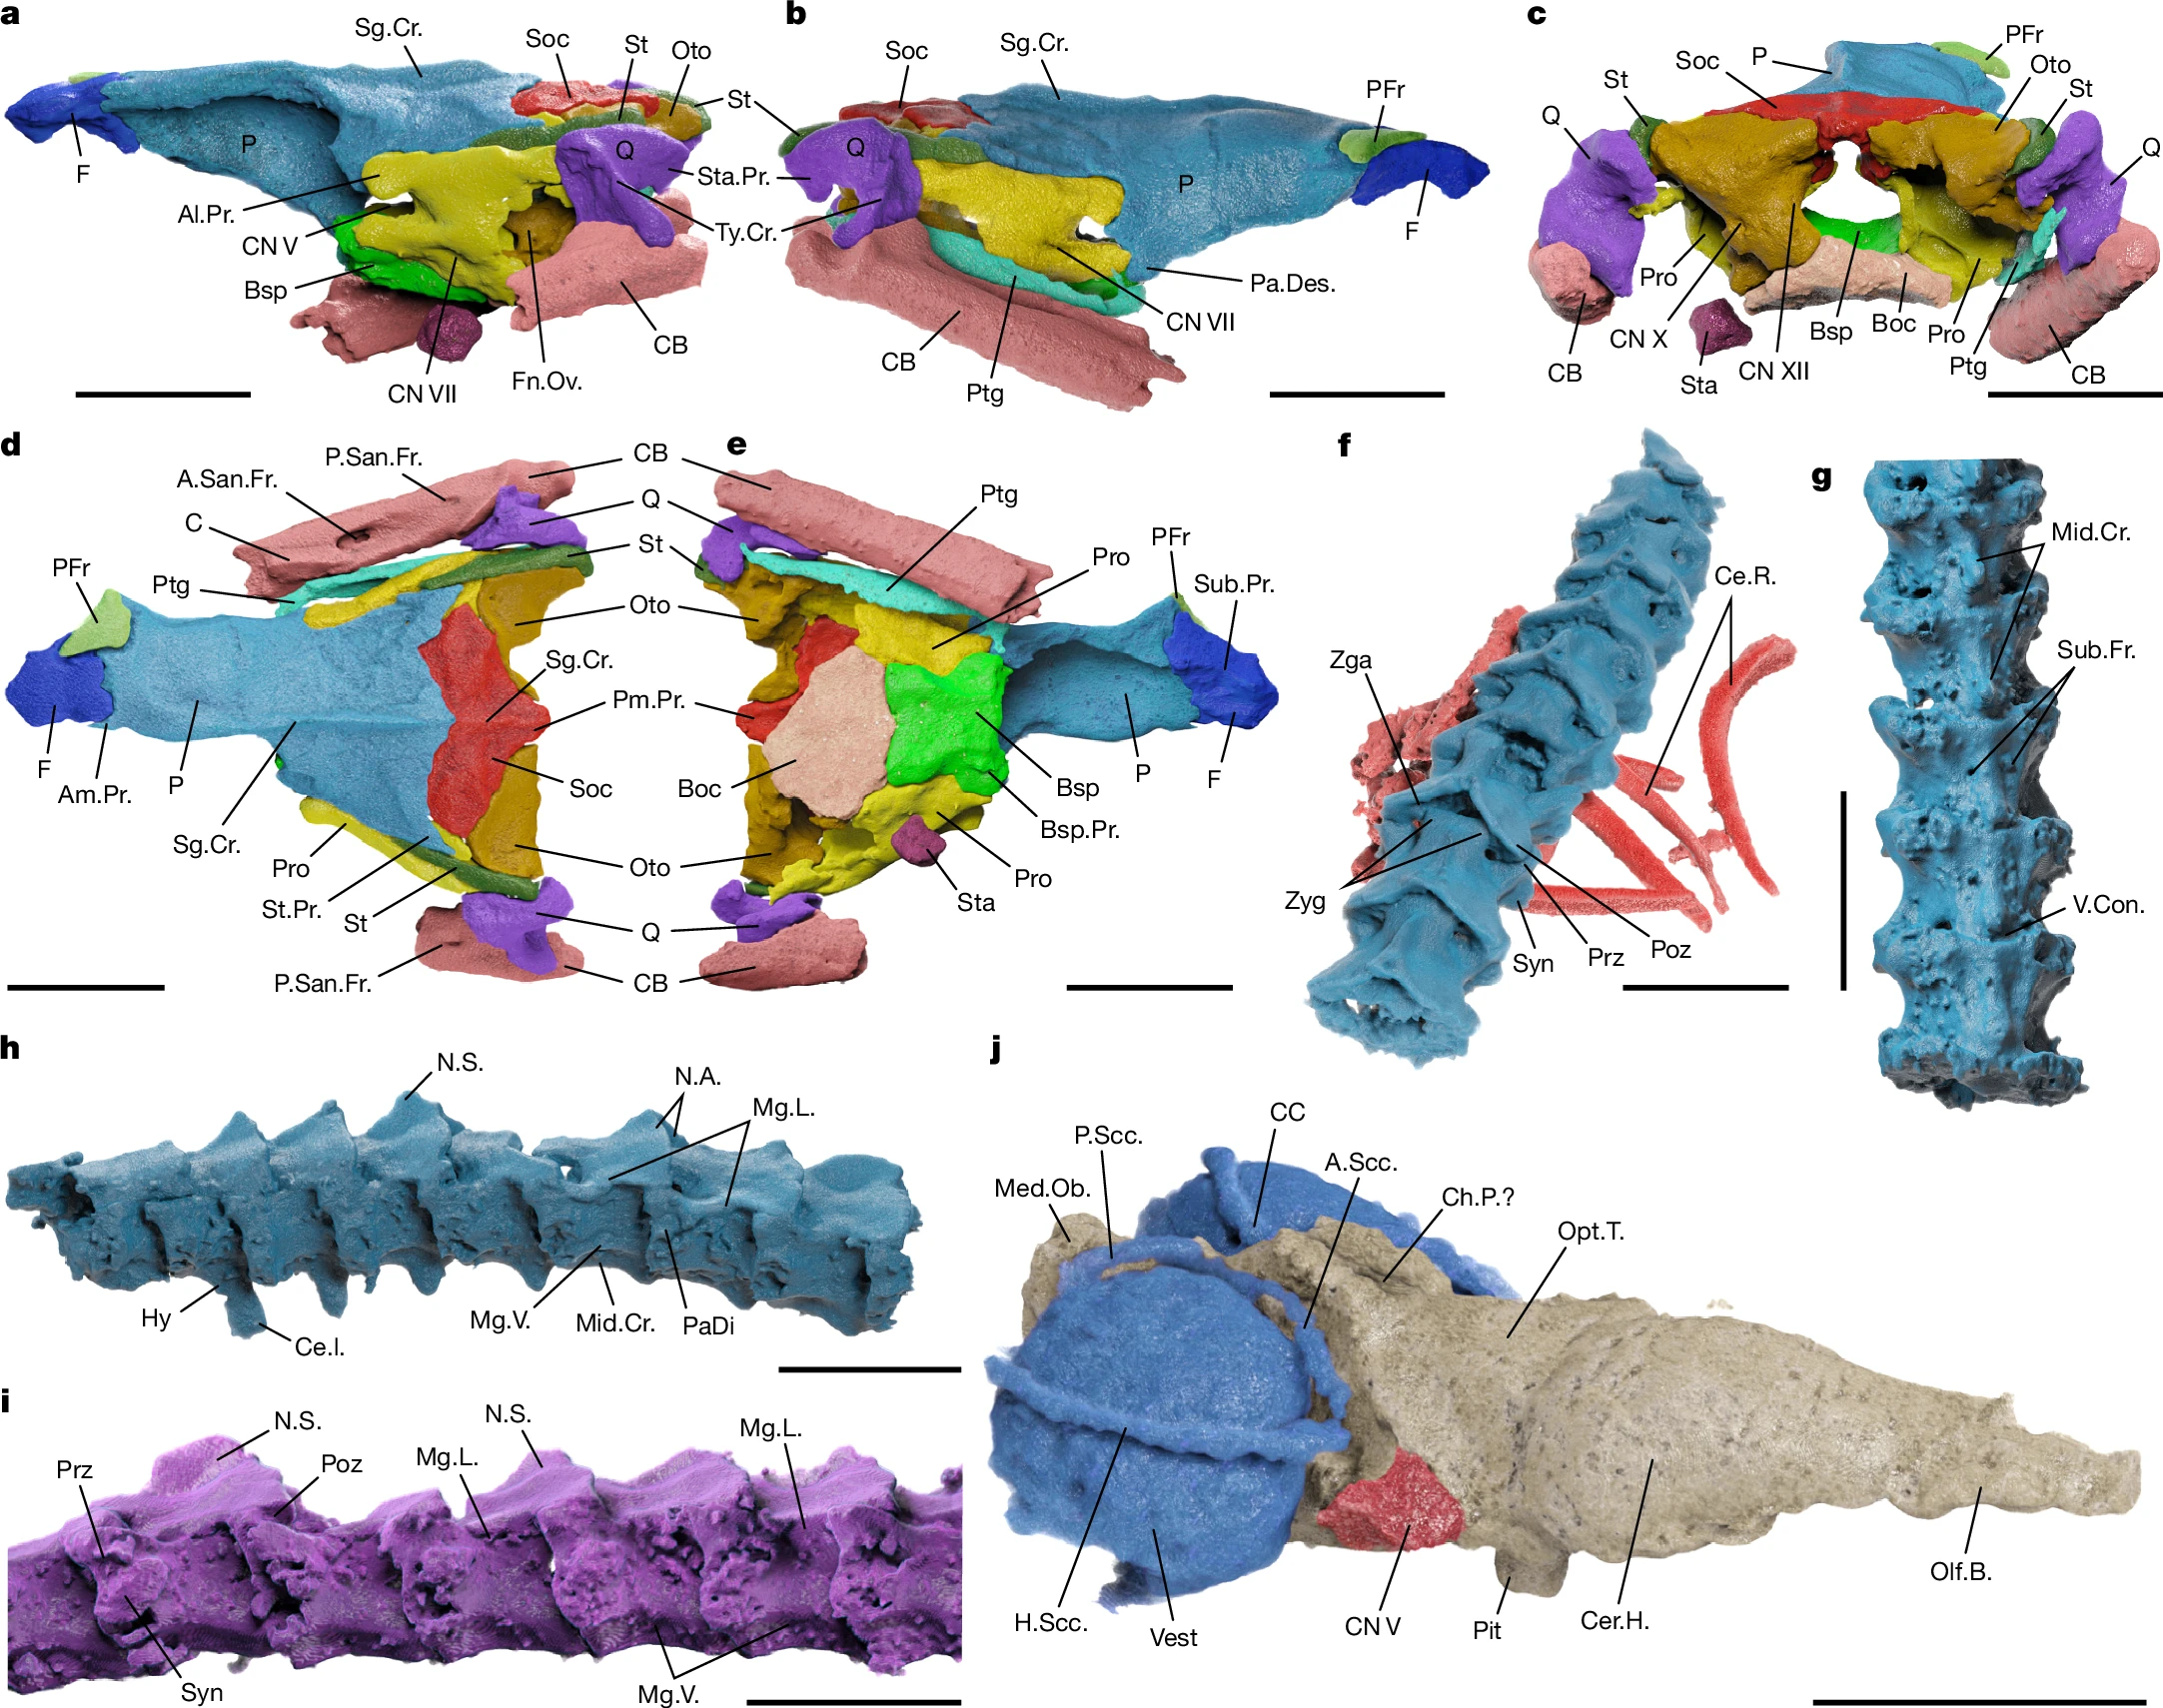
а–д — Выделенные трехмерные модели костей черепа (по данным микро-КТ): вид слева сбоку (а), справа сбоку (б), сзади (в), сверху (г) и снизу (д). Обозначения костей и структур черепа: A.San.Fr. — переднее надугольное отверстие; Al.Pr. — крыловидный отросток переднеушной кости; Am.Pr. — переднемедиальный отросток теменной кости; Boc — основная затылочная кость; Bsp — основная клиновидная кость; Bsp.Pr. — отросток основной клиновидной кости; C — венечная кость; CN — черепно-мозговой нерв; Fn.Ov. — овальное окно; Pa.Des. — нисходящий отросток теменной кости; Pm.Pr. — заднемедиальный отросток; P.San.Fr. — заднее надугольное отверстие; Sub.Pr. — подобонятельный отросток лобной кости; Sg.Cr. — сагиттальный гребень; St.Pr. — надвисочный отросток теменной кости; Sta — стремечко; Sta.Pr. — надстременной отросток квадратной кости; Ty.Cr. — барабанный гребень квадратной кости. е–з — Выделенные трехмерные модели передних туловищных («шейных») позвонков: вид сзади-сверху (е), снизу (ж) и слева сбоку (з). Обозначения структур позвонков: Ce.I. — шейный интерцентрум; Ce.R. — шейное ребро; Hy — гипапофиз; Mg.L. — боковой край; Mg.V. — брюшной край; Mid.Cr. — срединно-брюшной гребень (гемальный киль); N.A. — дуга позвонка; N.S. — остистый отросток; PaDi — пара-диапофиз; Poz — постзигапофиз (задний сочленовный отросток); Prz — презигапофиз (передний сочленовный отросток); Sub.Fr. — подцентральное отверстие; Syn — синапофиз; V.Con. — сочленовная головка позвонка; Zga — зигантрум; Zyg — зигосфен. и — Выделенные трехмерные модели средних туловищных позвонков, вид слева сбоку. к — Трехмерные модели (эндокасты) головного мозга, черепных нервов и внутреннего уха, вид спереди-сбоку. Обозначения отделов мозга и уха: A.Scc. — передний полукружный канал; CC — общее колено полукружных каналов; Cer.H. — полушарие конечного мозга; Ch.P. — сосудистое сплетение; H.Scc. — горизонтальный полукружный канал; Med.Ob. — продолговатый мозг; Olf.B. — обонятельная луковица; Opt.T. — зрительные доли (тектум); Pit — область гипофиза; P.Scc. — задний полукружный канал; Vest — преддверие внутреннего уха. Масштабный отрезок: 5 мм.
а-д — Выделенные трехмерные модели костей черепа (по данным микро-КТ): вид слева сбоку (а), справа сбоку (б), сзади (в), сверху (г) и снизу (д). Обозначения костей и структур черепа: A.San.Fr. — переднее надугольное отверстие; Al.Pr. — крыловидный отросток переднеушной кости; Am.Pr. — переднемедиальный отросток теменной кости; Boc — основная затылочная кость; Bsp — основная клиновидная кость; Bsp.Pr. — отросток основной клиновидной кости; C — венечная кость; CN — черепно-мозговой нерв; Fn.Ov. — овальное окно; Pa.Des. — нисходящий отросток теменной кости; Pm.Pr. — заднемедиальный отросток; P.San.Fr. — заднее надугольное отверстие; Sub.Pr. — подобонятельный отросток лобной кости; Sg.Cr. — сагиттальный гребень; St.Pr. — надвисочный отросток теменной кости; Sta — стремечко; Sta.Pr. — надстременной отросток квадратной кости; Ty.Cr. — барабанный гребень квадратной кости. е-з — Выделенные трехмерные модели передних туловищных («шейных») позвонков: вид сзади-сверху (е), снизу (ж) и слева сбоку (з). Обозначения структур позвонков: Ce.I. — шейный интерцентрум; Ce.R. — шейное ребро; Hy — гипапофиз; Mg.L. — боковой край; Mg.V. — брюшной край; Mid.Cr. — срединно-брюшной гребень (гемальный киль); N.A. — дуга позвонка; N.S. — остистый отросток; PaDi — пара-диапофиз; Poz — постзигапофиз (задний сочленовный отросток); Prz — презигапофиз (передний сочленовный отросток); Sub.Fr. — подцентральное отверстие; Syn — синапофиз; V.Con. — сочленовная головка позвонка; Zga — зигантрум; Zyg — зигосфен. и — Выделенные трехмерные модели средних туловищных позвонков, вид слева сбоку. к — Трехмерные модели (эндокасты) головного мозга, черепных нервов и внутреннего уха, вид спереди-сбоку. Обозначения отделов мозга и уха: A.Scc. — передний полукружный канал; CC — общее колено полукружных каналов; Cer.H. — полушарие конечного мозга; Ch.P. — сосудистое сплетение; H.Scc. — горизонтальный полукружный канал; Med.Ob. — продолговатый мозг; Olf.B. — обонятельная луковица; Opt.T. — зрительные доли (тектум); Pit — область гипофиза; P.Scc. — задний полукружный канал; Vest — преддверие внутреннего уха. Масштабный отрезок: 5 мм.
Автор: Simões, T.R., Sobral, G., Macrì, S. et al. Источник: www.nature.com
Анатомия нервной системы Tametara mirim

Цифровая реконструкция полости черепа Tametara mirim показала уникальное строение нервной системы, отличающее этот вид как от других древних змей, так и от современных чешуйчатых.

Анатомический анализ выявил следующие ключевые особенности:

  1. Обонятельная система и конечный мозг. Обонятельные луковицы у Tametara mirim короткие. Они плавно переходят в полушария конечного мозга без выраженных сужений. Подобная форма характерна для современных рептилий, живущих в толще почвы.
  2. Зрительные центры. Средний мозг, в котором расположен зрительный центр (зрительные доли), оказался уплощенным и слабо развитым. Это свидетельствует о том, что зрение не играло ключевой роли в ориентации животного.
  3. Внутреннее ухо. Вестибулярный отдел слуховой капсулы у Tametara mirim существенно укрупнен и занимает большую часть внутреннего объема костей уха. В то же время полукружные каналы, отвечающие за восприятие поворотов головы в пространстве, упрощены и уменьшены.

Такая анатомическая структура объясняется физикой работы органов чувств под землей. В плотной почве в условиях полного отсутствия света зрительная информация недоступна, поэтому мозг сокращает затраты ресурсов на обработку визуальных сигналов. При этом почва хорошо проводит механические колебания и низкочастотные вибрации. Укрупненное внутреннее ухо позволяет воспринимать малейшие движения грунта, вызванные перемещением добычи или хищников.
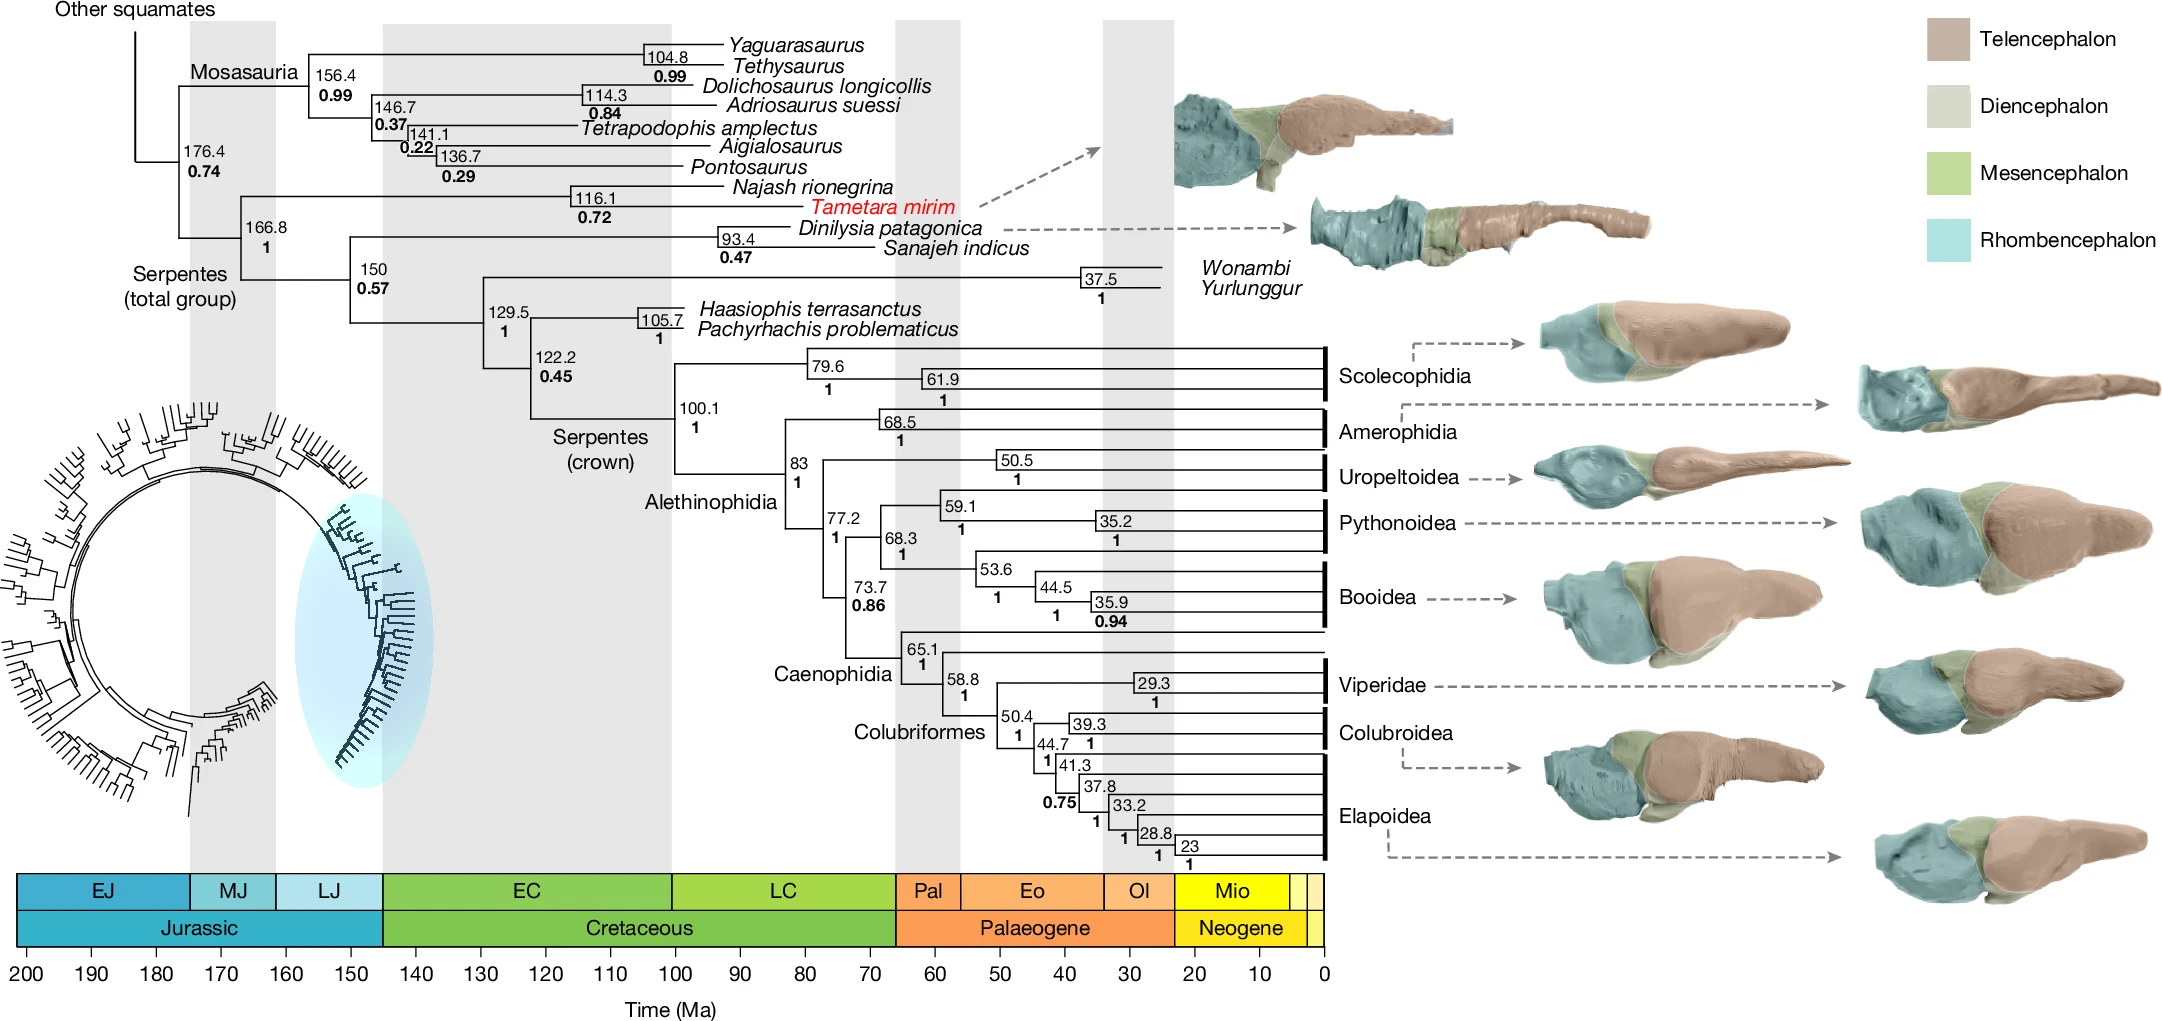
Обобщенные результаты датирования по совокупности данных (total evidence dating) с использованием скайлайн-модели рождения–гибели фоссилий и логнормальных ослабленных молекулярных часов. Значения в узлах дерева указывают время расхождения линий (верхнее число) и апостериорные вероятности (нижнее число, выделено жирным). Полное филогенетическое дерево представлено на врезке слева внизу (змеи выделены голубым овалом), а также на рисунках 6 и 7 в дополнительных материалах. Трехмерные модели мозга (эндокасты) для каждой группы представлены в следующем порядке (сверху вниз): T. mirim — стволовая змея; D. patagonica — стволовая змея; Liotyphlops albirostris — слепозмейки (Scolecophidia); A. scytale — слепозмейкообразные (Amerophidia); C. ruffus — цилиндрические змеи (Uropeltoidea); Python regius — питоны (Pythonoidea); Eryx jaculus — удавчики (Booidea); Crotalus intermedius — гадюковые (Viperidae); Thamnophis sirtalis — ужеобразные (Colubroidea); Boaedon fuliginosus — шпильковые змеи и их родичи (Elapoidea). Отделы мозга были размечены на основе йод-контрастного КТ-сканирования современных видов и реконструированы для ископаемых форм с помощью методов сравнительной анатомии. Обозначения геологических эпох: EC — ранний мел; EJ — ранняя юра; Eo — эоцен; LC — поздний мел; LJ — поздняя юра; Mio — миоцен; MJ — средняя юра; Ol — олигоцен; Pal — палеоцен.
Обобщенные результаты датирования по совокупности данных (total evidence dating) с использованием скайлайн-модели рождения-гибели фоссилий и логнормальных ослабленных молекулярных часов. Значения в узлах дерева указывают время расхождения линий (верхнее число) и апостериорные вероятности (нижнее число, выделено жирным). Полное филогенетическое дерево представлено на врезке слева внизу (змеи выделены голубым овалом), а также на рисунках 6 и 7 в дополнительных материалах. Трехмерные модели мозга (эндокасты) для каждой группы представлены в следующем порядке (сверху вниз): T. mirim — стволовая змея; D. patagonica — стволовая змея; Liotyphlops albirostris — слепозмейки (Scolecophidia); A. scytale — слепозмейкообразные (Amerophidia); C. ruffus — цилиндрические змеи (Uropeltoidea); Python regius — питоны (Pythonoidea); Eryx jaculus — удавчики (Booidea); Crotalus intermedius — гадюковые (Viperidae); Thamnophis sirtalis — ужеобразные (Colubroidea); Boaedon fuliginosus — шпильковые змеи и их родичи (Elapoidea). Отделы мозга были размечены на основе йод-контрастного КТ-сканирования современных видов и реконструированы для ископаемых форм с помощью методов сравнительной анатомии. Обозначения геологических эпох: EC — ранний мел; EJ — ранняя юра; Eo — эоцен; LC — поздний мел; LJ — поздняя юра; Mio — миоцен; MJ — средняя юра; Ol — олигоцен; Pal — палеоцен.
Автор: Simões, T.R., Sobral, G., Macrì, S. et al. Источник: www.nature.com
Цифровые измерения и анализ структуры костной ткани

Чтобы исключить субъективность при оценке образа жизни Tametara mirim, исследователи применили два независимых количественных метода: трехмерную геометрическую морфометрию и анализ микроструктуры костей черепа.

Метод 3D-геометрической морфометрии заключается в нанесении анатомических контрольных точек на трехмерные модели мозга. Разработчики сопоставили координаты этих точек у Tametara mirim с аналогичными данными 58 видов современных чешуйчатых и вымерших змей.

Второй метод основан на измерении физических параметров костей черепной крыши (лобных и теменных). Нагрузки, которые испытывает череп при движении под землей, напрямую влияют на структуру костной ткани. Для роющих рептилий характерны три основных показателя:

  • Высокая плотность кости (минимальный объем внутренних пор и полостей);
  • Увеличенная относительная толщина костей черепного свода;
  • Значительное перекрытие костей между собой в местах их соединения, что распределяет механическое давление по всей конструкции черепа.

Ученые измерили плотность, толщину, степень перекрытия и отношение длины костей у 108 видов рептилий.

Статистическая обработка данных показала следующие результаты. В математической модели, оценивающей форму конечного мозга, Tametara mirim попала в группу строго роющих организмов с вероятностью 99,2%. Анализ микроструктуры костей черепа подтвердил этот результат: плотность и толщина костей Tametara mirim полностью соответствуют показателям современных рептилий, прокладывающих ходы в почве.
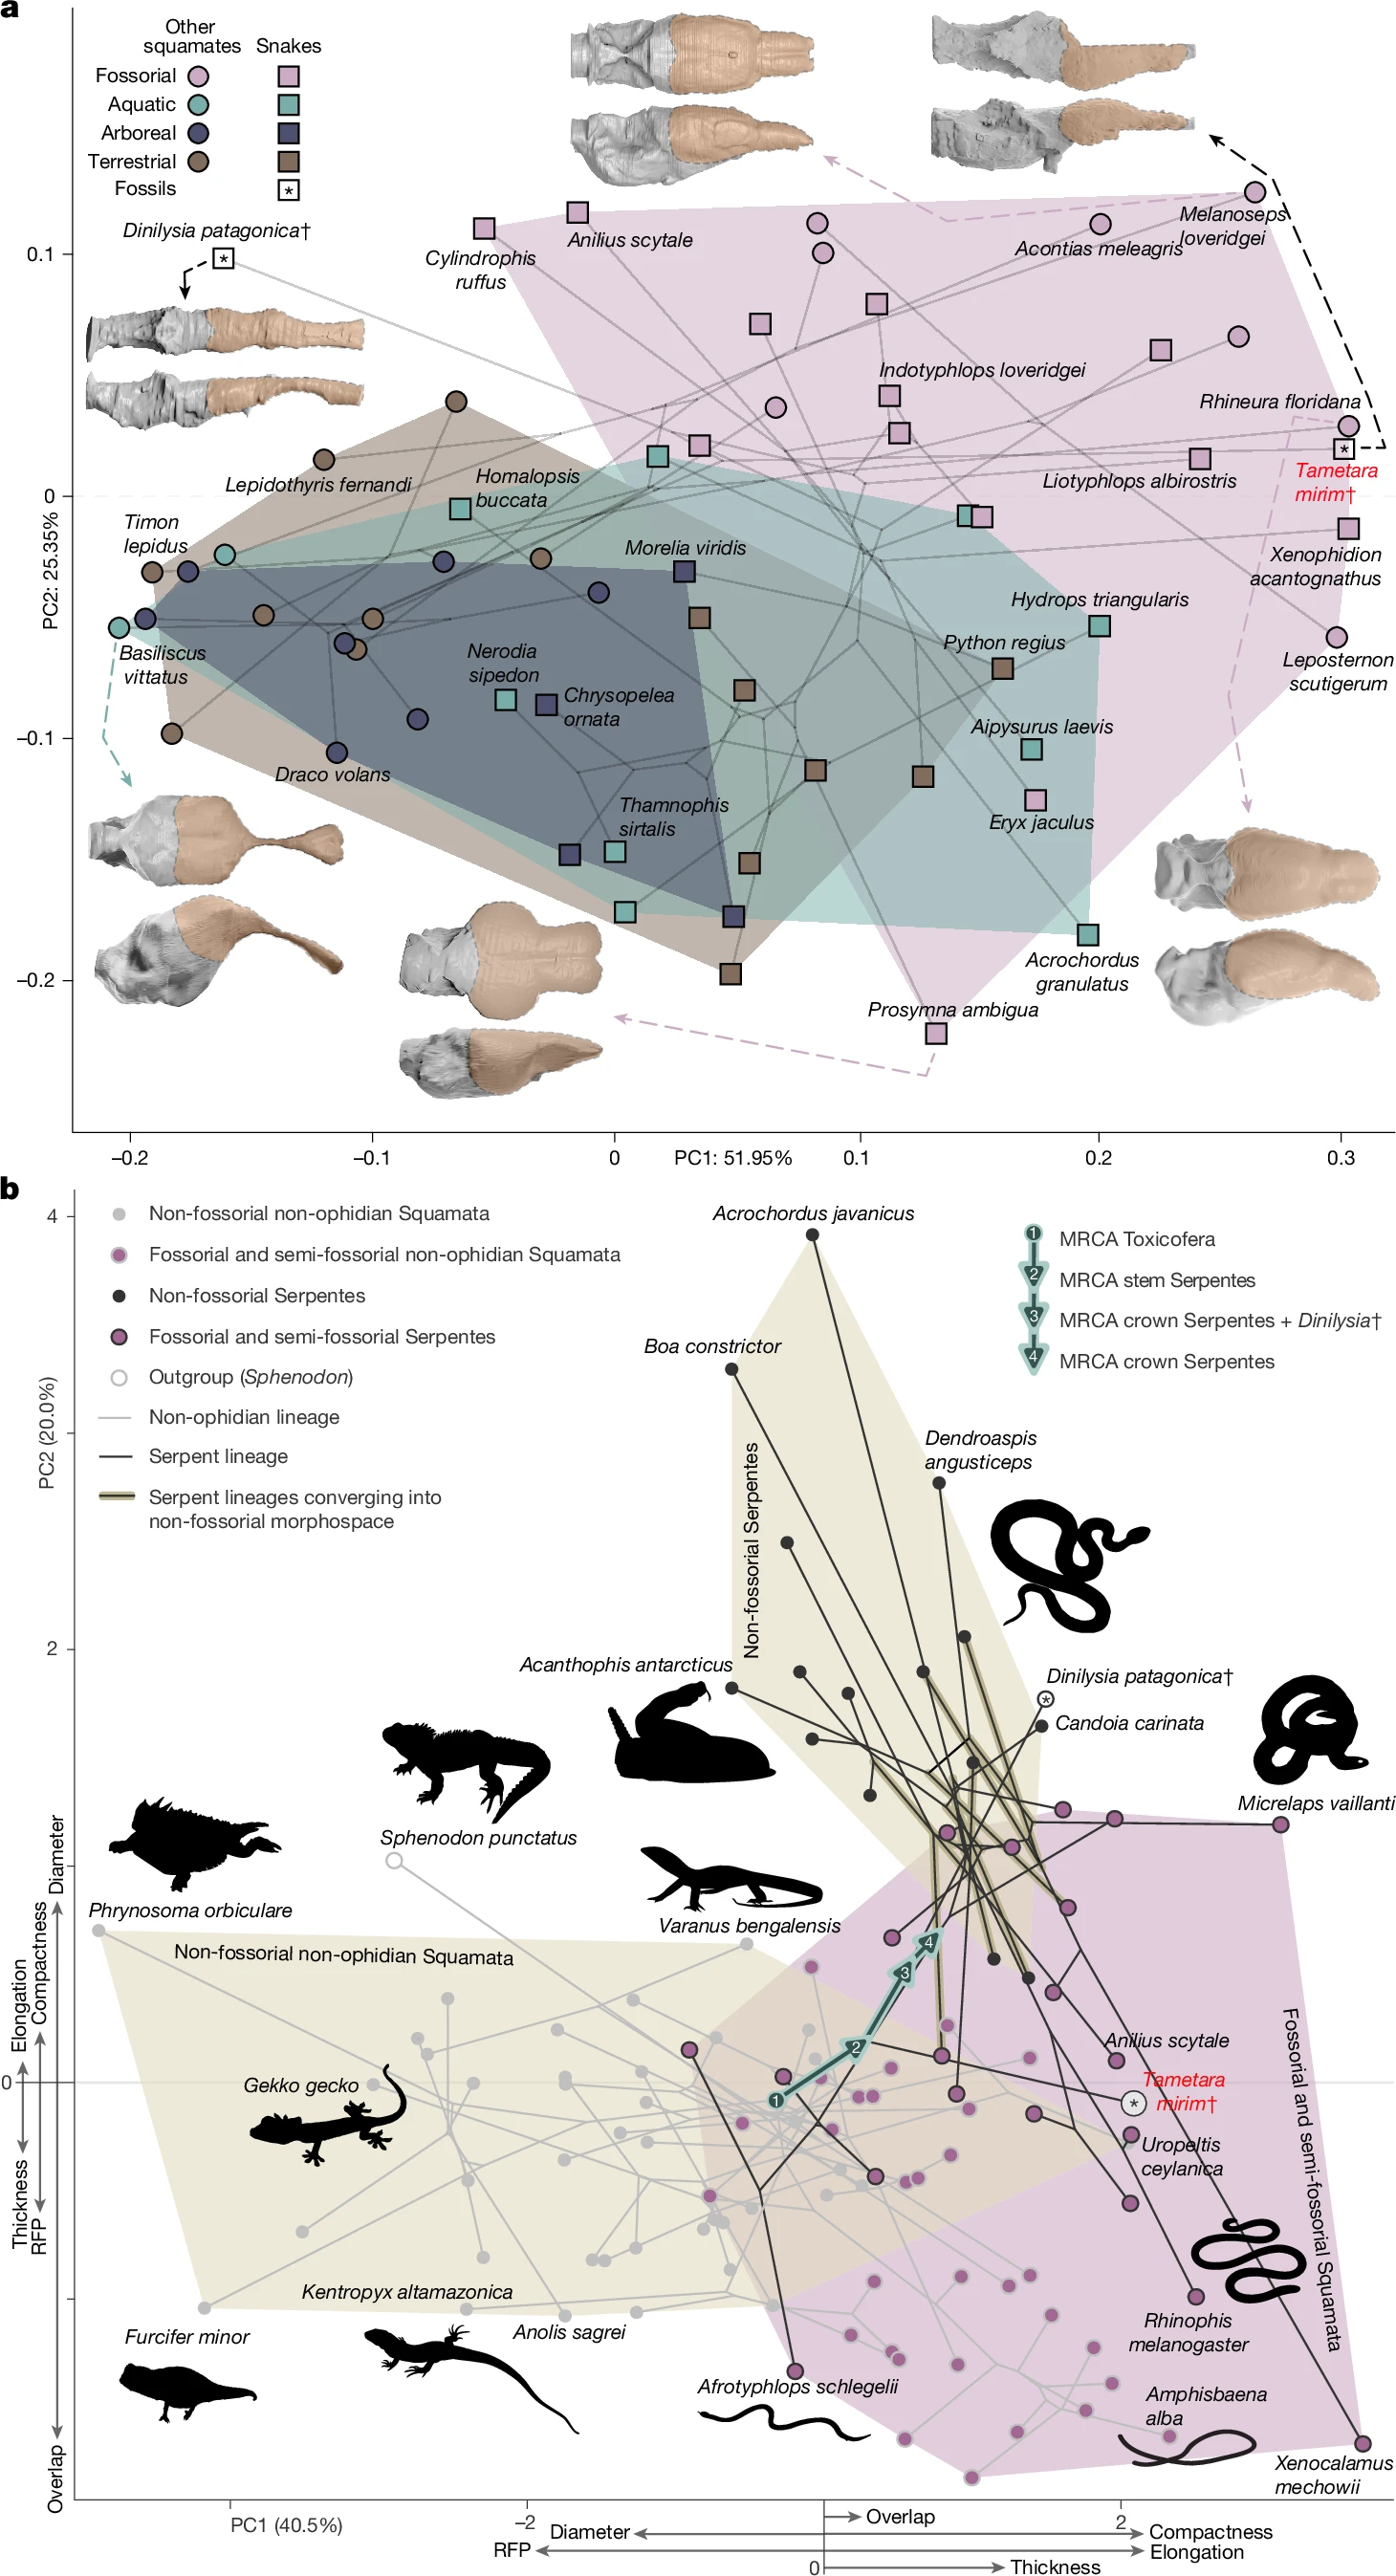
а — Филоморфопространство, показывающее изменчивость формы переднего (конечного) мозга у змей (квадраты) и других чешуйчатых рептилий (круги) с разным образом жизни (см. цветное обозначение и символы в легенде). Анализ включает 58 современных видов чешуйчатых и два ископаемых вида змей, отмеченных звездочками (всего n = 60 видов). Проценты на осях показывают долю общей изменчивости, которую объясняет каждая ось главных компонент. Полные модели мозга (эндокасты) с выделенным передним мозгом показаны для двух ископаемых видов (отмечены крестиками) и для крайних современных видов вдоль осей. Пунктирные стрелки соединяют модели мозга с названиями соответствующих видов. Дополнительные информативные виды указаны только названиями (полную схему анализа главных компонент с названиями всех видов см. на рисунке 9а в дополнительных материалах). б — Филоморфопространство на основе анализа главных компонент (PCA) по шести микроанатомическим и морфологическим признакам черепа. Данные получены путем микро-КТ сканирования 106 современных и двух ископаемых видов (всего n = 108 видов). Сплошные стрелки осей показывают анатомические параметры, вносящие наибольший вклад в первую и вторую главные компоненты (PC1 и PC2 соответственно). Длина стрелок отражает важность каждого параметра вдоль осей X и Y. Темно-коричневые линии обозначают случаи независимого приобретения и утраты роющего (подземного) образа жизни у змей. Ключевые предковые узлы, связанные с происхождением змей, пронумерованы. Зеленые стрелки показывают предполагаемый переход от ящериц к змеям (полную схему с названиями видов см. на рисунке 10 в дополнительных материалах). Обозначения: MRCA — ближайший общий предок; RFP — отношение длины лобной и теменной костей; PCA — анализ главных компонент; PC1, PC2 — первая и вторая главные компоненты. Силуэты животных созданы Т. Р. Симоесом (T.R.S.).
а — Филоморфопространство, показывающее изменчивость формы переднего (конечного) мозга у змей (квадраты) и других чешуйчатых рептилий (круги) с разным образом жизни (см. цветное обозначение и символы в легенде). Анализ включает 58 современных видов чешуйчатых и два ископаемых вида змей, отмеченных звездочками (всего n = 60 видов). Проценты на осях показывают долю общей изменчивости, которую объясняет каждая ось главных компонент. Полные модели мозга (эндокасты) с выделенным передним мозгом показаны для двух ископаемых видов (отмечены крестиками) и для крайних современных видов вдоль осей. Пунктирные стрелки соединяют модели мозга с названиями соответствующих видов. Дополнительные информативные виды указаны только названиями (полную схему анализа главных компонент с названиями всех видов см. на рисунке 9а в дополнительных материалах). б — Филоморфопространство на основе анализа главных компонент (PCA) по шести микроанатомическим и морфологическим признакам черепа. Данные получены путем микро-КТ сканирования 106 современных и двух ископаемых видов (всего n = 108 видов). Сплошные стрелки осей показывают анатомические параметры, вносящие наибольший вклад в первую и вторую главные компоненты (PC1 и PC2 соответственно). Длина стрелок отражает важность каждого параметра вдоль осей X и Y. Темно-коричневые линии обозначают случаи независимого приобретения и утраты роющего (подземного) образа жизни у змей. Ключевые предковые узлы, связанные с происхождением змей, пронумерованы. Зеленые стрелки показывают предполагаемый переход от ящериц к змеям (полную схему с названиями видов см. на рисунке 10 в дополнительных материалах). Обозначения: MRCA — ближайший общий предок; RFP — отношение длины лобной и теменной костей; PCA — анализ главных компонент; PC1, PC2 — первая и вторая главные компоненты. Силуэты животных созданы Т. Р. Симоесом (T.R.S.).
Автор: Simões, T.R., Sobral, G., Macrì, S. et al. Источник: www.nature.com
Почему одно открытие меняет общую картину эволюции

Главная научная ценность Tametara mirim заключается не только в подтверждении ее роющего образа жизни, но и в сопоставлении этих данных с другими вымершими змеями того же периода.

До этого открытия ученым были известны трехмерные черепа лишь нескольких древнейших змей мезозойской эры. Наиболее изученной из них была Dinilysia patagonica, жившая в позднем меловом периоде на территории современной Аргентины.

Томография мозга и анализ костей Dinilysia patagonica показывают противоположные результаты:

  • Ее обонятельные луковицы сильно вытянуты;
  • Полушария мозга имеют иную геометрию;
  • Кости черепа относительно тонкие, с низкой плотностью и минимальным перекрытием.

Математические модели классифицируют Dinilysia patagonica как наземное животное, обитавшее на поверхности почвы, с вероятностью 56,7%.

Кроме того, в мезозое существовала еще одна отдельная группа стволовых змей — симолиофииды (Simoliophiids). Они имели сглаженное тело, сохраняли рудиментарные задние ноги и жили в мелководных морских условиях.

Таким образом, в один и тот же геологический период (поздний мел) на Земле одновременно существовали:

  1. Строго подземные роющие змеи (Tametara mirim);
  2. Наземные змеи, охотившиеся на поверхности (Dinilysia patagonica);
  3. Морские змеи, жившие в воде (Simoliophiids).

Если бы змеи происходили от одного роющего предка и затем постепенно выходили на поверхность, все древнейшие ископаемые виды сохраняли бы признаки подземного прошлого. Однако присутствие качественно разных адаптаций у самых ранних представителей группы показывает, что единого экологического сценария не существовало.

Раздельное развитие анатомических систем

Исследование Tametara mirim также проливает свет на механизм, который в биологии называют мозаичной эволюцией. Это процесс, при котором разные органы и системы организма меняются с разной скоростью.

С точки зрения строения скелета Tametara mirim сохраняет много примитивных признаков, сближающих ее с ящерицами. Например, кости затылочной области у нее не срастаются по средней линии, а в задней части челюсти сохраняются анатомические отверстия, утраченные современными змеями.

Однако ее нервная система, форма мозга, улитковый аппарат внутреннего уха и плотность костей черепа уже были полностью адаптированы к специфическим условиям жизни под землей.

Это означает, что при переходе к новым экологическим нишам мягкие ткани, органы чувств и внутреннее строение костей менялись у древних змей быстрее, чем общая конфигурация внешнего скелета черепа.

Итог: новая модель происхождения змей

Открытие Tametara mirim позволяет пересмотреть представления о том, как формировались змеи.

Эволюция этой группы не была линейным процессом. Вместо одного последовательного перехода от ящерицы к подземному животному, а затем к современным наземным и древесным формам, происходила параллельная экологическая радиация.

На ранних этапах своей истории древние змеи быстро освоили самые разные среды обитания. Различные линии независимо друг от друга экспериментировали с подземным, наземным и водным образом жизни. Именно это разнообразие экологических ниш и гибкость анатомической перестройки позволили змеям стать одной из самых успешных и разнообразных групп современных наземных позвоночных.

Источник: Nature

0 комментариев

Добавить комментарий

Сейчас на главной

Новости

Публикации

Можно ли спастись от бегемота, забравшись на дерево: почему знаменитый совет может оставить человека без выхода

Со стороны бегемот совсем не похож на животное, рядом с которым понадобится дерево. Короткие ноги, округлое тяжёлое тело, почти ленивые движения в воде. Кажется, что при необходимости достаточно...

Чихуахуа оказались отчасти койотами — и это наконец объясняет их дерзкий и бесстрашный характер

Маленький размер, вес менее трех килограммов, дрожь в теле и привычка сидеть в дорожной сумке создали породе чихуахуа репутацию хрупкого декоративного аксессуара. Однако любой кинолог, ветеринар...

С какой скоростью на самом деле растут горы: древний супервулкан дал геологам точный ответ

Определение скорости роста горных хребтов — одна из самых сложных прикладных задач физической геологии. Земная кора непрерывно деформируется под действием тектонических сил, однако...

Как гиена разгрызает кости, которые не поддаются льву: в чём секрет её челюстей?

Когда лев завершает трапезу, на земле остаются фрагменты скелета, которые для большинства хищников представляют лишь несъедобный остаток. Бедренная кость антилопы гну или ребро зебры не поддаются...

Механическая клавиатура, которая отлично подружилась с MacBook Neo: обзор VAIVER Leaf V3

Механических клавиатур сейчас огромное количество, и на бумаге многие из них выглядят практически одинаково: переключатели, несколько вариантов подключения, подсветка, компактный корпус. Но когда...

Зачем раньше в деревнях на заборы вешали глиняные горшки и бутылки

В любом деревенском пейзаже раньше да и иногда и сегодня можно было увидеть стеклянные бутылки или банки, насаженные на колья изгороди, и глиняные крынки, висящие на плетне. Но для чего же...